 2026, Vol. 43
文章信息
- 陈洁, 陈宇, 刘轶群, 等.
- CHEN Jie, CHEN Yu, LIU Yiqun, et al.
- 八桂天龙散调节小胶质细胞M1/M2极化改善血管性认知障碍的作用机制
- Mechanism of Bagui Tianlong Powder in ameliorating vascular cognitive impairment by regulating microglial M1/M2 polarization
- 天津中医药, 2026, 43(10): 1288-1299
- Tianjin Journal of Traditional Chinese Medicine, 2026, 43(10): 1288-1299
- http://dx.doi.org/10.11656/j.issn.1672-1519.2026.10.10
-
文章历史
- 收稿日期: 2026-07-07


引用本文 |


2. 广西中医基础研究重点实验室,南宁 530200;
3. 区域重大病种创新产品研发广西高校工程研究中心,南宁 530200
血管性认知障碍(VCI)是脑血管病变引起的认知功能障碍综合征,包括从轻度认知障碍到血管性痴呆(VaD)的整个过程,常表现为记忆减退、执行功能障碍,伴情绪异常和日常生活能力下降[1]。受人口老龄化加剧、血管性危险因素增多等因素影响,全球痴呆患病人数持续攀升。据世界卒中组织(World Stroke Organization)2026年报道,2021年全球痴呆患者约5 690万例,预计至2050年将超过1.37亿例;VaD是仅次于阿尔茨海默病的全球第二大痴呆类型,纯VaD约占痴呆病例的15%,预计2050年VaD总负担将达4 270万例[2]。流行病学研究表明,约30%~50%的脑卒中患者5年内可进展为VaD[3]。VCI患病率持续上升,严重威胁老年人的健康和生活质量,已构成重大公共卫生负担[4]。目前临床治疗以控制血管危险因素为主,缺乏有效治疗认知衰退的特异性药物,亟须深入探索新的干预策略。
慢性脑灌注不足与中枢持续性神经炎症是VCI发生发展的核心病理环节[5]。脑组织长期缺血缺氧可激活小胶质细胞,促使其向M1型极化,持续释放促炎因子,放大神经炎症反应,破坏神经元结构与功能,加速认知功能衰退;而M2型抗炎修复作用则相对不足,导致M1/M2极化失衡[6]。该极化过程受Toll样受体4/核因子-κB(TLR4/NF-κB)、NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎症小体等信号通路及N6-甲基腺嘌呤(m6A)等表观遗传调控,靶向调控小胶质细胞极化,抑制M1活化、促进M2转化,已被多项研究证实可有效减轻慢性脑灌注不足诱导的认知损伤[7-9]。因此,重塑小胶质细胞M1/M2极化平衡、抑制神经炎症,是干预VCI、改善认知功能的关键。
中医将VCI归属于“呆病”“健忘”等范畴。历代医家多认为本病病机以脾肾亏虚为本,痰瘀互结为标,治疗上多采用健脾补肾、益气补血、化痰祛瘀之法,常用通窍活血汤等[10-12]。张伯礼院士认为,VaD由肾精亏虚、五脏失调所致,痰浊瘀血互结、损伤脑络是核心病机;治疗上当以补虚为本,实证泻之,痰瘀并治[13-14]。姚春教授在此基础上提出“毒浊痰瘀虚”的病机理论,认为本病虚实夹杂,气血亏虚、脏腑失养与痰浊瘀毒痹阻脑络互为因果,据此创制了八桂天龙散。八桂天龙散由药食同源的天麻、西洋参、三七、丹参、龙眼肉组成,方中天麻平肝通络,西洋参益气养阴,三七、丹参逐瘀化痰,龙眼肉养血安神,全方共奏益气养血、逐瘀化痰、通络开窍、健脑益智之效[15]。现代药理研究表明,天麻素、三七叶总皂苷、丹参酮等主要活性成分均具有改善脑循环、抗氧化、抑制炎症反应、保护神经细胞等药理活性[16-18]。
前期研究表明八桂天龙散能够改善肝性脑病大鼠的认知功能障碍和神经元损伤[19];网络药理学发现其治疗痴呆的核心活性化合物可能为人参二醇、次甲丹参醌,两者均具有抗炎的作用[20]。然而,八桂天龙散能否通过调控小胶质细胞M1/M2极化改善VCI尚不清楚。因此,本研究通过观察八桂天龙散对VCI大鼠认知功能、脑组织损伤及神经炎症的干预作用,探究其调控小胶质细胞M1/M2极化的分子机制,阐明八桂天龙散改善VCI的科学内涵,为其临床防治、推广应用提供实验依据。
1 材料与仪器 1.1 动物选用6周龄SPF级健康雄性SD大鼠48只,购自湖南斯莱克曼达实验动物有限公司[许可证号:SCXK(湘)2022-0011]。动物饲养于标准条件下:温度(22±2)℃,相对湿度50%~60%,光照周期12 h明暗交替,自由进食饮水。本实验方案经广西中医药大学动物伦理委员会审批通过(批准号:GXTCMU-ECKS20260515-17)。
1.2 药物八桂天龙散由天麻、西洋参、三七、丹参、龙眼肉组成,配比为6∶6∶3∶3∶2,生药粉碎后直接入药,由广西中医药大学第一附属医院的中药房提供(制剂批号:桂药制备字Z20230028000)。阳性对照药盐酸多奈哌齐片购自福建生物技术股份有限公司(批准文号:国药准字H20010723)。
1.3 试剂肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)大鼠酶联免疫吸附测定(ELISA)试剂盒均购自上海江莱生物科技有限公司(货号JL13202、JL20884、JL13241)。尿素氮(BUN)、肌酐(Cr)、天门冬氨酸氨基转移酶(AST)及丙氨酸氨基转移酶(ALT)测定试剂盒均来自南京建成生物工程研究所(货号C009-3-1、C010-3-1、C011-2-1、C013-1-1)。Trizol总RNA提取试剂(Invitrogen,货号15596026);ToloScript All-in-one RT EasyMix一步法逆转录试剂盒(Tolobio,货号22107);SYBR qPCR Master Mix荧光定量扩增试剂盒(Tolobio,货号22204);一抗:甘油醛-3-磷酸脱氢酶(GAPDH,Proteintech,货号:81640-5-RR-20 µL)、离子钙结合衔接分子1(IBA1,Cell Signaling Technology,货号:17198S)、精氨酸酶1(ARG1,Proteintech,货号:16001-1-AP)、诱导型一氧化氮合酶(iNOS,Proteintech,货号:18985-1-AP)。酪胺信号放大(TSA)多重荧光免疫组化显色试剂盒(武汉赛维尔生物,货号G1234)。
1.4 仪器旷场实验箱(上海欣软信息科技有限公司,XR-XZ301);Morris水迷宫(上海欣软信息科技有限公司,XR-XM101);ANY-maze行为学图像分析软件系统(美国Stoeling公司);PeriCam PSI激光微循环血流成像仪(瑞典Perimed公司);全波长多功能酶标仪(Agilent,Synergy H1);全自动组织研磨破碎仪(上海净信实业发展有限公司,JXFSTPRP-192CL);实时荧光定量PCR仪(Applied Biosystems,QuantStudio 5);梯度基因扩增PCR仪(Applied Biosystems,ProFlexTM 3×32-Well Sample Block);石蜡轮转切片机(Leica,RM2235);全景数字病理荧光切片扫描系统(Hamamatsu,C16919);高速台式冷冻离心机(深圳瑞沃德,M1416R)。
2 方法 2.1 分组、造模及干预将48只SD大鼠随机分配为4组,每组12只:假手术组、模型组、八桂天龙散组、多奈哌齐组(阳性对照)。采用双侧颈总动脉结扎法(2VO)制备VCI大鼠模型[21],操作如下:以异氟烷吸入麻醉大鼠(诱导浓度3%,维持浓度1.5%),行颈部正中切口,钝性分离组织,暴露并游离双侧颈总动脉及迷走神经,以缝合线双重结扎双侧颈总动脉,缝合皮肤。假手术组仅分离血管但不结扎。术中持续维持麻醉,保持大鼠体温在37 ℃,待其苏醒后正常饲养。以大鼠Morris水迷宫记忆功能受损和脑血流灌注降低判定为模型成功[22]。
术后第7天开始灌胃给药:八桂天龙散给药剂量为0.5 g/kg(根据临床等效剂量换算[23],并参考前期八桂天龙散相关脑病研究确定[19]);多奈哌齐给药剂量为0.5 mg/kg;假手术组、模型组大鼠予等量生理盐水灌胃。每日1次,连续给药4周。
2.2 行为学检测旷场实验评估大鼠自主活动。将大鼠置于黑暗条件下的旷场箱中央,记录大鼠5 min内运动轨迹,分析总路程、平均速度、中央路程及中央停留时间等。
采用Morris水迷宫评估大鼠空间学习记忆能力。训练期5 d,每天将大鼠分别从4个不同象限入水点面向池壁放入水中,记录60 s内找到隐藏平台的潜伏期,若未找到则引导至平台并停留10 s,每象限测试后间隔15 min。测试期第6天撤除平台,任选一入水点放入大鼠,记录60 s内平台区域穿越时间及路径。
2.3 脑血流检测行为学实验结束后,采用激光微循环血流成像系统检测大鼠大脑皮层局部脑血流量。大鼠麻醉后固定头部,剥离头皮暴露大脑皮层,保持脑部创面湿润清洁,调整成像系统参数,对大鼠大脑皮层血流信号进行扫描成像,采集并分析各组大鼠脑血流灌注图像。
2.4 样本采集与制备麻醉大鼠行腹主动脉采血,室温静置2 h,4 ℃、3 500 r/min离心10 min(离心半径10 cm),分离出血清,后置于-80 ℃冻存。快速断头取脑,在冰上分离海马组织,液氮速冻后转移至-80 ℃保存。部分大鼠经4%多聚甲醛灌注固定,取出脑组织后磷酸盐缓冲溶液(PBS)漂洗2次,经梯度脱水、透明、浸蜡包埋制成石蜡块。参照大鼠脑立体定位图谱切取4 µm冠状石蜡切片,贴于载玻片,烤片后室温保存备用。
2.5 HE和尼氏染色大鼠海马石蜡切片常规经二甲苯脱蜡、梯度乙醇复水后,分别进行染色。HE染色:行苏木精-伊红常规染色、盐酸乙醇分色,再经梯度乙醇脱水、二甲苯透明,用中性树胶封片。尼氏染色:以1%焦油紫/硫堇染色,TBST漂洗,70%乙醇分色;随后梯度乙醇脱水、二甲苯透明,中性树胶封片。HE和尼氏染色均采用全景扫描仪采集图像,观察脑组织病理形态和神经元尼氏体形态、数量。
2.6 肝肾功能检测取大鼠血清,分别按ALT、AST、BUN、Cr试剂盒说明书操作,用酶标仪上测定吸光度,计算各指标含量。
2.7 ELISA检测检测大鼠血清和海马组织的炎症因子水平。血清样本稀释2倍;海马组织称质量后按1∶9(w/v)比例加入预冷PBS匀浆,制备成10% 组织匀浆,4 ℃、3 000 r/min离心15 min(离心半径10 cm),取上清液稀释5倍待测。按ELISA试剂盒说明书,每孔加入相应试剂或样品,经37 ℃孵育、洗板后,依次加入大鼠IL-1β、IL-6、TNF-α抗体结合物、底物及终止液进行反应,于酶标仪450 nm处测定吸光度,计算各炎症因子含量。
2.8 qRT-PCR检测取适量大鼠海马组织加入TRIzol试剂充分匀浆,通过氯仿液相分离、异丙醇沉淀法提取总RNA,经75%乙醇洗涤纯化后室温风干,DEPC水溶解RNA沉淀。测定RNA浓度并定量进行反转录合成cDNA。反转录反应条件:50 ℃ 15 min,85 ℃ 5 min。以SYBR Green荧光染料配制qPCR反应体系,扩增程序:95 ℃预变性30 s;40个循环(95 ℃变性10 s,60 ℃退火延伸30 s);熔解曲线程序验证扩增特异性。以GAPDH为内参基因,采用2-ΔΔCT法计算基因相对表达量,以假手术组为对照归一化。引物由南宁捷尼斯生物科技有限公司设计并合成,引物序列见表 1。
| 基因 | 引物序列(5′-3′) |
| GAPDH | 上游: TGAA GCAG GCAT CTGA GGG |
| 下游: CGAA GGTG GAAG AGTG GGAG | |
| IBA1 | 上游: AGCAAGGATTTGCAGGGAGG |
| 下游: TTGAAGGCCTCCAGTTTGGAC | |
| ARG1 | 上游: CAGTATTCACCCCGGCTA |
| 下游: CCTCTGGTGTCTTCCCAA | |
| iNOS | 上游: GGCTACCAGATGCCCGATG |
| 下游: CCACTCGTACTTGGGATGCTC | |
| IL-1β | 上游: CAGACCCCAAAAGATTAAGGATTGC |
| 下游: CAGGTCGTCATCATCCCACGA | |
| IL-6 | 上游: GCCACTGCCTTCCCTACTTC |
| 下游: AGCACACTAGGTTTGCCGAG | |
| TNF-α | 上游: CGTAGCCCACGTCGTAGCAAA |
| 下游: GTGAGGAGCACGTAGTCGGG |
取大鼠海马石蜡切片,经脱蜡、梯度水化后,采用柠檬酸缓冲液高温高压抗原修复。冷却至室温后PBS漂洗,3%过氧化氢室温避光孵育封闭内源性过氧化物酶,5%山羊血清封闭非特异性抗原。采用酪胺信号放大(TSA)技术进行IBA1、iNOS、ARG1三重免疫荧光染色。切片分别滴加一抗(兔抗IBA1,1∶400;兔抗iNOS,1∶200;兔抗ARG1,1∶200),4 ℃孵育过夜;PBS充分洗涤后加入对应荧光二抗(1∶500稀释),室温避光孵育2 h并完成信号扩增。DAPI溶液(1∶1000)室温避光染核5 min,水洗终止反应。经脱水、透明、中性树胶封片后,荧光扫描仪采集海马组织荧光图像。每组随机选取多个视野,采用图像分析软件定量检测IBA1、iNOS、ARG1荧光阳性表达,评价小胶质细胞活化及极化状态。
2.10 统计学分析采用GraphPad Prism10软件分析数据和作图,所有数据以均数±标准差(x±s)表示。多组间采用单因素方差分析(one-way ANOVA),以Brown-Forsythe法检验方差齐性,若方差齐(P > 0.05),组间两两比较采用Tukey多重比较检验;若方差不齐(P<0.05),采用Dunnett’s T3检验。以P<0.05为差异有统计学意义。
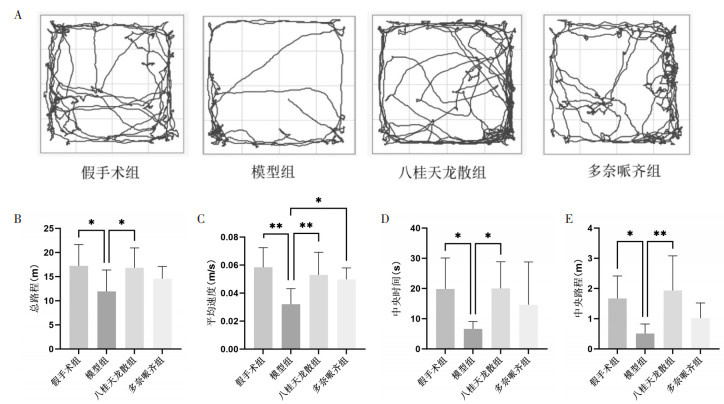
3 结果 3.1 八桂天龙散对VCI大鼠行为学的影响旷场实验结果如图 1所示。与假手术组(17.25±4.39)m相比,模型组的总路程(11.94±4.45)m显著降低(P<0.05),平均速度、中央时间和中央路程也明显下降(P<0.05或P<0.01);与模型组相比,八桂天龙散总路程(16.85±4.09)m显著升高(P<0.05),平均速度、中央时间和中央路程也显著升高(P<0.05或P<0.01),多奈哌齐组仅显著提高平均速度(P<0.05),提示八桂天龙散有效改善了VCI大鼠自主活动能力。
|
| 注:图A,旷场运动轨迹代表性图;图B,总路程;图C,平均速度;图D,中央时间;图E,中央路程;*P<0.05,**P<0.01;动物数=12。 图 1 各组大鼠在旷场实验的自主活动(x±s) Fig. 1 Spontaneous locomotor activity of rats in each group in the open field test (x±s) |
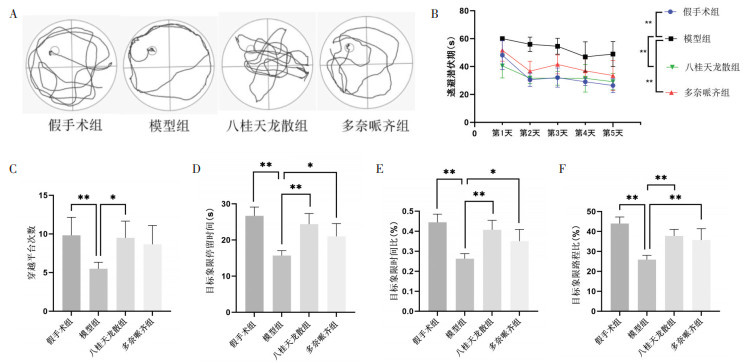
Morris水迷宫实验结果如图 2所示:定位航行实验中,随着训练天数增加,各组大鼠逃避潜伏期均呈递减趋势。第5天,与假手术组(26.40±5.13)s相比,模型组大鼠逃避潜伏期(48.94±8.99)s显著延长(P<0.01);与模型组相比,八桂天龙散组(33.58± 10.75)s及多奈哌齐组(29.18±5.90)s逃避潜伏期均显著缩短(P<0.05或P<0.01)。空间探索实验中,与假手术组相比,模型组大鼠平台穿越次数、目标象限停留时间、目标象限时间比和目标象限路程比均显著减少(P<0.01),表明大鼠学习记忆能力明显衰退;与模型组相比,八桂天龙散组及多奈哌齐组大鼠目标象限停留时间比、目标象限时间比和目标象限路程比显著增加(P<0.05或P<0.01),八桂天龙散组平台穿越次数显著增加(P<0.05)。结果表明,八桂天龙散可以有效改善VCI大鼠学习记忆功能障碍,修复大鼠认知损伤。
|
| 注:图A,水迷宫测试期游泳轨迹代表性图;图B,逃避潜伏期;图C,穿越平台次数;图D,目标象限停留时间;图E,目标象限时间比;图F,目标象限路程比;*P<0.05,**P<0.01;动物数=12。 图 2 各组大鼠在Morris水迷宫实验学习记忆功能(x±s) Fig. 2 Learning and memory function of rats in each group in the Morris water maze test (x±s) |
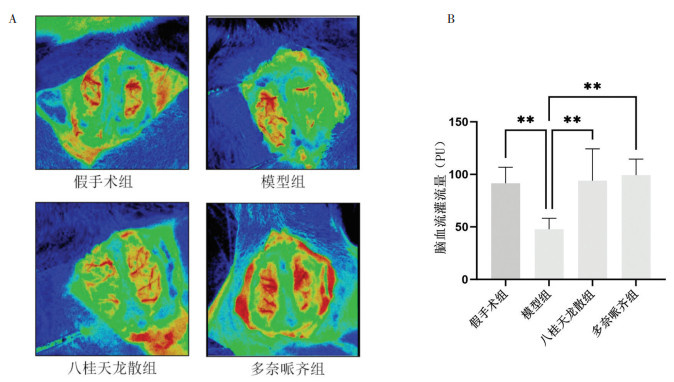
脑血流成像结果如图 3所示。与假手术组相比,模型组大鼠大脑皮层血流灌注信号稀疏,脑血流量显著降低(P<0.01),存在明显脑微循环灌注障碍,符合VCI慢性脑缺血的病理特点。与模型组相比,各给药组大鼠脑血流灌流量均显著升高(P<0.01)。结果提示,八桂天龙散可以改善VCI大鼠脑部缺血缺氧状态、疏通脑微循环,为神经元损伤修复提供良好的脑组织微环境。
|
| 注:图A,代表性脑血流成像图;图B,脑血流灌流量;**P<0.01;动物数=5。 图 3 各组大鼠的脑血流灌流量(x±s) Fig. 3 Cerebral blood flow perfusion of rats in each group (x±s) |
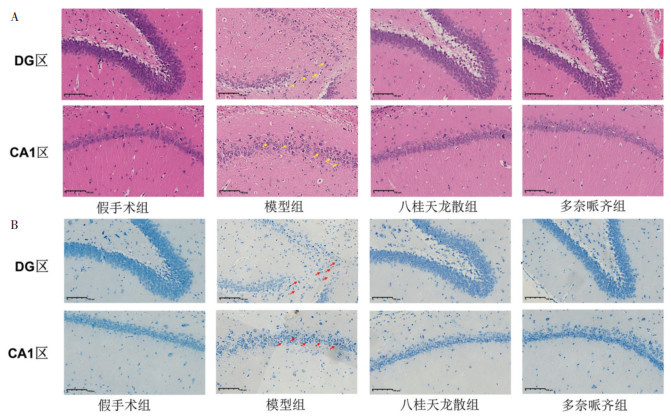
海马CA1区对慢性脑低灌注最为易感,DG区神经元发生于脑低灌注时受抑,两者是低灌注诱发神经元损伤的主要靶区[24-25]。本研究通过HE染色、尼氏染色,重点观察大鼠海马DG区与CA1区病理形态改变,结果如图 4所示。HE染色结果显示,假手术组大鼠海马DG区和CA1区结构完整,神经细胞排列规整、形态正常,无明显炎症浸润及组织水肿。与假手术组比较,模型组大鼠脑组织结构紊乱,神经细胞排列稀疏、胞体皱缩,存在显著缺血性脑损伤。与模型组相比,八桂天龙散组与多奈哌齐组大鼠脑组织病理损伤均明显缓解,脑组织结构趋于规整,神经细胞形态显著恢复。尼氏染色结果显示,假手术组大鼠海马DG区和CA1区神经元数量充足,尼氏体饱满、染色均一,神经元结构完好。模型组大鼠神经元大量缺失,残存神经元形态皱缩,尼氏体稀疏浅染,神经元损伤显著,尼氏体溶解明显;与模型组相比,各给药组大鼠神经元损伤得到有效修复。综上,八桂天龙散可显著改善VCI大鼠脑组织病理损伤,保护神经元结构完整性。
|
| 注:图A,HE染色(×200,标尺=100 µm),黄色箭头表示神经元胞体皱缩;图B,尼氏染色(×200,标尺=100 µm),红色箭头表示尼氏体溶解;动物数=3。 图 4 各组大鼠海马HE和尼氏染色 Fig. 4 HE and Nissl staining of hippocampal tissue of rats in each group |
大鼠血清肝肾功能检测结果如图 5所示。与假手术组相比,模型组、各给药组大鼠血清ALT、AST、Cr、BUN差异无统计学意义(P > 0.05)。实验过程中所有大鼠无死亡、无精神萎靡、饮食异常等中毒表现。结果证实,八桂天龙散有效治疗剂量下对大鼠肝肾功能无损伤,无明显肝肾毒性,具备良好的用药安全性。
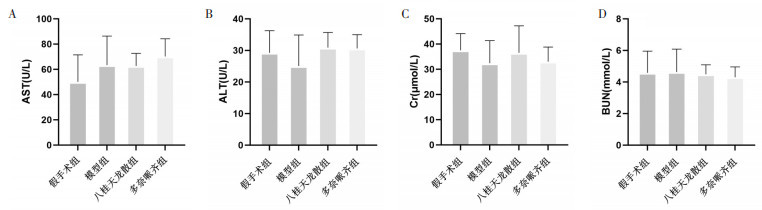
|
| 注:动物数=6。 图 5 各组大鼠肝肾功能水平(x±s) Fig. 5 Liver and kidney function levels of rats in each group (x±s) |
大鼠血清及海马组织炎症因子ELISA检测结果如图 6所示。与假手术组相比,模型组大鼠血清和海马组织的促炎因子IL-1β、IL-6、TNF-α水平均显著升高(P<0.01),提示VCI模型大鼠存在明显外周和中枢炎症失衡。与模型组相比,八桂天龙散组及多奈哌齐组大鼠血清和海马组织的促炎因子水平均显著下调(P<0.05或P<0.01),表明其炎症反应得到有效抑制。
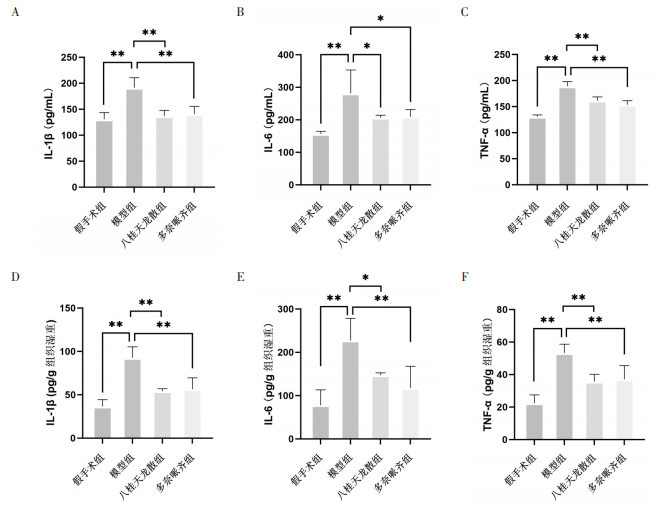
|
| 注:图A,血清IL-1β;图B血清IL-6;图C,血清TNF-α;图D,海马组织IL-1β;图E,海马组织IL-6;图F,海马组织TNF-α;*P<0.05,**P<0.01;动物数=6。 图 6 各组大鼠血清和海马组织炎症因子水平(x±s) Fig. 6 Levels of inflammatory cytokines in serum and hippocampus of rats in each group (x±s) |
大鼠海马组织的qRT-PCR结果如表 7所示。与假手术组相比,模型组小胶质细胞活化标志物IBA1和M1型极化基因iNOS的mRNA表达均上调(P<0.01),M2型极化基因ARG1 mRNA表达下调(P<0.01),提示小胶质细胞异常活化并偏向M1促炎极化。同时,模型组下游炎症基因IL-1β、IL-6、TNF-α mRNA表达显著升高(P<0.01),证实小胶质细胞极化失衡继发中枢炎症过度激活。与模型组相比,八桂天龙散组可显著抑制小胶质细胞M1型极化、提升M2型基因表达,并下调下游炎症基因转录水平(P<0.05或P<0.01),提示八桂天龙散通过调节小胶质细胞极化平衡改善脑组织免疫炎症紊乱。
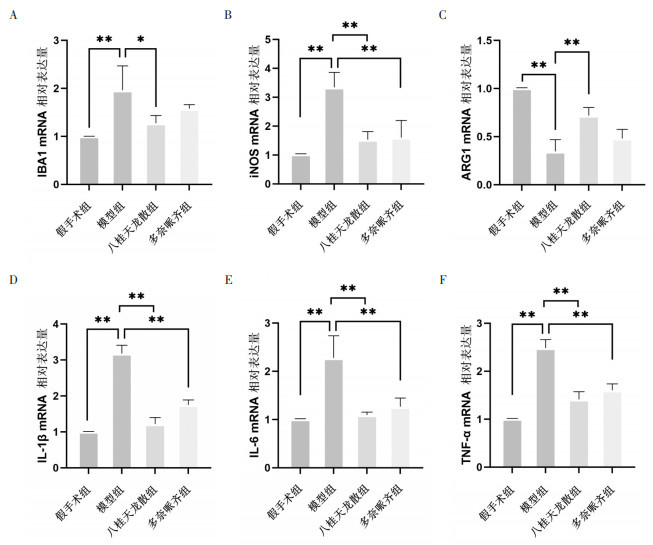
|
| 注:图A,IBA1 mRNA;图B,iNOS mRNA;图C,ARG1 mRNA;图D,IL-1β mRNA;图E,IL-6 mRNA;图F,TNF-α mRNA;*P<0.05,**P<0.01;动物数=4。 图 7 各组大鼠海马IBA1、iNOS、ARG1和炎症因子mRNA相对表达量(x±s) Fig. 7 Relative mRNA expression levels of IBA1, iNOS, ARG1, and inflammatory cytokines in the hippocampus of rats in each group (x±s) |
免疫荧光染色结果如图 8所示。相较于假手术组,模型组IBA1阳性细胞明显增多(P<0.01),小胶质细胞大量活化;M1标志物iNOS表达显著升高(P<0.01),M2标志物ARG1表达明显减弱(P<0.01),iNOS/ARG1的阳性细胞比值显著升高(P<0.01),表明VCI大鼠小胶质细胞以M1型促炎极化为主。与模型组对比,八桂天龙散组和多奈哌齐组IBA1阳性细胞数目下降(P<0.05或P<0.01),iNOS表达下调、ARG1表达上调(P<0.05或P<0.01),iNOS/ARG1比值降低(P<0.01)。以上结果表明,八桂天龙散能够抑制VCI大鼠小胶质细胞过度活化和M1型极化,调节M1/M2极化失衡,推动小胶质细胞向抗炎M2表型转化。
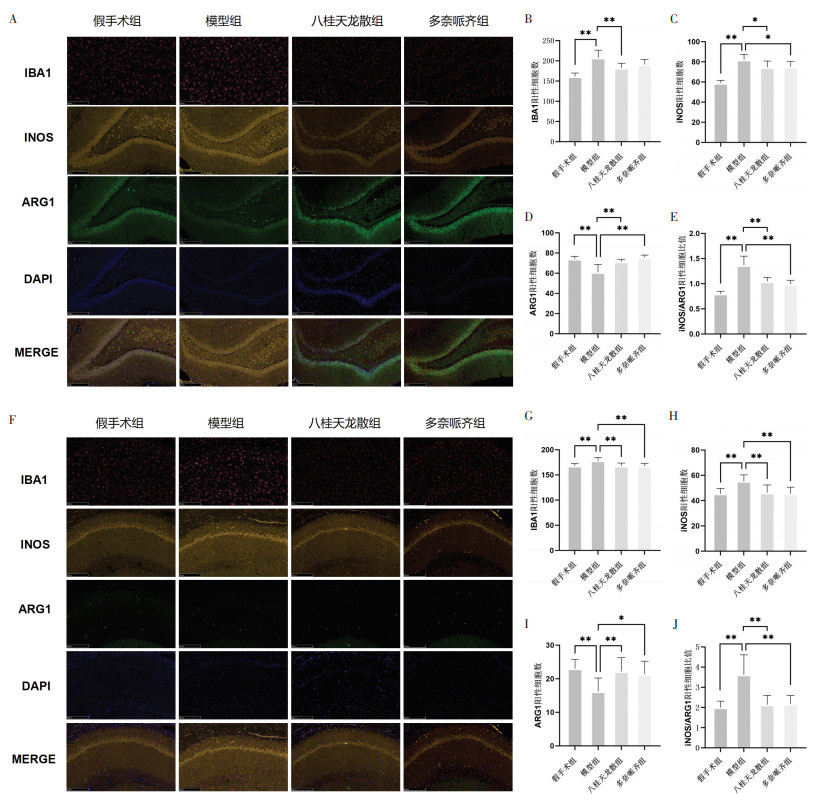
|
| 注:图A,DG区代表性荧光图(×100,标尺=250 μm);图B,DG区IBA1+细胞数;图C,DG区iNOS+细胞数;图D,DG区ARG1+细胞数;图E,DG区iNOS+/ARG1+细胞比值;图F:CA1区代表性荧光图(×100,标尺=250 μm);图G,CA1区IBA1+细胞数;图H,CA1区iNOS+细胞数;图I,CA1区ARG1+细胞数;图J,CA区iNOS+/ARG1+细胞比值;*P<0.05,**P<0.01。动物数=3。 图 8 各组大鼠海马DG区及CA1区IBA1、iNOS、ARG1的蛋白表达(x±s) Fig. 8 Protein expression of IBA1, iNOS, and ARG1 in the DG and CA1 regions of the hippocampus of rats in each group (x±s) |
VCI是由脑血管病变引发的脑循环障碍性疾病,以慢性脑低灌注为主要病理基础,可导致脑组织缺血缺氧损伤、中枢微环境紊乱及进行性认知功能减退,是中老年认知功能损害的主要诱因之一[26]。中医药凭借多成分、多靶点、多通路的整体调控优势,在改善脑缺血损伤、调节机体免疫失衡、延缓认知衰退方面具有独特优势,已成为VCI防治的研究热点。
中医学认为脑为“髓海”,依赖气血充养,髓海亏虚、痰瘀阻络为认知功能障碍的核心病机,正如《医宗金鉴》所言“髓海渐空神渐瞑”。上述认识与西医学中慢性脑低灌注、微循环瘀滞、中枢微环境紊乱等病理特征高度契合[27]。现代研究表明,慢性脑低灌注可诱发氧化应激、神经炎症及血脑屏障损伤,触发微血管病理重塑与微循环功能障碍,导致持续性脑组织低灌注及神经退行性病变[28-29]。中医“痰浊瘀血阻络”的病理实质,可能正对应慢性脑低灌注状态下微循环瘀滞、血脑屏障破坏及神经炎症级联反应。八桂天龙散以益气养血、化痰通络、活血化瘀为法,可能通过改善脑微循环灌注、保护血脑屏障完整性,从源头抑制小胶质细胞过度活化,进而改善VCI认知功能。
本研究通过构建VCI大鼠模型,从行为学、脑血流灌注、脑组织病理形态等层面系统评价八桂天龙散对VCI的干预作用。行为学结果显示,模型组大鼠自主活动能力下降、学习记忆功能显著衰退,符合VCI认知损伤特征,提示模型构建成功稳定。脑血流检测结果证实,VCI模型大鼠脑血流灌注量降低,表明其存在显著脑微循环灌注障碍,这可能是认知损伤发生的始动因素[30]。海马是介导空间学习与记忆的核心脑区。研究发现海马CA1区对慢性脑低灌注最为易感,是介导空间记忆损伤的关键区域[24];DG区为成年海马神经发生核心部位,脑低灌注可抑制其新生神经元的增殖与成熟[25]。笔者研究通过HE和尼氏染色发现,模型大鼠海马CA1区和DG区结构紊乱、神经元损伤严重、尼氏体丢失,进一步证实慢性脑缺血可诱发明显的脑组织病理损伤,这与其他文献报道的2VO构建的VCI脑组织损伤形态一致[31-32]。八桂天龙散干预后,大鼠自主活动与学习记忆功能显著恢复,脑血流灌注显著改善,脑组织缺血病理损伤明显减轻,表明八桂天龙散可有效改善VCI大鼠记忆功能、脑部缺血状态及神经元损伤。
持续的脑部血流灌注不足可激活中枢固有免疫反应,诱发小胶质细胞异常活化、神经炎症级联放大及神经元结构性损伤,最终造成学习记忆能力下降[33]。本研究进一步探讨了八桂天龙散改善VCI认知损伤的分子机制。研究结果发现,VCI模型大鼠血清及海马组织促炎因子异常高表达,中枢炎症反应过度激活,而八桂天龙散可显著下调促炎因子水平,表明其有效抑制神经炎症反应,阻断炎症介导的继发性神经损伤。神经炎症主要由小胶质细胞活化及其M1/M2极化失衡介导,进一步发现VCI大鼠小胶质活化标志IBA1、M1型极化基因iNOS的转录和蛋白水平显著上调,M2型抗炎极化基因ARG1的表达显著抑制;iNOS+/ARG1+比值降低,说明八桂天龙散干预可明显抑制VCI大鼠小胶质细胞M1极化,促进其向抗炎M2表型转化。以上研究结果表明,八桂天龙散可通过调控小胶质细胞M1/M2极化平衡、抑制神经炎症,从而改善VCI认知功能。
现有大量研究表明,TLR4/NF-κB信号通路与NLRP3炎症小体是调控小胶质细胞极化的核心上游炎症轴。TLR4/NF-κB是介导小胶质细胞促炎极化的经典通路,TLR4激活可启动下游NF-κB核转位,促进M1型极化及促炎因子转录[34];NLRP3炎症小体则在慢性脑低灌注诱导的神经炎症中发挥关键作用,其活化可介导促炎因子成熟释放,加重神经元损伤[35]。研究表明,慢性脑低灌注可通过m6A放大NF-κB介导的NLRP3及促炎因子转录,加剧M1型小胶质过度活化与海马神经炎症[7]。另有研究指出,滨蒿内酯(Scoparone)可通过抑制TLR4/髓样分化因子88(MyD88)/肿瘤坏死因子受体相关因子-6(TRAF-6)/转化生长因子β活化激酶-1(TAK-1)/NF-κB轴及下游NLRP3活化,在阿尔茨海默病大鼠模型中促进小胶质细胞从M1向M2表型极化,有效减轻神经炎症并改善认知功能[9]。以上研究综合表明TLR4/NF-κB/NLRP3通路是重塑小胶质稳态的关键靶点。中药干预慢性脑低灌注的研究显示,中药活性物质可通过靶向抑制TLR4信号传导,下调NF-κB与NLRP3表达,同步抑制M1型小胶质活化、提升ARG1等M2保护性蛋白水平,缓解缺血性神经炎症与神经元损伤,改善认知功能[8,36]。本研究发现八桂天龙散可同时下调M1标志物iNOS并上调M2标志物ARG1,提示其可能通过干预TLR4/NF-κB和/或NLRP3等上游通路,重塑小胶质细胞极化稳态。然而,本研究未直接检测上述通路关键蛋白的表达变化,具体分子机制尚待后续深入验证。
综上,本研究表明八桂天龙散可通过靶向调控小胶质细胞M1/M2极化失衡、抑制神经炎症级联反应,从而发挥改善VCI大鼠认知功能的作用。本研究初步阐明了八桂天龙散治疗VCI的药效及作用机制,为其临床应用提供了实验依据。本研究尚存在一定局限性,仅基于雄性动物组织层面开展验证,未深入探讨药物作用的上游信号通路及核心有效成分,亦未纳入雌性动物。后续可通过体外细胞实验、靶点通路验证等方式进一步完善机制体系,为八桂天龙散治疗VCI的临床转化提供更为系统、科学的理论支撑。
| [1] |
中国卒中学会血管性认知障碍分会. 中国血管性认知障碍诊治指南(2024版)[J]. 中华医学杂志, 2024, 104(31): 2881-2894. |
| [2] |
CAI Y, MOK V C T, MARKUS H S. Vascular dementia: World Stroke Organization fact sheet 2026[J]. International Journal of Stroke, 2026, 21(2): 152-163. DOI:10.1177/17474930251404243 |
| [3] |
PENDLEBURY S T, ROTHWELL P M. Incidence and prevalence of dementia associated with transient ischaemic attack and stroke: Analysis of the population-based Oxford Vascular Study[J]. Lancet Neurology, 2019, 18(3): 248-258. DOI:10.1016/S1474-4422(18)30442-3 |
| [4] |
ZHU W M, JIA Q Q, FERREIRA A C, et al. Acupuncture for ischemic stroke: Where are we now?[J]. Acupuncture and Herbal Medicine, 2024, 4(1): 36-55. DOI:10.1097/HM9.0000000000000094 |
| [5] |
BROWN R, ALLAN S M, MARKUS H S. The role of inflammation in cerebral small vessel disease and vascular cognitive impairment, and therapeutic implications[J]. International Journal of Stroke, 2026, 17474930261461366. DOI:10.1177/17474930261461366 |
| [6] |
AJOOLABADY A, KIM B, ABDULKHALIQ A A, et al. Dual role of microglia in neuroinflammation and neurodegenerative diseases[J]. Neurobiology of Disease, 2025, 216: 107133. DOI:10.1016/j.nbd.2025.107133 |
| [7] |
WANG H, ZHAO H, GAO J, et al. METTL14/m6A/CEBPD axis: A critical player in chronic cerebral hypoperfusion-associated neuroinflammation[J]. Free Radical Biology and Medicine, 2026, 249: 89-102. DOI:10.1016/j.freeradbiomed.2026.03.013 |
| [8] |
YANG Q, CHEN Q, ZHANG K B, et al. Sinomenine alleviates neuroinflammation in chronic cerebral hypoperfusion by promoting M2 microglial polarization and inhibiting neuronal pyroptosis via exo-somal miRNA-223-3p[J]. Acta Neuropathologica Communications, 2025, 13(1): 48. DOI:10.1186/s40478-025-01950-z |
| [9] |
IBRAHIM W W, SKALICKA-WOŹNIAK K, BUDZYŃSKA B, et al. NLRP3 inflammasome inhibition and M1-to-M2 microglial polarization shifting via scoparone-inhibited TLR4 axis in ovariectomy/D-galactose Alzheimer's disease rat model[J]. International Immunopharmacology, 2023, 119: 110239. DOI:10.1016/j.intimp.2023.110239 |
| [10] |
张喜武, 刘安然, 窦金金. 基于中西医结合的血管性痴呆发病机制及治疗的研究进展[J]. 中国实验方剂学杂志, 2023, 29(4): 202-211. |
| [11] |
刘江华, 李胤, 姜磊, 等. 加减通窍活血汤对血管性痴呆大鼠认知功能及ET-1、VEGF血管新生因子的影响[J]. 时珍国医国药, 2022, 33(4): 857-860. |
| [12] |
杨海涛, 龙寿峰, 吴立群, 等. 当归补血汤治疗气血亏虚型血管性痴呆的临床疗效分析[J]. 时珍国医国药, 2025, 36(24): 4703-4708. |
| [13] |
崔远武, 江丰, 马妍, 等. 张伯礼分期论治老年期血管性痴呆述要[J]. 中医杂志, 2015, 56(15): 1276-1279. |
| [14] |
江丰, 张磊. 张伯礼教授痰瘀学说及临证应用经验[J]. 天津中医药, 2014, 31(7): 385-387. DOI:10.11656/j.issn.1672-1519.2014.07.01 |
| [15] |
姚春. 基于"药食同源"理论的八桂天龙散防治老年痴呆的机理探析[J]. 广西中医药, 2023, 46(4): 40-43. |
| [16] |
ZHENG X, GONG T, TANG C, et al. Gastrodin improves neuroinflammation-induced cognitive dysfunction in rats by regulating NLRP3 inflammasome[J]. BMC Anesthesiology, 2022, 22(1): 371. DOI:10.1186/s12871-022-01915-y |
| [17] |
REN Y, SUN Y, SUN L, et al. Total saponins of Panax notoginseng leaves alleviate vascular dementia via the gut-brain axis[J]. American Journal of Chinese Medicine, 2025, 53(4): 1155-1179. DOI:10.1142/S0192415X25500430 |
| [18] |
黄廷, 李慧玲, 郭秋萍, 等. 丹参酮对脑缺血再灌注大鼠梗死脑组织中血管生成的影响[J]. 郑州大学学报(医学版), 2026, 61(2): 41-46. |
| [19] |
冯雯倩. 基于NOD2/NF-κB信号通路探讨八桂天龙散对肝性脑病大鼠海马神经元自噬的调控机制[D]. 南宁: 广西中医药大学, 2025.
|
| [20] |
姚春, 林龙, 王萌, 等. 基于生物信息学、网络药理学与分子对接研究八桂天龙散治疗阿尔茨海默病的机制[J]. 中华中医药学刊, 2023, 41(6): 1-5, 259-263. |
| [21] |
YAN M L, AI J. A rodent model for chronic brain hypoperfusion related diseases: permanent bilateral occlusion of the common carotid arteries(2VO) in rats[J]. Bio-Protocol, 2018, 8(1): e2668. |
| [22] |
ZHANG Y, ZHANG J, ZHAO Y, et al. ChemR23 activation attenuates cognitive impairment in chronic cerebral hypoperfusion by inhibiting NLRP3 inflammasome-induced neuronal pyroptosis[J]. Cell Death & Disease, 2023, 14(11): 721. |
| [23] |
徐叔云, 卞如濂, 陈修. 药理实验方法学[M]. 3版. 北京: 人民卫生出版社, 2002.
|
| [24] |
LUO P, LU Y, LI C, et al. Long-lasting spatial learning and memory impairments caused by chronic cerebral hypoperfusion associate with a dynamic change of HCN1/HCN2 expression in hippocampal CA1 region[J]. Neurobiology of Learning and Memory, 2015, 123: 72-83. DOI:10.1016/j.nlm.2015.05.005 |
| [25] |
MORIYAMA Y, HASEGAWA R, ENDO H, et al. Role of Dlk1-Notch signaling in impaired neurogenesis and cognitive decline in chronic cerebral hypoperfusion[J]. Biochemistry and Biophysics Reports, 2026, 46: 102650. DOI:10.1016/j.bbrep.2026.102650 |
| [26] |
RAJEEV V, CHAI Y L, POH L, et al. Chronic cerebral hypoperfusion: A critical feature in unravelling the etiology of vascular cognitive impairment[J]. Acta Neuropathologica Communications, 2023, 11(1): 93. DOI:10.1186/s40478-023-01590-1 |
| [27] |
江珊, 陆征宇. 血管性认知障碍与神经血管慢性低灌注损伤的机制研究进展[J]. 神经损伤与功能重建, 2025, 20(8): 474-477. |
| [28] |
OLEJNIK P, GOLENIA A. Vascular cognitive impairment—the molecular basis and potential influence of the gut microbiota on the pathological process[J]. Cells, 2024, 13(23): 1962. DOI:10.3390/cells13231962 |
| [29] |
WAZNY V K, MAHADEVAN A, NGUYEN N, et al. Chronic cerebral hypoperfusion induces venous dysfunction via EPAS1 regulation in mice[J]. Nature Communications, 2025, 16(1): 6302. DOI:10.1038/s41467-025-61614-3 |
| [30] |
NIE Q, ZHANG L, GU Z, et al. Lipocalin 2 facilitates the initial compromise of the blood-brain barrier integrity in chronic cerebral hypoperfusion[J]. CNS Neuroscience & Therapeutics, 2025, 31(5): e70438. |
| [31] |
LI J, YE H, XU F, et al. Tong-Qiao-Huo-Xue decoction promotes synaptic remodeling via cAMP/PKA/CREB pathway in vascular dementia rats[J]. Phytomedicine, 2024, 135: 156166. DOI:10.1016/j.phymed.2024.156166 |
| [32] |
KANE M M, SNEED S E, KAISER E E. From artery to memory: A comparative review of vascular cognitive impairment surgical models[J]. Frontiers in Aging Neuroscience, 2026, 18: 2026. |
| [33] |
SHUKLA M, LI J, SUN Y, et al. Microglial plasticity in vascular dementia: Mechanisms and therapeutic reprogramming[J]. International Journal of Molecular Sciences, 2026, 27(9): 3719. DOI:10.3390/ijms27093719 |
| [34] |
WANG L, YANG J W, LIN L T, et al. Acupuncture attenuates inflammation in microglia of vascular dementia rats by inhibiting miR-93-mediated TLR4/MyD88/NF-κB signaling pathway[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020: 8253904. |
| [35] |
LU Y, CHENG L, XIONG Y, et al. NLRP3 inflammasome in vascular dementia: Regulatory mechanisms, functions, and therapeutic implications: A comprehensive review[J]. CNS Neuroscience & Therapeutics, 2025, 31(5): e70403. |
| [36] |
MA X T, LOU B Y, LIU J, et al. Traditional Chinese medicines alleviate experimental chronic cerebral hypoperfusion injury through multi-components and multi-target mechanisms[J]. Frontiers in Pharmacology, 2025, 16: 1698436. DOI:10.3389/fphar.2025.1698436 |
2. Guangxi Key Laboratory of Chinese Medicine Foundation Research, Nanning 530200, China;
3. Guangxi Universities Engineering Research Center for Innovative Product Development of Regional Priority Diseases, Nanning 530200, China