 2026, Vol. 43
文章信息
- 张书, 时昭红, 李双翼, 等.
- ZHANG Shu, SHI Zhaohong, LI Shuangyi, et al.
- 半夏调中颗粒调控NGF/TrkA通路改善内脏高敏感治疗非糜烂性反流病的机制研究
- Study on the mechanism of Banxia Tiaozhong Granules in regulating the NGF/TrkA pathway to improve visceral hypersensitivity in the treatment of non-erosive reflux disease
- 天津中医药, 2026, 43(10): 1300-1307
- Tianjin Journal of Traditional Chinese Medicine, 2026, 43(10): 1300-1307
- http://dx.doi.org/10.11656/j.issn.1672-1519.2026.10.11
-
文章历史
- 收稿日期: 2026-04-23


引用本文 |


2. 湖北中医药大学,武汉 430065
非糜烂性反流病(NERD)是常见的慢性消化系统疾病,约占胃食管反流病(GERD)的70%,发病率逐年攀升[1]。目前NERD治疗首选质子泵抑制剂(PPI),患者往往需长期、反复服药,部分疗效不佳引起焦虑或抑郁,严重影响生活质量,且约50%患者对PPI无应答,属难治性GERD范畴[2-4]。近年来,越来越多研究从生物-心理-社会医学模式探讨NERD的发生发展,内脏高敏感(VH)是其中重要机制[5]。研究表明[6-7],生理性酸反流但存在VH的患者,反流症状表现更为明显,提示VH可能是导致NERD对抑酸剂治疗总体疗效不佳的原因。神经生长因子(NGF)在促进痛觉信号传递,激发VH方面发挥重要作用,其与肥大细胞(MC)表面高亲和力受体原肌球蛋白受体激酶A(rkA)结合,诱导MC脱颗粒,导致瞬时受体电位香草酸亚型1(TRPV1)升高,引发VH[8-9]。院内制剂半夏调中颗粒是本团队创制的治疗GERD的特色制剂,在半夏泻心汤基础上化裁而成,前期研究表明[10],其可抑制MC活化,下调蛋白酶激活受体2(PAR-2)、TRPV1、降钙素基因相关肽(CGRP)、P物质(SP)等神经递质表达,抑制NERD大鼠食管VH状态。本研究建立内脏高敏感NERD大鼠模型,通过行为学测试、记录食管MC计数、密度,检测各组血清NGF、PAR-2、TRPV1表达水平,各组食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平,免疫荧光双标法检测各组食管NGF、TrkA荧光强度,阐明半夏调中颗粒对NGF/TrkA通路的影响,进一步揭示其改善VH,治疗NERD的作用机制。
1 材料 1.1 实验动物SD雄性大鼠36只,鼠龄8周,体质量(200±20)g,购自武汉华联科生物技术有限公司,许可证号:SCXK(鄂)2018-0104,饲养于湖北中医药大学动物实验中心,环境温度维持在(22±4)℃,湿度为(55±5)%,自由摄食与饮水。动物实验遵照《医学实验动物管理实施细则》要求进行,伦理批准号:HLK-20250303-001,由武汉华联科生物技术有限公司动物伦理委员会审批。
1.2 主要试剂及药物 1.2.1 试剂卵清蛋白及DMSO(均为北京索莱宝科技有限公司,货号分别为A8040、D8371);氢氧化铝(美国MCE公司,货号:HY-B1521);大鼠NGF ELISA试剂盒、大鼠PAR-2 ELISA试剂盒(上海酶联生物科技有限公司,货号分别为ml107066、ml106788);大鼠TRPV1 ELISA试剂盒(武汉菲恩生物科技有限公司,货号:ER0472);ACTIN抗体(武汉赛维尔生物科技有限公司,货号:GB15003);兔NGF抗体、兔PAR-2抗体、兔TRPV1抗体(北京博奥森生物技术有限公司,货号分别为BSM-52362R、bs-1178R、bs-23926R);兔TrkA抗体(爱博泰克生物科技有限公司,货号:A2693);DAPI染色试剂(武汉赛维尔生物科技有限公司,货号:G1012);Von Frey触觉测试包(深圳铭网科技有限公司,货号:29-0000)。
1.2.2 药物半夏调中颗粒(主要组成:姜半夏10 g,黄连6 g,黄芩8 g,炮姜3 g,太子参15 g,甘草6 g,大枣10 g,苦杏仁10 g,厚朴10 g,武汉市中西医结合医院制剂中心,批号:鄂药制字Z20210205);奥美拉唑(罗欣药业集团股份有限公司,批号:国药准字H20033444);GW 441756(美国MCE公司,货号:HY-18314);GA-amide(美国MCE公司,货号:HY-121833)。
1.3 仪器高速组织研磨仪(武汉赛维尔生物科技有限公司,KZ-Ⅱ型);高速冷冻离心机(DLAB大龙仪器,D3024R型);酶标检测仪(雷杜生命科技有限公司、RT6100型);涡旋混匀仪(武汉赛维尔生物科技有限公司,SMV-4500B型);磁力搅拌器(武汉赛维尔生物科技有限公司,MS-150型);多功能型摇床(武汉赛维尔生物科技有限公司,DS-3D100);电泳仪电源、垂直电泳仪、转印电泳仪(均为武汉赛维尔生物科技有限公司,型号分别为SPW-6S、SVE-2、SVT-2);抗体孵育盒(武汉赛维尔生物科技有限公司,型号:G9055-4)、脱水机(意大利DIPATH公司,Donatello型);病理切片机(上海徕卡仪器有限公司,RM 2016型);组织摊烤片机(浙江金华市科迪仪器设备有限公司,KD-P型);正置荧光显微镜(日本尼康公司,BX53 NIKON ECLIPSE C1型);全景切片扫描仪(3DHISTECH公司,型号:PANNORAMIC DESK/MIDI/250/1000)。
2 方法 2.1 动物分组与模型制备适应性喂养1周后将36只大鼠随机分为6组,每组6只:空白组、模型组、半夏调中颗粒组(BXTZ组)、奥美拉唑组、TrkA抑制剂(GW 441756)组及半夏调中颗粒+TrkA激动剂(BXTZ+GA-amide)组。
依据既往研究[10-11],采用卵清蛋白联合食管酸灌注法制备VH性NERD大鼠模型:首先,在实验第0天进行基础致敏,实验组大鼠腹腔注射1.5 mL含100 mg卵清蛋白和200 mg氢氧化铝佐剂的混合液;空白对照组则注射等剂量生理盐水。随后,在实验第14天进行食管酸灌注:大鼠禁食12~16 h,腹腔注射2.5%戊巴比妥钠(1 mL/kg)麻醉,平卧位固定并将头部抬高20~30°,依次切开腹壁和胃壁,将一单腔灌流管(内径0.50 mm,外径0.80 mm)经口放置于食管内,使其开口位于食管-胃交界处上方2~3 cm处,妥善固定后连接至持续灌注泵。同时,在贲门处放置引流管以收集灌注液。实验以10 mL/h的流速持续滴注预热至37 ℃的0.1 mol/L盐酸溶液50 min,空白组则在相同条件下以相同流速滴注生理盐水。
2.2 动物模型评价食管酸灌注结束后2 h,通过von Frey测试指标判定VH性NERD大鼠模型建立情况,模型组大鼠机械缩足反射阈值(MWT)若显著低于空白组(P<0.05),提示痛觉阈值下降、内脏敏感性升高,视为模型成功建立。本实验除空白组外,30只造模大鼠均成功建立VH性NERD大鼠模型,造模成功率100%,无动物死亡与剔除。
2.3 干预方法经实验第0天基础致敏造模24 h后,各组大鼠按以下方案连续干预14 d,给药剂量依照《中药药理学实验教程(第2版)》中人与动物体表面积折算法计算给药浓度,并结合既往研究确定[10]:空白组与模型组予以10 mL/(kg·d)生理盐水灌胃;BXTZ组予以10.03 g/(kg·d)半夏调中颗粒灌胃;奥美拉唑组予以8.4 mg/(kg·d)奥美拉唑灌胃;GW 441756组予以8.4 mg/(kg · d)GW 441756灌胃[12];BXTZ+GA-amide组予以10.03 g/(kg·d)半夏调中颗粒联合1 mg/(kg·d)GA-amide剂量灌胃。
2.4 样本取材实验第14天食管酸灌注完成及完成行为学测试后,行腹主动脉取血,放置2 h后于4 ℃ 3 000 r/min离心15 min(离心半径10 cm),取上清存于-80 ℃冰箱保存;取血后断颈处死大鼠,在食管齿状线上方2 cm处取各组大鼠食管黏膜组织1 cm及0.3 cm,并在生理盐水中迅速漂洗2遍,将所取食管组织一份浸泡于4%多聚甲醛固定液中,另一份食管组织置于微型离心管中于-80 ℃冰箱保存。将大鼠置于俯卧位,沿棘突切开皮肤及皮下组织,分离肌肉后暴露脊柱,用咬骨钳分别咬去棘突,暴露脊髓和神经根,小心取出脊髓背根神经节(T3-T5),置于微型离心管中于-80 ℃冰箱保存待测。
2.5 指标检测及方法 2.5.1 行为学测试实验第14天食管酸灌注完成后2 h,进行以下测试:1)von Frey测试:将大鼠先放入悬空的铁丝网笼内,适应30 min后用von Frey纤维用不同直径、从细到粗的von Frey纤维依次垂直触压大鼠右后肢足底中部,并逐渐增加刺激力度,直至出现缩足反射即为阳性。观测到缩足反射,则记录该von Frey纤维型号,间隔5 min后再次测试,重复3次。最终分析von Frey纤维型号对应的刺激强度为大鼠的MWT,即大鼠对刺激的痛觉阈值。MWT越低,表明大鼠对刺激的敏感性越高。2)旷场实验[13]:取长、宽各100 cm,高40 cm的中空立方体,箱壁四周为黑色,底面用白线均匀划分25块方格,每块方格为4 cm×4 cm。在安静、昏暗的环境下将各组大鼠放入箱内底面中心格内,以大鼠1 min穿格次数为水平得分,以直立次数(两前肢离地)为垂直得分。每只大鼠测定1次,记录水平与垂直得分。
2.5.2 甲苯胺蓝染色观察食管黏膜MC计数及密度取出多聚甲醛固定液中的食管组织行石蜡包埋,5 µm厚度冠状面连续切片,切片60 ℃预热入1%的甲苯胺蓝染液染色,MC颗粒呈紫红色,背景呈蓝色,在200倍光镜视野下对MC计数进行统计,随机选取3个视野分别进行计数,并计算出肥大细胞密度=肥大细胞数量/组织面积,取均值后进行统计分析。
2.5.3 ELISA检测各组血清NGF、PAR-2、TRPV1表达取各组大鼠血清,严格按照试剂盒说明书步骤操作,结果根据标准品的浓度和OD值做标准曲线,然后根据标准曲线方程计算样本浓度。
2.5.4 Western blot检测各组食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白表达分别将各组大鼠食管及背根神经节组织置于匀浆器中充分研磨,加入组织裂解液,提取总蛋白,经配胶、蛋白上样、十二烷基硫酸钠(SDS)—聚丙烯凝胶电泳(PAGE),转印蛋白,分别孵育一抗、二抗,ECL发光、显影、定影,应用AIWBwellTM分析软件进行灰度计算。用目的蛋白/内参灰度值比值(p)作为目的蛋白的表达量。
2.5.5 免疫荧光双标染色检测食管组织NGF、TrkA的表达取食管组织石蜡切片,经脱蜡,乙醇梯度复水,修复,用磷酸盐缓冲溶液(PBS)冲洗并室温封闭30 min。然后滴加稀释好的NGF大鼠单抗,4 ℃过夜孵育;之后PBS冲洗,向孵育盒中滴加稀释好的荧光标记抗体,室温孵育1 h,PBS冲洗。使用正常山羊血清进行室温封闭,倒掉封闭液,滴加稀释好的TrkA兔抗大鼠一抗,4 ℃孵育过夜;PBST冲洗切片,然后滴加稀释好的荧光(FITC)标记羊抗兔抗体,用PBST冲洗切片,避光孵育5 min,对标本进行染核,PBST洗5 min,重复4次,然后封片,在荧光显微镜下观察并计算平均光密度。
2.6 统计学方法应用SPSS26.0统计软件。数据以均数±标准差(x±s)表示,两组间比较采用t检验,多组间均数比较采用单因素方差分析,方差齐用LSD法,方差不齐用Dunnett T3法进行两两比较。P<0.05为差异有统计学意义。
3 结果 3.1 各组行为学测试指标比较与空白组相比,模型组MWT、水平及垂直得分均降低(P<0.05)。与模型组相比,BXTZ组、奥美拉唑组、GW 441756组MWT、水平及垂直得分均升高(P<0.05),而BXTZ+ GA-amide组MWT升高(P<0.05),水平及垂直得分差异无统计学意义(P > 0.05)。组间比较,BXTZ组较奥美拉唑组MWT、水平及垂直得分升高均更显著(P<0.05),较GW 441756组水平得分、垂直得分升高更显著(P<0.05)。BXTZ+GA-amide组较BXTZ组相比,MWT、水平及垂直得分均降低(P<0.05)。见表 1。
| 组别 | 动物数 | von Frey测试MWT(g) | 旷场实验(分) | |
| 水平得分 | 垂直得分 | |||
| 空白组 | 6 | 4.80±0.24 | 69.2±2.5 | 20.3±2.1 |
| 模型组 | 6 | 2.47±0.23* | 35.7±3.9* | 6.7±2.0* |
| BXTZ组 | 6 | 4.32±0.25*# | 63.3±5.1*# | 19.0±2.2# |
| 奥美拉唑组 | 6 | 3.62±0.21*#△ | 52.8±3.4*#△ | 11.7±1.2*#△ |
| GW 441756组 | 6 | 4.40±0.29*# | 57.3±3.1*#△ | 13.8±1.5*#△ |
| BXTZ+GA-amide组 | 6 | 2.95±0.33*#△ | 39.0±2.8*△ | 8.5±1.5*△ |
| 注:与空白组比较,*P<0.05;与模型组比较,#P<0.05;与BXTZ组比较 △P<0.05。 | ||||
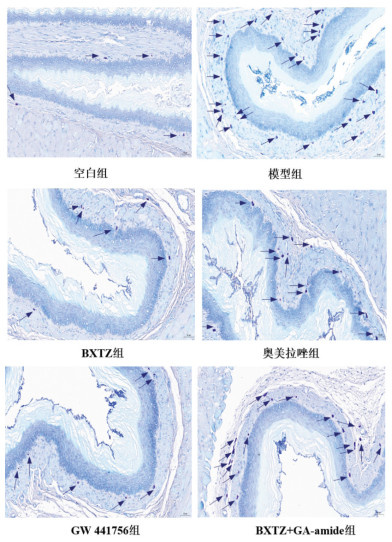
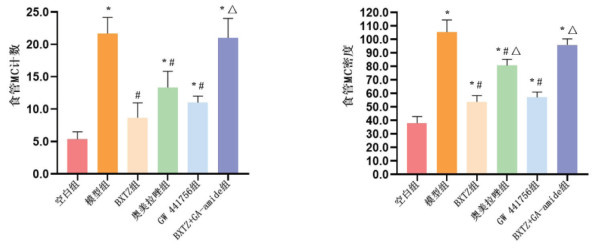
与空白组相比,模型组食管MC计数及密度均升高(P<0.05);与模型组相比,BXTZ组、奥美拉唑组、GW 441756组食管MC计数及密度均降低(P<0.05);BXTZ+GA-amide组食管MC计数及密度差异无统计学意义(P > 0.05)。组间比较,BXTZ组较奥美拉唑组MC密度降低更显著(P<0.05),较GW 441756组MC计数及密度差异无统计学意义(P<0.05)。BXTZ+GA-amide组较BXTZ组相比,食管MC计数及密度均升高(P<0.05)。见图 1、图 2。
|
| 图 1 各组食管MC计数(×200,比例尺=50 μm,n=3) Fig. 1 Mast cell counts in each group of the esophagus (×200, bar=50 μm, n=3) |
|
| 注:与空白组比较,*P<0.05;与模型组比较,#P<0.05;与BXTZ组比较△P<0.05;动物数=3。 图 2 各组食管MC计数及密度(x±s) Fig. 2 Average fluorescence intensity in each group of the esophagus (x±s) |
与空白组相比,模型组NGF、PAR-2、TRPV1水平均升高(P<0.05)。与模型组相比,BXTZ组、奥美拉唑组、GW 441756组NGF、PAR-2、TRPV1水平均降低(P<0.05);BXTZ+GA-amide组NGF、PAR-2、TRPV1水平比较差异无统计学意义(P > 0.05)。组间比较,BXTZ组较奥美拉唑组、GW 441756组NGF、PAR-2、TRPV1水平降低更显著(P<0.05)。BXTZ+GA-amide组较BXTZ组相比,NGF、PAR-2、TRPV1水平均升高(P<0.05)。见表 2。
| 组别 | 动物数 | NGF(pg/mL) | PAR-2(ng/L) | TRPV1(pg/mL) |
| 空白组 | 6 | 2.14±0.41 | 43.08±3.20 | 54.36±3.15 |
| 模型组 | 6 | 8.96±1.00* | 83.03±5.37* | 115.28±9.00* |
| BXTZ组 | 6 | 2.89±0.50*# | 48.89±4.37*# | 59.69±3.10*# |
| 奥美拉唑组 | 6 | 3.55±0.43*#△ | 61.99±2.05*#△ | 77.63±5.18*#△ |
| GW 441756组 | 6 | 3.94±0.62*#△ | 54.52±3.58*#△ | 77.22±5.06*#△ |
| BXTZ+GA-amide组 | 6 | 8.76±0.60*△ | 82.81±5.54*△ | 110.93±10.34*△ |
| 注:与空白组比较,*P<0.05;与模型组比较,#P<0.05;与BXTZ组比较,△P<0.05。 | ||||
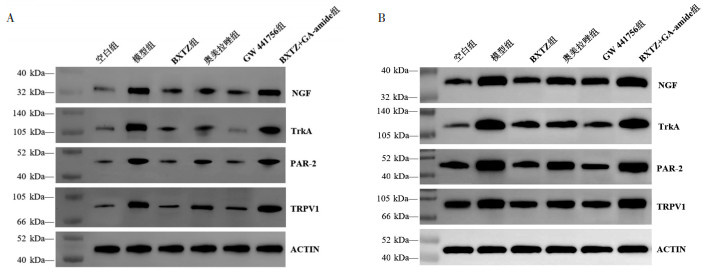
与空白组相比,模型组食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平均升高(P<0.05)。与模型组相比,BXTZ组、奥美拉唑组、GW 441756组食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平均降低(P<0.05);BXTZ+ GA-amide组NGF、PAR-2、TRPV1水平差异无统计学意义(P > 0.05)。组间比较,BXTZ组较奥美拉唑组食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平降低均更显著(P<0.05),较GW 441756组食管及背根神经节NGF、PAR-2、TRPV1蛋白水平降低更显著(P<0.05)。BXTZ+GA-amide组较BXTZ组相比,NGF、TrkA、PAR-2、TRPV1水平均升高(P < 0.05)。见图 3、表 3。
|
| 注: 图A,各组食管NGF、TrkA、PAR-2、TRPV1蛋白表达情况;图B,各组背根神经节NGF、TrkA、PAR-2、TRPV1蛋白表达情况。 图 3 各组食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白表达情况 Fig. 3 Expression of NGF, TrkA, PAR-2 and TRPV1 proteins in the esophagus and dorsal root ganglion of each group |
| 组别 | 动物数 | NGF/ACTIN | TrkA/ACTIN | PAR-2/ACTIN | TRPV1/ACTIN | |||||||
| 食管 | 背根神经节 | 食管 | 背根神经节 | 食管 | 背根神经节 | 食管 | 背根神经节 | |||||
| 空白组 | 3 | 0.19±0.04 | 0.11±0.03 | 0.13±0.04 | 0.12±0.03 | 0.34±0.02 | 0.15±0.04 | 0.45±0.06 | 0.18±0.03 | |||
| 模型组 | 3 | 1.05±0.10* | 0.82±0.06* | 1.02±0.10* | 1.01±0.06* | 1.07±0.11* | 0.97±0.04* | 1.09±0.08* | 0.91±0.06* | |||
| BXTZ组 | 3 | 0.47±0.06*# | 0.35±0.05*# | 0.51±0.03*# | 0.33±0.06*# | 0.50±0.04*# | 0.45±0.04*# | 0.60±0.05*# | 0.47±0.03*# | |||
| 奥美拉唑组 | 3 | 0.76±0.04*#△ | 0.63±0.02*#△ | 0.65±0.02*#△ | 0.62±0.03*#△ | 0.74±0.03*#△ | 0.65±0.04*#△ | 0.72±0.04*#△ | 0.69±0.02*#△ | |||
| GW 441756组 | 3 | 0.62±0.04*#△ | 0.50±0.02*#△ | 0.26±0.03*#△ | 0.11±0.05*#△ | 0.62±0.04*#△ | 0.54±0.01*#△ | 0.71±0.03*#△ | 0.53±0.06*#△ | |||
| BXTZ+GA-amide组 | 3 | 1.02±0.04*△ | 0.83±0.07*△ | 1.04±0.12*△ | 1.03±0.05*△ | 1.01±0.07*△ | 0.92±0.07*△ | 1.06±0.13*△ | 0.87±0.04*△ | |||
| 注:与空白组比较,*P<0.05;与模型组比较,#P<0.05;与BXTZ组比较,△P<0.05。 | ||||||||||||
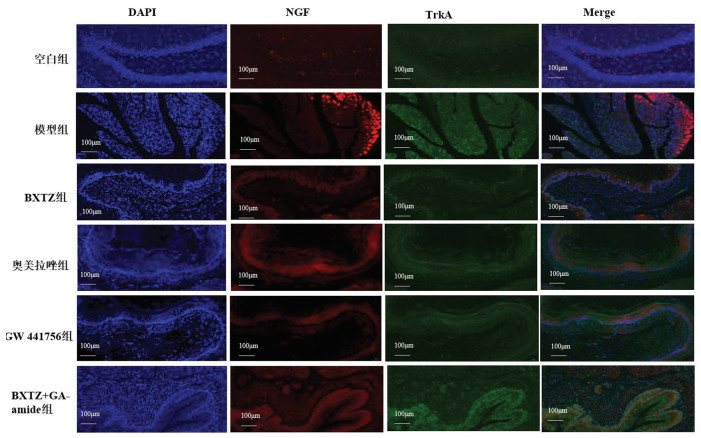
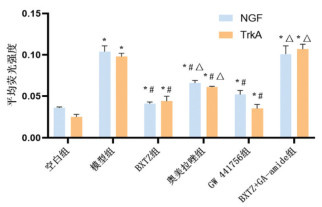
与空白组相比,模型组食管NGF、TrkA平均荧光强度升高(P<0.05)。与模型组相比,BXTZ组、奥美拉唑组、GW 441756组食管NGF、TrkA平均荧光强度降低(P<0.05);BXTZ+GA-amide组食管NGF、TrkA平均荧光强度差异无统计学意义(P > 0.05)。组间比较,BXTZ组较奥美拉唑组、GW 441756组NGF、TrkA平均荧光强度降低更显著(P<0.05);BXTZ+GA-amide组较BXTZ组相比,食管MC计数及密度均升高(P<0.05)。见图 4和图 5。
|
| 图 4 各组食管NGF、TrkA荧光强度 Fig. 4 Fluorescence intensity of NGF, TrkA in each group of the esophagus |
|
| 注:与空白组比较,*P<0.05;与模型组比较,#P<0.05;与BXTZ组比较,△P<0.05;动物数=3。 图 5 各组食管NGF、TrkA平均荧光强度 Fig. 5 Average fluorescence intensity of NGF, TrkA in each group of the esophagus |
NERD的发病机制目前多认为与高酸、食管高敏感、食管动力障碍、抗反流屏障破坏和食管黏膜结构改变等因素密切相关[14]。近年来,越来越多研究关注到心理与应激因素对NERD发病的影响,VH是其中重要机制,包括外周或中枢敏化所致的异常性疼痛与痛觉过敏[5]。相关研究表明[15],仅有45% 的NERD患者在24 h食管pH测定中存在确定的酸暴露,NERD患者食管往往存在外周和中枢的敏化反应,即使较弱的酸暴露也会显示明显症状,食管VH被提出用来解释内镜表现阴性情况下烧心。明确药物改善VH治疗NERD的机制及靶点,或将为PPI应答不佳的患者提供新的治疗选择。
NGF是神经营养因子家族中最重要的成员之一,由包括MC在内的多种细胞分泌,参与促进轴突生长、感觉神经元(痛觉、温度觉)的存活、分化作用[16]。NGF可与其特异性受体TrkA结合,激活感觉神经末梢释放痛觉递质如SP、CGRP,增强痛觉信号传导,引发VH[17]。相关研究表明,NGF、TrkA在慢性应激NERD大鼠模型食管黏膜上皮和脊髓组织中表达显著升高[18]。另有研究显示[19],GERD患者食管黏膜MC及其分泌NGF表达显著增加,神经可塑性及痛觉过敏反应信号被放大。MC是一种广泛存在消化道黏膜的炎性细胞,能通过增殖、浸润、活化脱颗粒等过程影响GERD等消化系统疾病的发展[20]。MC释放NGF后可与其表面TrkA受体结合,继而活化脱颗粒,进一步研究显示,NERD反流物中的MC活化脱颗粒释放类胰蛋白酶(MCT),激活细胞表面及神经元上的PAR-2受体,TrkA与PAR-2两者之间存在协同作用,可共同促进TRPV1表达,从而调控内脏敏感阈值[9,21-23]。TRPV1被证明和神经元感受内脏伤害性刺激直接相关,相关研究表明,GERD食管黏膜存在TRPV1表达升高,胃肠道、下丘脑等其他部位的TRPV1表达也升高,使初级传入神经纤维和脊髓背角神经元兴奋,进而刺激中枢和外周神经系统,导致中枢敏化[24]。因此,抑制NGF/TrkA通路可影响MC脱颗粒过程,对调控NERD食管高敏感发挥重要作用。
NERD归属于中医学“吐酸”“嘈杂”等范畴,临床普遍认为其病机责之于“胃失和降、胃气上逆”[25]。半夏调中颗粒是笔者团队创制治疗GERD的特色制剂,基于“脾胃升降协调论”,在半夏泻心汤基础上化裁而成,以姜半夏为君药,化痰降逆,散结消痞,半夏姜制一则助脾气之升,二则增强降逆之力;炮姜、黄连、黄芩为臣,前者味辛而性温,辛开而少燥热,健脾且补而不滞,后两味降泄燥湿;佐以太子参、甘草、大枣,入脾以建中气,中气足则中焦气机畅达;再配杏仁、厚朴,前者功能降气,后者下气除满,两者皆利肺气,宣畅一身气机,以助中焦升降。全方苦辛并进以调升降、寒热互用以调阴阳、补泻兼施以顾虚实,可使逆乱气机平降和顺,脏腑功能协调平衡,有利于内环境稳定,可使内脏对刺激的感受阈值恢复正常。前期研究表明[10],半夏调中颗粒组较模型组大鼠的敏感阈值降低、MC计数、PAR-2、TRPV1、CGRP与SP等因子表达均降低,表明半夏调中颗粒可通过抑制NERD大鼠MC-PAR-2-TRPV1通路,下调SP、CGRP等神经递质表达,缓解VH状态,但抑制MC活化脱颗粒的上游靶点及具体机制有待进一步研究。
本研究结果显示,相较于空白组,模型组MWT、水平及垂直得分均降低,血清NGF、PAR-2、TRPV1水平、食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平、食管MC计数及密度、NGF、TrkA荧光强度均升高,表明NERD模型大鼠存在食管VH与情绪异常,食管黏膜存在NGF/TrkA通路的激活。与模型组及奥美拉唑组相比,BXTZ组MWT、水平及垂直得分均升高,血清NGF、PAR-2、TRPV1水平、食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平、食管MC计数及密度、NGF、TrkA荧光强度均降低,表明半夏调中颗粒能够抑制MC活化及NGF/TrkA通路相关因子表达,降低内脏感觉阈值,且效果优于奥美拉唑,结果与既往研究一致[10]。组间比较,BXTZ组较TrkA抑制剂(GW 441756)组血清、食管及背根神经节NGF、PAR-2、TRPV1水平、食管MC密度降低更显著,表明半夏调中颗粒能够抑制TrkA受体的激活,且对抑制NGF-TrkAMC-PAR-2-TRPV1信号链具有整体调节作用,而非仅作用于TrkA受体靶点;BXTZ+GA-amide组较BXTZ组相比,MWT、水平及垂直得分均降低,血清NGF、PAR-2、TRPV1水平、食管及背根神经节NGF、TrkA、PAR-2、TRPV1蛋白水平、食管MC计数及密度、NGF、TrkA荧光强度均升高,表明TrkA激动剂可减弱或阻断半夏调中颗粒的作用效应,这种效应可能通过诱导MC活化实现,进一步表明TrkA受体是其调节VH的重要靶点,可通过抑制NGF/TrkA通路激活从而抑制MC活化效应而降低VH。
综上所述,半夏调中颗粒可能通过作用于TrkA受体关键靶点,调控NGF/TrkA通路,抑制MC活化脱颗粒,减轻食管VH,发挥治疗NERD的作用。
| [1] |
ZHOU J, HO V. Non-erosive reflux disease and oesophageal carcinoma[J]. British Medical Journal, 2023, 382: 1979. |
| [2] |
中华医学会消化病学分会胃肠动力学组, 中华医学会消化病学分会胃肠功能性疾病协作组, 中华医学会消化病学分会食管疾病协作组, 等. 中国胃食管反流病诊疗规范[J]. 胃肠病学, 2023, 28(10): 597-607. |
| [3] |
DAVIS T A, GYAWALI C P. Refractory gastroesophageal reflux disease: Diagnosis and management[J]. Journal of Neurogastroenterology and Motility, 2024, 30(1): 17-28. DOI:10.5056/jnm23145 |
| [4] |
SCHNOLL-SUSSMAN F, NIEC R, KATZ P O. Proton Pump Inhibitors: The good, bad, and ugly[J]. Gastrointestinal Endoscopy Clinics of North America, 2020, 30(2): 239-251. DOI:10.1016/j.giec.2019.12.005 |
| [5] |
WONG M, LIU T, YI C, et al. Oesophageal hypervigilance and visceral anxiety relate to reflux symptom severity and psychological distress but not to acid reflux parameters[J]. Alimentary Pharmacology & Therapeutics, 2021, 54(7): 923-930. |
| [6] |
XU C, NIU X. Progress on the Mechanism of visceral hypersensitivity in nonerosive reflux disease[J]. Gastroenterology Research and Practice, 2022, 2022: 4785077. |
| [7] |
LOSA M, MANZ S M, SCHINDLER V, et al. Increased visceral sensitivity, elevated anxiety, and depression levels in patients with functional esophageal disorders and non-erosive reflux disease[J]. Neurogastroenterology and Motility, 2021, 33(9): e14177. DOI:10.1111/nmo.14177 |
| [8] |
CHEN Y, CHENG J, ZHANG Y, et al. Electroacupuncture at ST36 relieves visceral hypersensitivity via the NGF/TrkA/TRPV1 peripheral afferent pathway in a rodent model of post-inflammation rectal hypersensitivity[J]. Journal of Inflammation Research, 2021, 14: 325-339. DOI:10.2147/JIR.S285146 |
| [9] |
江玉翠, 叶凡, 杜莹, 等. 肥大细胞激活相关受体及其功能研究进展[J]. 生理学报, 2019, 71(4): 645-656. |
| [10] |
刘凡, 张书, 郭洁, 等. 半夏调中颗粒介导MC-PAR-2-TRPV1通路调控非糜烂性反流病大鼠模型内脏高敏感的作用机制[J]. 时珍国医国药, 2022, 33(10): 2355-2359. |
| [11] |
LIU J, KOU F, TAN X, et al. Hewei Jiangni granule alleviates visceral hypersensitivity in a rat model of non-erosive reflux disease via transient receptor potential channel signaling[J]. Journal of Traditional Chinese Medical Sciences, 2020, 7(2): 162-170. DOI:10.1016/j.jtcms.2020.05.002 |
| [12] |
JUNG E J, KIM D R. Apoptotic cell death in TrkA-overexpressing cells: Kinetic regulation of ERK phosphorylation and Caspase-7 activation[J]. Molecules and Cells, 2008, 26(1): 12-17. DOI:10.1016/S1016-8478(23)13957-4 |
| [13] |
赵鑫, 陈欣, 谢祥, 等. 调胃消痞方对功能性消化不良大鼠内脏高敏感伴抑郁及5-HT信号的影响[J]. 中成药, 2025, 47(3): 1-7. |
| [14] |
FASS R, BOECKXSTAENS G E, EL-SERAG H, et al. Gastro-oesophageal reflux disease[J]. Nature Reviews Disease Primers, 2021, 7(1): 55. DOI:10.1038/s41572-021-00287-w |
| [15] |
KNOWLES C H, AZIZ Q. Visceral hypersensitivity in non-erosive reflux disease[J]. Gut, 2007, 57(5): 674-683. |
| [16] |
MICERA A, PUXEDDU I, ALOE L, et al. New insights on the involvement of Nerve Growth Factor in allergic inflammation and fibrosis[J]. Cytokine & Growth Factor Reviews, 2003, 14(5): 369-374. |
| [17] |
SCHAIBLE H, EBERSBERGER A, NATURA G. Update on peripheral mechanisms of pain: Beyond prostaglandins and cytokines[J]. Arthritis Research & Therapy, 2011, 13(2): 210. |
| [18] |
贾越博, 李晶, 赵佳琪, 等. 疏肝降逆和胃方抑制NGF/TrkA信号通路改善非糜烂性胃食管反流病肝郁气滞证大鼠的中枢敏化作用[J]. 中药新药与临床药理, 2023, 34(8): 1034-1040. |
| [19] |
USTAOGLU A, DAUDALI F A, D'AFFLITTO M, et al. Identification of novel immune cell signature in gastroesophageal reflux disease: Altered mucosal mast cells and dendritic cell profile[J]. Frontiers In Immunology, 2023, 14: 1282577. DOI:10.3389/fimmu.2023.1282577 |
| [20] |
兰菲, 杨杰. 胃食管反流病患者食管功能与肥大细胞的研究进展[J]. 中华胃食管反流病电子杂志, 2019, 6(1): 34-39. |
| [21] |
JIANG Y, YAU M, KOK W M, et al. Biased signaling by agonists of protease activated receptor 2[J]. ACS Chemical Biology, 2017, 12(5): 1217-1226. DOI:10.1021/acschembio.6b01088 |
| [22] |
INCI K, EDEBO A, OLBE L, et al. Expression of protease-activated-receptor 2(PAR-2) in human esophageal mucosa[J]. Scandinavian Journal of Gastroenterology, 2009, 44(6): 664-671. DOI:10.1080/00365520902783683 |
| [23] |
LIU Z, ZHU J, CHEN Q, et al. Synergistic effects of PAR2 and TrkA exacerbate visceral hypersensitivity induced by chronic pancreatitis in rats[J]. IBRO Neuroscience Reports, 2025, 19: 235-244. DOI:10.1016/j.ibneur.2025.06.012 |
| [24] |
许智超, 年媛媛, 孟宪梅. TRPV1在胃食管反流病患者发病中的作用机制[J]. 现代消化及介入诊疗, 2021, 26(6): 697-701. |
| [25] |
中国中西医结合学会消化系统疾病专业委员会. 胃食管反流病中西医结合诊疗专家共识(2025年)[J]. 中国中西医结合消化杂志, 2025, 33(3): 217-229. |
2. Hubei University of Chinese Medicine, Wuhan 430065, China