 2026, Vol. 43
文章信息
- 雷舒蕾, 王乾昌, 李昕, 等.
- LEI Shulei, WANG Qianchang, LI Xin, et al.
- 中药调控NLRP3炎症小体干预急性胰腺炎的研究进展
- Research progress on traditional Chinese medicine-mediated regulation of the NLRP3 inflammasome in acute pancreatitis
- 天津中医药, 2026, 43(10): 1329-1338
- Tianjin Journal of Traditional Chinese Medicine, 2026, 43(10): 1329-1338
- http://dx.doi.org/10.11656/j.issn.1672-1519.2026.10.14
-
文章历史
- 收稿日期: 2026-06-12


引用本文 |


2. 天津医科大学附属南开医院肝胆胰外科,天津 300100;
3. 天津大学医学院中西医结合医学中心,天津 300100
急性胰腺炎(AP)是由多种原因引起的胰腺内胰酶异常激活,进而导致胰腺自身消化、胰腺及胰周组织炎症损伤的临床常见急腹症之一。其常见病因包括胆石症、酒精相关因素、高甘油三酯血症及内镜逆行胰胆管造影术(ERCP)相关损伤等。多数AP患者预后良好,但部分患者可进展为中度重症急性胰腺炎(MSAP)或重症急性胰腺炎(SAP),出现胰腺坏死、全身炎症反应、肠屏障损伤及多器官功能障碍[1-2]。目前AP治疗仍以液体复苏、镇痛、营养支持和器官功能支持为主,针对炎症级联反应的特异性干预手段仍有限[3-4]。
NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎症小体是参与固有免疫炎症反应调控的重要多蛋白复合体,在AP炎症持续放大、细胞焦亡及远隔器官损伤中发挥重要作用[5-6]。因此,围绕NLRP3炎症小体寻找有效干预策略,对阐明AP炎症调控机制及拓展治疗思路具有重要意义。
中医药治疗AP多从“腹痛”“脾心痛”“胰瘅”等范畴认识,认为其病机与湿热内蕴、腑气不通、热毒炽盛、瘀毒互结等密切相关,常采用清热解毒、通里攻下、活血化瘀等治法[7]。近年来研究发现,多种中药活性成分及复方可通过调控NLRP3炎症小体及其相关信号通路,发挥抗炎、抗氧化、抑制细胞焦亡及保护肠屏障等作用[8]。基于此,本文围绕中药活性成分及复方调控NLRP3炎症小体干预AP的作用机制进行综述,重点梳理相关基础研究和临床前研究进展,并结合当前有限的临床证据及安全性相关问题,对未来研究方向进行讨论,以期为AP的中医药防治机制研究提供参考。
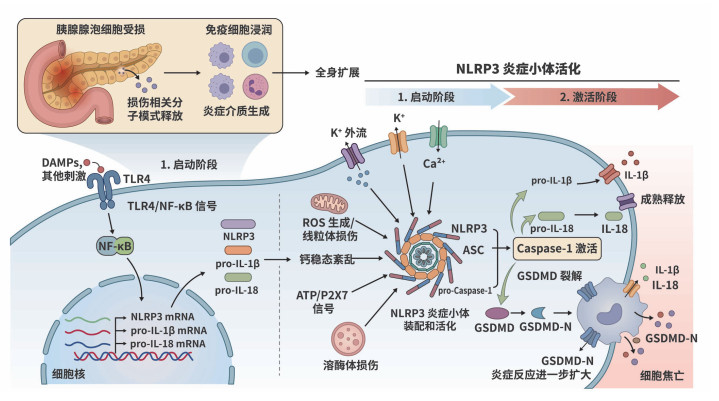
1 AP与NLRP3炎症小体AP的病理进展以炎症反应持续放大为重要特征。胰腺腺泡细胞受损后,损伤相关分子模式(DAMPs)释放、免疫细胞浸润和炎症介质生成相互促进,可推动病变由胰腺局部向全身扩展[9]。
NLRP3炎症小体主要由NLRP3、凋亡相关斑点样蛋白(ASC)和半胱氨酸天冬氨酸蛋白酶-1前体(pro-Caspase-1)组成,是固有免疫应答中的重要多蛋白复合体。其活化通常包括启动和激活两个阶段:启动阶段多与Toll样受体4(TLR4)/核因子-κB(NF-κB)信号有关,可诱导NLRP3、白细胞介素-1β(IL-1β)和白细胞介素-18(IL-18)前体表达;激活阶段则受活性氧(ROS)生成、线粒体损伤、钙稳态紊乱、K+外流、三磷酸腺苷(ATP)/嘌呤能P2X7受体(P2X7)信号及溶酶体损伤等因素影响,进一步促进炎症小体装配和活化。NLRP3炎症小体活化后,可促进Caspase-1激活,进而介导IL-1β、IL-18成熟释放,并通过焦孔蛋白D(GSDMD)诱导细胞焦亡,推动AP炎症反应进一步扩大[6, 10]。
近年来研究显示,NLRP3炎症小体不仅参与胰腺局部炎症损伤,还与肠屏障破坏、急性肺损伤及AP重症化过程密切相关[11]。因此,明确其在AP中的作用,有助于为后文阐述中药活性成分及复方调控NLRP3炎症小体干预AP提供理论基础。NLRP3炎症小体在AP中的启动、激活及其介导炎症因子成熟释放和细胞焦亡的过程见图 1。
|
| 注:图片使用Adobe Illustrator 2020软件绘制。DAMPs,损伤相关分子模式;TLR4,Toll样受体4;NF-κB,核因子-κB;NLRP3,NOD样受体热蛋白结构域相关蛋白3;ASC,凋亡相关斑点样蛋白;Caspase-1,半胱氨酸天冬氨酸蛋白酶-1;pro-Caspase-1,半胱氨酸天冬氨酸蛋白酶-1前体;pro-IL-1β,白细胞介素-1β前体;pro-IL-18,白细胞介素-18前体;IL-1β,白细胞介素-1β;IL-18,白细胞介素-18;ROS,活性氧;ATP,三磷酸腺苷;P2X7,嘌呤能P2X7受体;GSDMD,焦孔蛋白D;GSDMD-N,GSDMD N端片段;mRNA,信使核糖核酸。 图 1 NLRP3炎症小体活化参与急性胰腺炎炎症反应及细胞焦亡的机制示意图 Fig. 1 Schematic diagram of NLRP3 inflammasome activation in inflammation and pyroptosis during acute pancreatitis |
蒽醌类化合物是大黄、何首乌、决明子等中药的重要活性成分,具有抗炎、抗氧化及免疫调节等药理作用[12]。在AP相关研究中,蒽醌类成分主要集中于大黄素和大黄酸。
大黄素是目前研究较多的蒽醌类单体。研究显示,大黄素可在牛磺胆酸钠诱导的SAP大鼠模型中降低淀粉酶、脂肪酶及IL-1β、IL-18水平,并下调胰腺组织P2X7、NLRP3、ASC和Caspase-1表达,提示其可通过抑制P2X7/NLRP3炎症通路减轻胰腺局部炎症损伤[13]。在AP或SAP相关急性肺损伤模型中,大黄素的作用进一步延伸至远隔器官保护。相关研究表明,大黄素可通过调节核因子E2相关因子2(Nrf2)/血红素加氧酶-1(HO-1)/NLRP3、冷诱导核糖核酸结合蛋白(CIRP)/NLRP3/IL-1β/C-X-C基序趋化因子配体1(CXCL1)等通路,抑制肺组织炎症小体活化、炎症细胞募集及中性粒细胞浸润[14-16]。此外,大黄素还可下调NLRP3、ASC、Caspase-1、GSDMD及其N端片段(GSDMD-N)表达,抑制NLRP3/Caspase-1/GSDMD介导的肺泡巨噬细胞焦亡,从而减轻AP相关肺损伤[17]。Zhang等[18]发现,大黄酸可改善AP模型中的肠道菌群紊乱,降低三甲胺N-氧化物(TMAO)相关代谢水平,并抑制TMAO介导的TLR4/NF-κB/NLRP3信号活化,从而减轻腺泡细胞炎症反应和AP损伤。TMAO是典型的宿主-菌群共代谢产物,主要由膳食胆碱、磷脂酰胆碱、肉碱等前体经肠道菌群代谢生成三甲胺(TMA),再经宿主肝脏含黄素单加氧酶3(FMO3)氧化形成[19-21]。因此,大黄酸对TMAO水平的影响可能并非单纯抑制生成,而是与其调节肠道菌群结构及TMA/TMAO相关代谢过程有关,具体作用环节仍需进一步阐明。综上,蒽醌类成分主要通过抑制NLRP3炎症小体活化、减少IL-1β和IL-18释放及减轻Caspase-1/GSDMD介导的细胞焦亡改善AP损伤。目前相关研究以大黄素较为集中,大黄酸则从“肠道菌群—代谢物—TLR4/NF-κB/NLRP3”角度为该类成分干预AP提供了新的机制线索。作用机制总结见表 1。
| 中药成分 | 实验模型 | 作用机制 | 参考文献 |
| 大黄素 | 牛磺胆酸钠诱导SAP大鼠模型 | 下调P2X7、NLRP3、ASC和Caspase-1表达, 降低IL-1β、IL-18水平, 减轻胰腺炎症损伤 | [13] |
| 大黄素 | AP相关急性肺损伤大鼠模型 | 激活Nrf2/HO-1信号, 下调NLRP3、ASC和Caspase-1表达, 抑制NLRP3炎症小体活化 | [14] |
| 大黄素 | SAP相关急性肺损伤大鼠及巨噬细胞模型 | 抑制CIRP介导的NLRP3/IL-1β/CXCL1信号, 减少中性粒细胞浸润 | [15] |
| 大黄素 | SAP相关急性肺损伤大鼠模型 | 下调NLRP3、ASC和活化型Caspase-1表达, 降低IL-1β、IL-18水平, 减少中性粒细胞募集 | [16] |
| 大黄素 | 牛磺胆酸钠诱导AP大鼠模型; 雨蛙素联合脂多糖诱导AP小鼠模型 | 下调NLRP3、ASC、Caspase-1、GSDMD及GSDMD-N端表达, 抑制NLRP3/Caspase-1/GSDMD介导的肺泡巨噬细胞焦亡 | [17] |
| 大黄酸 | AP动物模型及腺泡细胞相关实验 | 调节肠道菌群及TMAO相关代谢, 抑制TMAO介导的TLR4/NF-κB/NLRP3信号活化, 减轻腺泡细胞炎症反应和胰腺损伤 | [18] |
黄酮类化合物广泛存在于黄芩、金银花、菊花、槐花等中药,在炎症信号转导、氧化应激及免疫细胞功能调节中具有重要作用[22]。在AP研究中,黄芩素、柚皮素、紫云英苷和松属素等研究相对较有代表性。
黄芩素是黄芩中的主要黄酮类成分之一[23]。研究显示,黄芩素可在高脂血症性AP模型中减轻胰腺组织损伤、炎症反应和腺泡细胞焦亡,其作用机制可能与上调微小核糖核酸-192-5p(miR-192-5p)、抑制硫氧还蛋白相互作用蛋白(TXNIP)表达,并进一步降低NLRP3/Caspase-1通路活化有关[24]。进一步研究发现,黄芩素还可通过抑制高迁移率族蛋白B1(HMGB1)/TLR4/NLRP3通路,降低NLRP3、ASC、活化型Caspase-1及GSDMD-N端表达,减少IL-1β、IL-18释放,并抑制经典活化型巨噬细胞(M1型巨噬细胞)极化,从而减轻高脂血症性AP损伤[25]。上述研究提示,黄芩素不仅可作用于腺泡细胞焦亡,还可通过调节巨噬细胞炎症表型影响AP炎症放大过程。
柚皮素和紫云英苷的研究更突出肠屏障和肠道菌群环节。柚皮素可通过调节NLRP3及Nrf2/HO-1通路减轻AP胰腺炎症损伤[26];在SAP相关肠损伤模型中,柚皮素还可通过激活芳香烃受体(AhR)信号抑制NLRP3炎症小体活化,改善肠屏障损伤[27]。紫云英苷则被报道可靶向NLRP3信号通路并调节肠道菌群稳态,从而改善胰腺损伤和系统性炎症反应[28]。
木犀草素和松属素相关研究主要从氧化应激和炎症信号角度展开。木犀草素可下调热休克蛋白70(HSP70)、ASC、NLRP3、Caspase-1和NF-κB信使核糖核酸(mRNA)表达,减轻实验性胰腺炎中的氧化应激和炎症反应,但目前证据主要集中于转录水平变化,仍需蛋白表达及功能实验进一步验证[29]。松属素则可通过抑制TLR4/NF-κB/NLRP3炎症信号,并调节微小核糖核酸-34a-5p(miR-34a-5p)/沉默信息调节因子1(SIRT1)/Nrf2/HO-1通路,发挥抗炎、抗氧化和抗凋亡作用[30]。
总体来看,黄酮类成分对NLRP3炎症小体的调控主要涉及腺泡细胞焦亡、巨噬细胞极化、肠屏障保护及氧化应激等环节。但不同成分的证据强度并不一致,部分研究仍需通过通路干预和功能实验进一步验证。作用机制总结见表 2。
| 中药成分 | 实验模型 | 作用机制 | 参考文献 |
| 黄芩素 | 高脂血症性AP大鼠模型; 棕榈酸联合胆囊收缩素八肽(CCK-8)诱导胰腺腺泡细胞模型 | 上调miR-192-5p, 抑制TXNIP表达, 下调NLRP3/Caspase-1通路相关蛋白水平, 减轻细胞焦亡和炎症反应 | [24] |
| 黄芩素 | 高脂饮食联合牛磺胆酸钠诱导高脂血症性AP大鼠模型; 棕榈酸刺激巨噬细胞模型 | 抑制HMGB1/TLR4/NLRP3通路, 降低NLRP3、ASC、活化型Caspase-1和GSDMD-N端表达, 减少IL-1β、IL-18释放并抑制M1巨噬细胞极化 | [25] |
| 柚皮素 | 雨蛙素诱导轻型AP小鼠模型; L-精氨酸诱导SAP小鼠模型 | 调节NLRP3及Nrf2/HO-1通路, 减轻胰腺炎症损伤 | [26] |
| 柚皮素 | 雨蛙素联合脂多糖诱导SAP相关肠损伤小鼠模型; RAW264.7小鼠巨噬细胞模型 | 激活AhR信号, 抑制NLRP3炎症小体活化, 改善SAP相关肠屏障损伤 | [27] |
| 紫云英苷 | 雨蛙素诱导AP小鼠模型; AR42J胰腺腺泡细胞模型 | 靶向NLRP3信号通路并调节肠道菌群稳态, 改善胰腺损伤和系统性炎症反应 | [28] |
| 木犀草素 | 乙醇联合雨蛙素诱导实验性胰腺炎大鼠模型 | 下调HSP70、ASC、NLRP3、Caspase-1和NF-κB mRNA表达, 减轻氧化应激和炎症反应 | [29] |
| 松属素 | L-精氨酸诱导AP大鼠模型 | 抑制TLR4/NF-κB/NLRP3炎症信号, 并调节miR-34a-5p/SIRT1/Nrf2/HO-1通路, 发挥抗炎、抗氧化和抗凋亡作用 | [30] |
酚酸类及其他多酚类成分多含酚羟基结构,在清除氧化应激、维持线粒体稳态及调控炎症信号方面具有一定优势[31]。AP在发生发展过程中,线粒体功能障碍、ROS生成和NLRP3炎症小体活化关系密切,三者共同参与腺泡细胞损伤及炎症反应扩大[32]。因此,该类成分与AP中NLRP3介导的细胞焦亡及肠屏障损伤具有较强联系。
绿原酸是金银花等中药的常见酚酸类成分[33]。研究显示,绿原酸可通过激活Nrf2/HO-1信号并抑制NF-κB和NLRP3炎症小体活化,降低炎症因子水平,减轻SAP胰腺组织损伤[34]。咖啡酸则进一步涉及焦亡过程调控。研究发现咖啡酸能够下调NLRP3、ASC、Caspase-1 p20、活化型半胱氨酸天冬氨酸蛋白酶-11(Caspase-11)、GSDMD-N端和IL-1β等焦亡相关指标,改善AP相关肠屏障损伤[35]。结果提示,酚酸类成分可能通过抑制经典及非经典焦亡通路,参与AP肠道损伤和炎症扩展的调控。
除酚酸类成分外,虎杖苷和白藜芦醇等其他多酚类成分也显示出较明确的NLRP3调控潜力。虎杖苷可直接作用于热休克蛋白90α(HSP90α),干扰HSP90α与NLRP3的相互作用,从而破坏NLRP3复合体稳定性并减轻AP炎症损伤[36]。与单纯观察NLRP3表达变化相比,该研究对炎症小体装配过程具有更明确的机制指向。白藜芦醇则可通过激活SIRT1/过氧化物酶体增殖物激活受体γ辅激活因子-1α(PGC-1α)通路促进线粒体生物发生,改善SAP中的线粒体功能障碍,抑制NLRP3炎症小体及下游焦亡相关蛋白活化[37]。
总体而言,酚酸及其他多酚类成分的作用特点主要体现在调节氧化应激和线粒体功能,进而影响NLRP3炎症小体活化及细胞焦亡过程。作用机制总结见表 3。
| 中药成分 | 实验模型 | 作用机制 | 参考文献 |
| 绿原酸 | SAP大鼠模型; 雨蛙素诱导AR42J细胞模型 | 激活Nrf2/HO-1信号, 抑制NF-κB和NLRP3炎症小体活化, 降低炎症因子水平并减轻胰腺损伤 | [34] |
| 咖啡酸 | AP小鼠模型; AP相关肠屏障损伤模型 | 下调NLRP3、ASC、Caspase-1 p20、活化型Caspase-11、GSDMD-N端和IL-1β等焦亡相关指标, 改善肠屏障损伤 | [35] |
| 虎杖苷 | 雨蛙素诱导AP模型; NLRP3复合体相关实验 | 直接结合HSP90α, 干扰HSP90α-NLRP3相互作用, 破坏NLRP3复合体稳定性, 减轻AP炎症损伤 | [36] |
| 白藜芦醇 | 牛磺胆酸钠诱导SAP大鼠模型; AR42J细胞模型 | 激活SIRT1/PGC-1α通路, 促进线粒体生物发生, 改善线粒体功能, 并抑制NLRP3炎症小体及焦亡相关蛋白活化 | [37] |
生物碱类成分是中药的重要含氮天然产物,在炎症反应、氧化应激及细胞死亡调控中的作用逐渐受到关注。已有研究表明,药用植物来源活性成分可通过影响NLRP3炎症小体活化、炎症因子释放及细胞焦亡等过程参与炎症性疾病干预[38]。与蒽醌类、黄酮类及多酚类相比,生物碱类成分调控NLRP3炎症小体干预AP的直接研究相对较少,目前主要涉及川芎嗪、山莨菪碱和小檗碱等。
川芎嗪是川芎中的代表性生物碱类成分。Li等[39]在雨蛙素诱导的AP动物模型及AR42J细胞模型中发现,川芎嗪可减轻胰腺损伤和炎症反应,降低IL-1β、IL-18水平,并下调NLRP3、ASC、Caspase-1和GSDMD等焦亡相关蛋白表达。进一步机制研究显示,敲低Nrf2后,川芎嗪对NLRP3炎症小体活化及细胞焦亡的抑制作用减弱,提示Nrf2/HO-1可能是其调控NLRP3/Caspase-1/GSDMD轴的重要上游环节。该研究从通路干预角度为川芎嗪抗炎、抗焦亡作用提供了较有力支持。
山莨菪碱和小檗碱也被报道与NLRP3相关炎症反应调控有关。Li等[40]采用脂多糖(LPS)诱导的胰腺腺泡细胞炎症损伤模型发现,山莨菪碱可抑制NLRP3炎症小体活化及NF-κB信号,减轻腺泡细胞炎症反应。由于该模型并非完整的AP动物模型,该研究更适合作为山莨菪碱调节胰腺腺泡细胞炎症损伤的初步证据,其在AP复杂病理环境中的作用仍需进一步验证。小檗碱是黄连、黄柏等中药中的异喹啉类生物碱。Yang等[41]研究发现,小檗碱可减轻雨蛙素诱导的AP细胞损伤及体内炎症损伤,并降低Caspase-1、IL-1β、IL-18、NLRP3和GSDMD-N端等焦亡相关指标。其作用可能与抑制凡宁-1(VNN1)表达及NF-κB通路活化有关,提示小檗碱可能通过上游炎症信号调节间接影响NLRP3相关焦亡过程。
目前,生物碱类成分在AP中的NLRP3调控研究仍处于积累阶段。现有研究提示,生物碱类成分可能通过Nrf2/HO-1、NF-κB、VNN1等上游环节间接调控NLRP3炎症小体及焦亡过程。作用机制总结见表 4。
与前述成分类别相比,皂苷类成分调控NLRP3炎症小体干预AP的研究数量较少,现有研究主要集中于人参皂苷Rg1和柴胡皂苷d,分别涉及SAP相关肺损伤和胰腺腺泡细胞焦亡两个方面。
江勇等[42]采用牛磺胆酸钠诱导SAP大鼠模型发现,人参皂苷Rg1可降低血清淀粉酶和脂肪酶活性,减轻胰腺及肺组织病理损伤,降低肺泡灌洗液中IL-1β、白细胞介素-6(IL-6)、IL-18和肿瘤坏死因子-α(TNF-α)水平,并下调肺组织NLRP3、ASC和Caspase-1的mRNA及蛋白表达。该研究主要支持其对SAP相关肺部炎症损伤的保护作用,也提示NLRP3炎症小体可能参与其减轻远隔器官损伤的过程。柴胡皂苷d则从线粒体损伤和焦亡调控角度补充了皂苷类成分干预AP的机制认识。Chen等[43]在雨蛙素诱导的AR42J细胞模型中发现,柴胡皂苷d可改善线粒体损伤、减少线粒体脱氧核糖核酸(mtDNA)释放,并抑制环鸟苷酸-腺苷酸合成酶(cGAS)/干扰素基因刺激因子(STING)信号和NLRP3/Caspase-1通路,减轻胰腺腺泡细胞焦亡。该结果提示,柴胡皂苷d可能通过“线粒体损伤—cGAS-STING—NLRP3/Caspase-1”轴影响胰腺腺泡细胞炎症性死亡过程。
由此可见,皂苷类成分目前虽研究数量有限,但其作用线索与AP相关肺损伤、线粒体损伤及焦亡调控关系较为密切。作用机制总结见表 5。
在AP的中医药干预研究中,中药复方一直是临床应用和机制探索的重要内容。与前述单体活性成分研究不同,复方更注重方药组成之间的协同作用,其干预效应往往涉及炎症反应、肠屏障功能、细胞焦亡及远隔器官损伤等多个方面。近年来,清胰汤、大承气汤、柴芩承气汤等复方可通过调控NLRP3炎症小体及相关信号通路减轻AP损伤。因此,本部分对相关复方的研究进行归纳,有助于进一步认识中药复方调控NLRP3炎症小体干预AP的作用特点及潜在机制。
3.1 清胰汤清胰汤是临床治疗AP的常用复方,具有清热解毒、通里攻下、行气止痛等功效,常用于AP湿热蕴结、腑气不通等证候。相关指南提示,清胰汤及其加减方在改善AP腹痛、腹胀、肠功能障碍及炎症反应等方面显示出较好的应用前景[44]。Wang等[45]研究发现,清胰汤可减轻SAP相关急性肺损伤小鼠的胰腺和肺组织病理损伤,改善肠屏障功能,并调节肠道菌群结构。进一步研究显示,清胰汤能够增加短链脂肪酸(SCFAs)产生菌的相对丰度,提高丙酸、丁酸等SCFAs水平,其作用可能与调节腺苷单磷酸活化蛋白激酶(AMPK)/NF-κB/NLRP3通路、抑制肺部炎症反应有关。An等[46]则从腺泡细胞和巨噬细胞炎症反应角度探讨了清胰汤的作用机制,发现清胰汤可降低雨蛙素诱导AP小鼠的血清淀粉酶水平,减轻胰腺水肿和炎症细胞浸润,并下调髓样分化因子88(MyD88)、NF-κB、NLRP3、Caspase-1、GSDMD等蛋白表达,提示其可能通过抑制NF-κB/NLRP3/Caspase-1相关炎症和焦亡通路减轻AP损伤。此外,闫铁静等[47]纳入AP患者108例,其中清胰汤加减联合常规治疗组和常规治疗组各54例。结果显示,联合组临床总有效率高于常规组(P < 0.05);治疗后,联合组D-乳酸、二胺氧化酶、内毒素及IL-6等肠黏膜屏障和炎症相关指标均低于常规组,而两组不良反应发生率差异无统计学意义。该研究提示了清胰汤加减可能有助于改善AP患者肠黏膜屏障功能和肠源性炎症反应,为其临床应用提供了一定的观察依据;其是否通过调控NLRP3/Caspase-1/GSDMD相关通路发挥作用,仍有待后续研究进一步明确。清胰汤相关研究将“通腑泄热”治法与肠道菌群、SCFAs、NLRP3炎症小体及AP相关肺损伤相联系,体现出从肠屏障和炎症调控角度干预AP的特点。
3.2 大承气汤大承气汤出自汉代张仲景的《伤寒论》,由大黄、厚朴、枳实和芒硝组成,是通里攻下法的代表方剂,具有峻下热结、通腑泄热之功效[48]。AP患者常伴有腑气不通、腹胀、肠麻痹及炎症反应持续加重等表现,大承气汤已被用于AP及SAP的相关治疗研究中。李劼等[49]采用雨蛙素联合LPS诱导SAP小鼠模型,观察大承气汤对HMGB1及NLRP3炎症小体的调控作用。研究发现,大承气汤可降低模型小鼠血清HMGB1、IL-1β、IL-18、胰蛋白酶、乳酸脱氢酶和髓过氧化物酶水平,减轻胰腺组织水肿、出血和炎性坏死。进一步检测显示,大承气汤可下调胰腺组织P2X7、NLRP3、ASC和Caspase-1表达,提示其可能通过抑制HMGB1表达及P2X7/NLRP3炎症小体活化,减少IL-1β、IL-18等炎症因子释放,从而减轻SAP胰腺炎症损伤。目前,大承气汤与NLRP3炎症小体相关研究主要集中于炎症通路调控,对其是否影响NLRP3/Caspase-1/GSDMD介导的细胞焦亡,以及是否涉及肠屏障保护和远隔器官损伤改善等环节,尚缺乏充分证据,相关机制仍需进一步研究。
3.3 柴芩承气汤柴芩承气汤是在承气类方的基础上化裁而成,兼具疏肝理气、清热解毒、通里攻下之意,临床常用于AP肝胆湿热、腑气不通及热毒内结等证候。与单纯通下方剂相比,柴芩承气汤更强调疏泄肝胆、清解热毒和通腑导滞的综合作用,其现代机制研究也较多集中于炎症信号、细胞焦亡和胰腺组织保护等方面[50]。药效物质基础与机制研究显示,柴芩承气汤可通过多成分、多靶点方式调控AP炎症反应。相关研究提示,该方可影响TLR4/NLRP3炎症信号,降低炎症因子水平,减轻胰腺组织损伤[51]。在细胞焦亡方面,柴芩承气汤可下调NLRP3、Caspase-1、GSDMD及其相关炎症因子表达,抑制NLRP3/Caspase-1/GSDMD轴介导的腺泡细胞焦亡,从而减轻AP炎症损伤[52]。
从中医治法与现代机制的关系看,柴芩承气汤的优势在于兼顾“疏、清、通”3个方面:疏肝理气有助于调畅气机,清热解毒针对热毒炽盛,通里攻下则对应腑气不通。现代研究所揭示的TLR4/NLRP3炎症通路及GSDMD介导焦亡调控,可能为其减轻AP炎症级联反应提供重要的生物学基础。总体而言,柴芩承气汤是目前复方干预AP细胞焦亡机制中研究相对集中的代表方之一。
3.4 葛根芩连汤葛根芩连汤出自《伤寒论》,具有解表清里、清热止利之功,多用于表里俱热、湿热下注等证候。现代药理研究表明,该方具有抗炎、调节肠道功能及改善代谢紊乱等作用[53]。在AP相关研究中,葛根芩连汤目前主要见于内镜逆行胰胆管造影术后胰腺炎(PEP)预防研究,属于AP特殊类型的干预证据。PEP是ERCP后较常见的并发症,既有系统评价显示,PEP仍具有一定发生率,少数患者可进展为MSAP甚至SAP,并增加临床负担[54]。因此,围绕PEP发生机制及干预策略开展研究具有一定意义。葛根芩连汤相关研究提示,其可通过抑制NLRP3炎症小体活化,降低Caspase-1、GSDMD及炎症因子表达,减轻ERCP后胰腺组织损伤[55]。进一步采用NLRP3抑制剂和基因沉默等方法,支持NLRP3炎症小体介导的细胞焦亡参与PEP损伤过程。由于PEP属于AP的特殊类型,葛根芩连汤在胆源性、高脂血症性或酒精相关AP中是否具有类似作用,仍需更多研究验证。
3.5 清解化攻方清解化攻方是基于AP“热毒、腑实、瘀滞”等病机设立的复方,治法上强调清热解毒、通腑泄浊、化瘀攻下,相关临床研究多用于瘀毒互结型AP的辅助治疗[56-57]。近年来清解化攻方在NLRP3炎症小体及细胞焦亡调控方面的研究逐渐增多,其中非编码RNA调控焦亡和炎症信号通路抑制是目前较受关注的两个方向。
Feng等[58]从环状核糖核酸Hipk3(circHipk3)调控角度观察清解化攻方对AP胰腺腺泡细胞焦亡的影响。研究显示,清解化攻方可减轻AP模型中的胰腺损伤,并抑制胰腺腺泡细胞焦亡。机制上,circHipk3可通过影响微小核糖核酸-193a-5p(miR-193a-5p)调节NLRP3表达,进而参与胰腺腺泡细胞焦亡过程。清解化攻方干预后,circHipk3/miR-193a-5p/NLRP3轴相关异常得到调节,提示其可能通过影响非编码RNA介导的NLRP3活化过程,减轻AP胰腺腺泡细胞焦亡损伤。冯敏超等[59]进一步观察了清解化攻方对SAP小鼠胰腺炎症信号的影响。该研究采用5%牛磺胆酸钠(STC)逆行胰胆管注射建立SAP小鼠模型,发现清解化攻方干预后,小鼠血清α-淀粉酶、脂肪酶、IL-1β、IL-6、白细胞介素-8(IL-8)、IL-18和TNF-α水平均降低,胰腺组织炎症细胞浸润和病理损伤减轻。进一步检测显示,清解化攻方可下调胰腺组织中NLRP3、TLR4、NF-κB的mRNA表达、阳性表达率及蛋白表达水平,同时降低IL-1β和IL-6蛋白表达。结果提示,清解化攻方可能通过抑制NLRP3/TLR4/NF-κB信号通路相关蛋白活化,减少炎症介质释放,从而对SAP胰腺组织发挥保护作用。
从现有机制研究来看,清解化攻方主要集中于NLRP3炎症小体活化及其上游调控环节,非编码RNA—NLRP3轴可能是其干预AP焦亡损伤的重要方向,后续仍需结合临床样本及通路干预实验进一步验证。
4 总结与展望NLRP3炎症小体参与AP炎症反应放大、细胞焦亡、肠屏障损伤及远隔器官损伤等多个病理过程,是中药干预AP研究中值得关注的重要作用环节。现有研究显示,多种中药活性成分及复方可通过调控NLRP3炎症小体及其相关信号通路,减轻胰腺组织损伤、炎症因子释放和细胞焦亡反应,并在改善肠屏障功能、调节肠道菌群、缓解AP相关肺损伤等方面显示出一定作用。中药活性成分研究有助于明确具体物质基础和潜在作用靶点,复方研究则更能体现中医辨证论治和多药配伍的整体调节特点,两者共同拓展了中医药防治AP的机制认识。
但目前相关证据仍以动物实验和体外研究为主,临床样本中针对NLRP3/Caspase-1/GSDMD轴的动态观察不足,对中药调控NLRP3炎症小体与改善胰腺局部炎症、肠屏障损伤及远隔器官损伤之间关系的系统验证仍较有限。部分研究仅观察到炎症小体相关指标下降,尚不能证明药物直接靶向NLRP3或完全依赖NLRP3通路发挥作用。因此,未来仍需结合药代动力学、多组学分析、基因干预、特异性抑制剂和临床样本验证,进一步明确中药活性成分及复方调控NLRP3炎症小体的关键环节、剂量效应关系及最佳干预时机。
此外,中药活性成分及复方的安全性和治疗窗口亦需在后续研究中加以重视。大黄素、小檗碱等成分虽在AP相关基础研究中显示出抗炎、抗氧化及调控NLRP3炎症小体的潜力,但其安全性可能受剂量、给药时间、给药途径及合并用药等因素影响。已有研究提示,大黄素在较高剂量或长期暴露条件下可能出现肝肾毒性相关风险[60-61],小檗碱则需关注心脏电生理安全性及药物相互作用等潜在问题[62]。因此,未来研究不宜仅关注炎症小体相关指标改善,还应结合AP患者器官功能波动及多药联合治疗等临床特点,同步开展肝肾功能、心电图、合并用药及长期安全性观察,以进一步明确中药活性成分及复方干预AP的安全剂量范围和治疗窗口。
在临床转化方面,仍需开展多中心、大样本、随机、双盲、安慰剂或标准治疗对照的高质量临床研究,并根据AP的病因、疾病严重程度、病程阶段及中医证候进行分层分析。临床研究除观察腹痛缓解时间、肠功能恢复时间、血清淀粉酶和脂肪酶水平、炎症因子变化、住院时间、并发症发生率及转重率等常规结局外,还应结合NLRP3、ASC、Caspase-1、GSDMD、IL-1β、IL-18及肠屏障功能指标进行机制验证,从而明确中药调控NLRP3炎症小体在AP临床治疗中的实际价值。随着相关机制、安全性评价和临床证据的不断完善,中医药调控NLRP3炎症小体有望为AP炎症损伤及相关器官损害的综合防治提供参考。
| [1] |
MEDEROS M A, REBER H A, GIRGIS M D. Acute pancreatitis: A review[J]. The Journal of the American Medical Association, 2021, 325(4): 382-390. DOI:10.1001/jama.2020.20317 |
| [2] |
中华医学会外科学分会胰腺外科学组. 中国急性胰腺炎诊治指南(2021)[J]. 浙江实用医学, 2021, 26(6): 511-519, 535. |
| [3] |
TENNER S, VEGE S S, SHETH S G, et al. American college of gastroenterology guidelines: Management of acute pancreatitis[J]. The American Journal of Gastroenterology, 2024, 119(3): 419-437. DOI:10.14309/ajg.0000000000002645 |
| [4] |
SZATMARY P, GRAMMATIKOPOULOS T, CAI W, et al. Acute pancreatitis: Diagnosis and treatment[J]. Drugs, 2022, 82(12): 1251-1276. DOI:10.1007/s40265-022-01766-4 |
| [5] |
SHARMA B R, KANNEGANTI T D. NLRP3 inflammasome in cancer and metabolic diseases[J]. Nature Immunology, 2021, 22(5): 550-559. DOI:10.1038/s41590-021-00886-5 |
| [6] |
PAPANTONIOU K, AGGELETOPOULOU I, MICHAILIDES C, et al. Understanding the role of NLRP3 inflammasome in acute pancreatitis[J]. Biology, 2024, 13(11): 945. DOI:10.3390/biology13110945 |
| [7] |
李慧臻, 周正华, 程红杰, 等. 急性胰腺炎中医诊疗专家共识(2023)[J]. 中华中医药杂志, 2024, 39(7): 3549-3557. |
| [8] |
HE X, XIA J, CHEN Q, et al. An overview of current research on the modulation of NLRP3 inflammasome by traditional Chinese medicine to combat acute pancreatitis[J]. Frontiers in Molecular Biosciences, 2025, 12: 1634132. DOI:10.3389/fmolb.2025.1634132 |
| [9] |
WILEY M B, MEHROTRA K, BAUER J, et al. Acute pancreatitis: Current clinical approaches, molecular pathophysiology, and potential therapeutics[J]. Pancreas, 2023, 52(6): e335-e343. DOI:10.1097/MPA.0000000000002259 |
| [10] |
LIU T, WANG Q, DU Z, et al. The trigger for pancreatic disease: NLRP3 inflammasome[J]. Cell Death Discovery, 2023, 9(1): 246. DOI:10.1038/s41420-023-01550-7 |
| [11] |
GAO L, DONG X, GONG W, et al. Acinar cell NLRP3 inflammasome and gasdermin D(GSDMD) activation mediates pyroptosis and systemic inflammation in acute pancreatitis[J]. British Journal of Pharmacology, 2021, 178(17): 3533-3552. DOI:10.1111/bph.15499 |
| [12] |
XIN D, LI H, ZHOU S, et al. Effects of anthraquinones on immune responses and inflammatory diseases[J]. Molecules, 2022, 27(12): 3831. DOI:10.3390/molecules27123831 |
| [13] |
ZHANG Q, TAO X, XIA S, et al. Emodin attenuated severe acute pancreatitis via the P2X ligand-gated ion channel 7/NOD-like receptor protein 3 signaling pathway[J]. Oncology Reports, 2019, 41(1): 270-278. |
| [14] |
GAO Z, SUI J, FAN R, et al. Emodin protects against acute pancreatitis-associated lung injury by inhibiting NLRP3 inflammasome activation via Nrf2/HO-1 signaling[J]. Drug Design, Development and Therapy, 2020, 14: 1971-1982. DOI:10.2147/DDDT.S247103 |
| [15] |
XU Q, WANG M, GUO H, et al. Emodin alleviates severe acute pancreatitis-associated acute lung injury by inhibiting the cold-inducible RNA-binding protein(CIRP)-mediated activation of the NLRP3/IL-1β/CXCL1 signaling[J]. Frontiers in Pharmacology, 2021, 12: 655372. DOI:10.3389/fphar.2021.655372 |
| [16] |
JIANG N, LI Z, LUO Y, et al. Emodin ameliorates acute pancreatitis-induced lung injury by suppressing NLRP3 inflammasome-mediated neutrophil recruitment[J]. Experimental and Therapeutic Medicine, 2021, 22(2): 857. DOI:10.3892/etm.2021.10289 |
| [17] |
WU X, YAO J, HU Q, et al. Emodin ameliorates acute pancreatitis-associated lung injury through inhibiting the alveolar macrophages pyroptosis[J]. Frontiers in Pharmacology, 2022, 13: 873053. DOI:10.3389/fphar.2022.873053 |
| [18] |
ZHANG Y, LIU J, ZHANG X, et al. Rhein alleviates acute pancreatitis by inhibiting TMAO-mediated inflammatory signaling pathways and reducing acinar cell injury[J]. Journal of Advanced Research, 2026, 86: 1035-1047. DOI:10.1016/j.jare.2025.11.056 |
| [19] |
WANG Z, KLIPFELL E, BENNETT B J, et al. Gut flora metabolism of phosphatidylcholine promotes cardiovascular disease[J]. Nature, 2011, 472(7341): 57-63. DOI:10.1038/nature09922 |
| [20] |
KOETH R A, WANG Z, LEVISON B S, et al. Intestinal microbiota metabolism of L-carnitine, a nutrient in red meat, promotes atherosclerosis[J]. Nature Medicine, 2013, 19(5): 576-585. DOI:10.1038/nm.3145 |
| [21] |
BENNETT B J, DE AGUIAR VALLIM T Q, WANG Z, et al. Trimethylamine-N-oxide, a metabolite associated with atherosclerosis, exhibits complex genetic and dietary regulation[J]. Cell Metabolism, 2013, 17(1): 49-60. DOI:10.1016/j.cmet.2012.12.011 |
| [22] |
AL-KHAYRI J M, SAHANA G R, NAGELLA P, et al. Flavonoids as potential anti-inflammatory molecules: A review[J]. Molecules, 2022, 27(9): 2901. DOI:10.3390/molecules27092901 |
| [23] |
郑勇凤, 王佳婧, 傅超美, 等. 黄芩的化学成分与药理作用研究进展[J]. 中成药, 2016, 38(1): 141-147. |
| [24] |
WANG X, CAI H, CHEN Z, et al. Baicalein alleviates pyroptosis and inflammation in hyperlipidemic pancreatitis by inhibiting NLRP3/Caspase-1 pathway through the miR-192-5p/TXNIP axis[J]. International Immunopharmacology, 2021, 101: 108315. DOI:10.1016/j.intimp.2021.108315 |
| [25] |
WANG X, ZHOU Y X, LIU Y, et al. Baicalein reduces pyroptosis of acinar cells in hyperlipidemic acute pancreatitis by inhibiting M1 polarization of macrophages via the HMGB1/TLR4/NLRP3 pathway[J]. Inflammation, 2025, 48(5): 3130-3145. DOI:10.1007/s10753-025-02254-z |
| [26] |
LI Y, PAN Y, GAO L, et al. Naringenin protects against acute pancreatitis in two experimental models in mice by NLRP3 and Nrf2/HO-1 pathways[J]. Mediators of Inflammation, 2018, 2018(1): 3232491. |
| [27] |
YAN X, LIN T, ZHU Q, et al. Naringenin protects against acute pancreatitis-associated intestinal injury by inhibiting NLRP3 inflammasome activation via AhR signaling[J]. Frontiers in Pharmacology, 2023, 14: 1090261. DOI:10.3389/fphar.2023.1090261 |
| [28] |
JIA Y, SHI Y, WANG J, et al. Astragalin attenuates caerulein-induced acute pancreatitis by targeting the NLRP3 signaling pathway and gut microbiota[J]. Bioresources and Bioprocessing, 2025, 12(1): 139. DOI:10.1186/s40643-025-00977-3 |
| [29] |
RAJAPRIYA S, GEETHA A. Effect of luteolin on the gene level expression of apoptosis-associated speck-like protein containing a caspase recruitment domain of NLRP3 inflammasome and NF-κB in rats subjected to experimental pancreatitis-influence of HSP70[J]. Journal of Basic and Clinical Physiology and Pharmacology, 2022, 33(4): 477-486. DOI:10.1515/jbcpp-2020-0255 |
| [30] |
ALI B M, AL-MOKADDEM A K, SELIM H M R M, et al. Pinocembrin's protective effect against acute pancreatitis in a rat model: The correlation between TLR4/NF-κB/NLRP3 and miR-34a-5p/SIRT1/Nrf2/HO-1 pathways[J]. Biomedicine & Pharmacotherapy, 2024, 176: 116854. |
| [31] |
刘雨欣, 贾茹, 吴安楠, 等. 植物多酚对线粒体的保护作用研究进展[J]. 食品工业科技, 2025, 46(9): 456-465. |
| [32] |
CHEN F, XU K, HAN Y, et al. Mitochondrial dysfunction in pancreatic acinar cells: Mechanisms and therapeutic strategies in acute pancreatitis[J]. Frontiers in Immunology, 2024, 15: 1503087. DOI:10.3389/fimmu.2024.1503087 |
| [33] |
ZHENG S, LIU S, HOU A, et al. Systematic review of Lonicerae Japonicae Flos: A significant food and traditional Chinese medicine[J]. Frontiers in Pharmacology, 2022, 13: 1013992. DOI:10.3389/fphar.2022.1013992 |
| [34] |
YE Z, CHENG L, XUAN Y, et al. Chlorogenic acid alleviates the development of severe acute pancreatitis by inhibiting NLRP3 inflammasome activation via Nrf2/HO-1 signaling[J]. International Immunopharmacology, 2025, 151: 114335. DOI:10.1016/j.intimp.2025.114335 |
| [35] |
ZHANG Y, LIN X, SHEN B, et al. Caffeic acid ameliorates intestinal barrier injury to attenuate acute pancreatitis via inhibiting GSDMD-mediated pyroptotic pathway[J]. Journal of Ethnopharmacology, 2025, 353(Pt A): 120261. |
| [36] |
YANG J, JIAO C, LIU N, et al. Polydatin-mediated inhibition of hsp90α disrupts NLRP3 complexes and alleviates acute pancreatitis[J]. Research, 2024, 7: 0551. DOI:10.34133/research.0551 |
| [37] |
WU S, WANG L, WANG F, et al. Resveratrol improved mitochondrial biogenesis by activating SIRT1/PGC-1α signal pathway in SAP[J]. Scientific Reports, 2024, 14(1): 26216. DOI:10.1038/s41598-024-76825-9 |
| [38] |
BAGHERNIYA M, KHEDMATGOZAR H, FAKHERAN O, et al. Medicinal plants and bioactive natural products as inhibitors of NLRP3 inflammasome[J]. Phytotherapy Research, 2021, 35(9): 4804-4833. DOI:10.1002/ptr.7118 |
| [39] |
LI H, GAO Y, HUANG M, et al. Tetramethylpyrazine alleviates acute pancreatitis inflammation by inhibiting pyroptosis via the NRF2 pathway[J]. Frontiers in Pharmacology, 2025, 16: 1557681. DOI:10.3389/fphar.2025.1557681 |
| [40] |
LI Z, XU C, TAO Y, et al. Anisodamine alleviates lipopolysaccharide-induced pancreatic acinar cell injury through NLRP3 inflammasome and NF-κB signaling pathway[J]. Journal of Receptors and Signal Transduction, 2020, 40(1): 58-66. DOI:10.1080/10799893.2020.1713808 |
| [41] |
YANG J, HUANG J, ZHANG F, et al. Berberine impedes acute pancreatitis development by suppressing VNN1 expression and the NF-κB signaling pathway[J]. Molecular Biotechnology, 2026, 68(7): 3124-3135. DOI:10.1007/s12033-025-01546-x |
| [42] |
江勇, 朱大侠, 刘礼剑, 等. 人参皂苷Rg1对重症急性胰腺炎模型大鼠肺损伤的治疗作用及其机制[J]. 世界科学技术-中医药现代化, 2023, 25(5): 1766-1773. |
| [43] |
CHEN H, LU X, XU B, et al. Saikosaponin d protects pancreatic acinar cells against cerulein-induced pyroptosis through alleviating mitochondrial damage and inhibiting cGAS-STING pathway[J]. Journal of Applied Toxicology, 2024, 44(7): 1005-1013. DOI:10.1002/jat.4594 |
| [44] |
崔云峰, 王西墨, 尚东, 等. 重症急性胰腺炎中西医结合诊疗指南[J]. 临床肝胆病杂志, 2024, 40(6): 1114-1125. |
| [45] |
WANG Z, LIU J, LI F, et al. Mechanisms of Qingyi decoction in severe acute pancreatitis-associated acute lung injury via gut microbiota: Targeting the short-chain fatty acids-mediated AMPK/NF-κB/NLRP3 pathway[J]. Microbiology Spectrum, 2023, 11(4): e03664-22. |
| [46] |
AN Y, TU Z, WANG A, et al. Qingyi decoction and its active ingredients ameliorate acute pancreatitis by regulating acinar cells and macrophages via NF-κB/NLRP3/Caspase-1 pathways[J]. Phytomedicine, 2025, 139: 156424. DOI:10.1016/j.phymed.2025.156424 |
| [47] |
闫铁静, 王宏, 安莹. 清胰汤加减对急性胰腺炎患者肠道菌群及肠黏膜功能的影响[J]. 中国微生态学杂志, 2023, 35(11): 1329-1333. |
| [48] |
LIN J, HAN C, DAI N, et al. Effectiveness of Chengqi-series decoctions in treating severe acute pancreatitis: A Systematic review and Meta-analysis[J]. Phytomedicine, 2023, 113: 154727. DOI:10.1016/j.phymed.2023.154727 |
| [49] |
李劼, 程卓安, 马骄阳, 等. 大承气汤通过抑制HMGB1及NLRP3炎症小体治疗重症急性胰腺炎的研究[J]. 上海中医药杂志, 2022, 56(9): 70-75. |
| [50] |
冯勇, 谭冬梅, 李彬, 等. 柴芩承气汤对急性重症胰腺炎的疗效观察及部分机制[J]. 世界中医药, 2019, 14(11): 2940-2944. |
| [51] |
WEN Y, HAN C, LIU T, et al. Chaiqin Chengqi Decoction alleviates severity of acute pancreatitis via inhibition of TLR4 and NLRP3 inflammasome: Identification of bioactive ingredients via pharmacological sub-network analysis and experimental validation[J]. Phytomedicine, 2020, 79: 153328. DOI:10.1016/j.phymed.2020.153328 |
| [52] |
CAO F, XIANG J, WANG Y, et al. Chaiqin Chengqi Decoction alleviates acute pancreatitis by targeting gasdermin D-mediated pyroptosis[J]. Journal of Ethnopharmacology, 2024, 318: 116920. DOI:10.1016/j.jep.2023.116920 |
| [53] |
LU J Z, YE D, MA B L. Constituents, pharmacokinetics, and pharmacology of Gegen Qinlian Decoction[J]. Frontiers in Pharmacology, 2021, 12: 668418. DOI:10.3389/fphar.2021.668418 |
| [54] |
AKSHINTALA V S, KANTHASAMY K, BHULLAR F A, et al. Incidence, severity, and mortality of post-ERCP pancreatitis: An updated systematic review and meta-analysis of 145 randomized controlled trials[J]. Gastrointestinal Endoscopy, 2023, 98(1): 1-6. |
| [55] |
CUI Y, LI J, CAI M, et al. Gegen Qinlian decoction prevents post-ERCP pancreatitis by regulating NLRP3 inflammasome-mediated pyroptosis[J]. Frontiers in Pharmacology, 2025, 16: 1588585. DOI:10.3389/fphar.2025.1588585 |
| [56] |
林娟, 韩晨霞, 姜坤, 等. 从"不通则痛"探讨急性胰腺炎中西医病机认识[J]. 现代中医临床, 2022, 29(6): 20-25. |
| [57] |
杨成宁, 刘礼剑, 刘锟荣, 等. 清解化攻方辅助治疗瘀毒互结型高脂血症性急性胰腺炎的临床观察[J]. 广西医学, 2021, 43(24): 2928-2932. |
| [58] |
FENG M, QIN B, LUO F, et al. Qingjie Huagong decoction inhibits pancreatic acinar cell pyroptosis by regulating circHipk3/miR-193a-5p/NLRP3 pathway[J]. Phytomedicine, 2024, 126: 155265. DOI:10.1016/j.phymed.2023.155265 |
| [59] |
冯敏超, 秦百君, 罗芳, 等. 清解化攻方调控NLRP3/TLR4/NF-κB信号通路对重症急性胰腺炎小鼠模型胰腺组织的保护作用[J]. 临床肝胆病杂志, 2024, 40(2): 343-350. |
| [60] |
HU S, GUO X, TU L, et al. The efficacy and toxicity equilibrium of emodin for liver injury: A bidirectional Meta-analysis and machine learning[J]. Phytomedicine, 2025, 142: 156650. DOI:10.1016/j.phymed.2025.156650 |
| [61] |
LIU G, WU L, LI Y, et al. Protective and nephrotoxic effects of emodin in animal models of kidney injury: A systematic review and Meta-analysis[J]. Frontiers in Pharmacology, 2026, 17: 1800360. DOI:10.3389/fphar.2026.1800360 |
| [62] |
MASOUMI S, MOETAZEDIAN M, JAFARI S, et al. Mechanistic effects and complications of berberine on cardiac arrhythmias: A systematic review[J]. Current Reviews in Clinical and Experimental Pharmacology, 2026, 21(2): 117-132. |
2. Department of Hepatobiliary and Pancreatic Surgery, Tianjin Nankai Hospital, Tianjin Medical University, Tianjin 300100, China;
3. ITCWM Medical Center, Faculty of Medicine, Tianjin University, Tianjin 300100, China