 2026, Vol. 43
文章信息
- 贾慧雨, 李琳, 闫丰喆, 等.
- JIA Huiyu, LI Lin, YAN Fengzhe, et al.
- 中药有效成分调控AMPK信号通路防治糖尿病肾病的研究进展
- Research progress on the regulation of the AMPK signaling pathway by active components of traditional Chinese medicine in the prevention and treatment of diabetic nephropathy
- 天津中医药, 2026, 43(10): 1339-1350
- Tianjin Journal of Traditional Chinese Medicine, 2026, 43(10): 1339-1350
- http://dx.doi.org/10.11656/j.issn.1672-1519.2026.10.15
-
文章历史
- 收稿日期: 2026-04-26


引用本文 |


2. 组分中药国家重点实验室,天津 301617;
3. 现代中药创制全国重点实验室,天津 301617;
4. 中国人民解放军联勤保障部队第九八八医院,郑州 450000;
5. 河南中医药大学第一附属医院,郑州 450000;
6. 天津中医药大学附属保康医院,天津 300193
糖尿病肾病(DKD)是一种以持续性蛋白尿和肾功能进行性下降为主要表现,并伴随肾脏结构广泛受损的糖尿病微血管并发症。国际糖尿病联合会2025年发布的最新数据显示,全球糖尿病患病人数已达6.43亿,预计到2050年这一数字将攀升至8.53亿[1]。大约30%~40%的糖尿病患者将发展为DKD[2]。DKD已成为肾衰竭、心血管疾病进展、过早死亡及全球卫生保健支出的主要原因。钠-葡萄糖协同转运蛋白2抑制剂、胰高血糖素样肽-1受体激动剂、盐皮质受体拮抗剂等新药的上市为DKD的治疗带来了突破性进展,然而残余风险仍然存在,高钾血症、低血压和尿路感染等诸多不良反应也使其临床应用受到限制。因此,DKD的治疗仍然充满挑战,亟待探索更加安全有效的干预策略。
腺苷酸活化蛋白激酶(AMPK)信号通路作为机体能量代谢的核心枢纽,能够感知细胞能量状态并动态调控下游的炎症反应、氧化应激及自噬等过程,对于维持内环境稳态及器官功能至关重要,其多层级、整体性的调控特点恰与中医整体观念和多靶点干预理念高度契合。临床病理活检显示,DKD患者肾组织中AMPK的活性明显降低[3],这提示激活AMPK信号通路的治疗手段可能为DKD的防治带来契机。中医药在治疗DKD方面展现出独特优势,与西药联用可协同增效,同时减少不良反应的发生。关于中药有效成分的研究能够揭示中医药起效的物质基础,从更深层次对中医药防治DKD的科学内涵进行阐释和验证。大量证据表明,中药有效成分能够激活AMPK信号通路从而改善肾脏微循环,保护肾脏结构与功能,延缓DKD进展。然而,目前尚缺乏对此类研究的梳理与总结。鉴于此,本文聚焦AMPK信号通路,在中国知网、万方知识服务平台、维普数据库、中国生物医学文献数据库(SinoMed)、Pubmed、Cochrane Library、Medline、EMbase等国内外数据库中进行文献检索与梳理,系统阐述中药有效成分通过调控AMPK信号通路防治DKD的研究现状,以期为DKD的基础研究及临床新药开发提供理论参考。
1 AMPK信号通路概述AMPK是一种高度保守的丝氨酸/苏氨酸蛋白激酶复合物,由催化亚基α(α1、α2)和调控亚基β(β 1、β2)、γ(γ1、γ2、γ3)构成[4]。其中,催化亚基α含有激酶结构域,其Thr172位点的磷酸化是AMPK激活的标志。β亚基作为结构骨架能够连接α亚基和γ亚基,并通过与糖原结合感知细胞内糖原水平。γ亚基则直接感知细胞内单磷酸腺苷(AMP)/三磷酸腺苷(ATP)和二磷酸腺苷(ADP)/ATP的比值变化,进而调控AMPK的活性。当细胞处于缺血、缺氧及葡萄糖剥夺等应激状态时,ATP的大量消耗导致其水解产物AMP和ADP迅速升高并与γ亚基结合,通过经典变构途径激活AMPK信号通路[5]。
此外,AMPK的上游激酶肝激酶B1、钙/钙调蛋白依赖性激酶β和转化生长因子β激活激酶1能够磷酸化α亚基的Thr172位点间接激活AMPK[6]。AMPK一旦激活,可直接磷酸化下游靶蛋白以实现重塑细胞代谢:一方面,通过快速的酶磷酸化反应促进能量生成并抑制生物合成以减少能量消耗[7]。另一方面,AMPK能够磷酸化激活过氧化物酶体增殖物激活受体γ共激活因子-1α(PGC-1α)和核因子E2相关因子2(Nrf2)以增强线粒体生物发生和抗氧化能力,并抑制哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)和直接磷酸化UNC-51样激酶1(ULK1),启动并促进细胞自噬[8-9]。然而,在DKD状态下,长期的高糖毒性可诱导AMPK发生糖基化修饰并干扰上游激酶功能,导致AMPK的活性被抑制[10]。由此引发合成代谢亢进且分解代谢受阻,随之炎症反应与氧化应激失控,最终导致肾细胞结构和功能的进行性损伤。
2 AMPK信号通路参与DKD发病的主要机制AMPK信号通路作为细胞能量与代谢稳态调控枢纽,其功能失调是连接DKD始动因素(高糖与代谢紊乱)和终末损伤(炎症反应、细胞凋亡及纤维化进展等)的关键环节。有研究表明,AMPK活性下降与DKD的肾脏损害密切相关[11]。在高糖、晚期糖基化终产物及脂毒性等不良代谢微环境的持续暴露下,AMPK对肾脏细胞能量代谢、氧化还原稳态、自噬清除及应激防御等方面的精密调控网络被破坏,推动DKD从早期代偿状态向晚期失代偿阶段的不可逆进展。现对AMPK信号通路参与DKD的主要机制进行阐述。
2.1 改善肾脏能量代谢肾脏细胞能量代谢紊乱是驱动DKD发生发展的关键环节,主要表现为糖脂利用障碍、线粒体功能受损及ATP生成不足。AMPK信号通路的激活可促进葡萄糖摄取和氧化磷酸化,从而纠正DKD中糖代谢向无氧酵解的异常偏移[12]。同时,AMPK能够磷酸化抑制乙酰辅酶A羧化酶(ACC)并上调肉碱棕榈酰转移酶1表达,抑制脂质新生并促进脂肪酸β-氧化,改善DKD的脂毒性代谢状态[13]。此外,AMPK可通过激活PGC-1α增强线粒体生物发生进而促进ATP合成,并经ULK1/哺乳动物雷帕霉素靶蛋白(mTOR)通路启动线粒体自噬,清除功能受损的线粒体,从而系统性修复肾脏细胞的能量代谢基础[14-15]。AMPK信号通路通过这些机制共同作用,从根本上重塑DKD状态下紊乱的肾脏能量代谢,为缓解后续氧化应激、炎症及纤维化奠定了关键的代谢基础。
2.2 调控肾脏自噬过程自噬是细胞依赖溶酶体途径降解异常蛋白质和受损细胞器以维持细胞内环境稳态的关键质量控制机制[16]。肾脏作为高能耗器官,尤其依赖自噬以维持肾脏固有细胞的结构和功能稳定,然而DKD背景下长期高糖和代谢应激导致肾脏细胞自噬功能普遍受损。临床观察可见DKD患者血清中自噬效应蛋白Beclin-1的表达显著降低,自噬接头蛋白螯合体1(p62)异常积聚,并且与DKD所处阶段及蛋白尿程度密切相关[17-18]。AMPK作为自噬的关键上游调控因子,能够通过多种途径调节DKD中肾脏细胞的自噬活性。有研究表明,阿格列汀通过调节AMPK/mTOR轴信号通路增强自噬水平,可以减少DKD大鼠肾细胞凋亡,缓解DKD[19]。此外,克洛索(Klotho)蛋白是一种具有肾保护作用的抗衰老蛋白。在高糖培养的肾小管上皮细胞中,过表达Klotho可以显著提高AMPK和细胞外信号调节激酶1/2(ERK1/2)的磷酸化水平从而增强自噬水平,减轻肾小管损伤[20]。已有证据表明,二甲双胍及多种中药活性成分均可通过AMPK依赖性机制增强肾细胞的自噬活性,从而显著减少蛋白尿、抑制肾小球硬化和肾间质纤维化,改善肾脏结局,验证了AMPK-自噬轴在DKD干预中的重要价值[21]。
2.3 抑制肾脏氧化应激氧化应激是活性氧(ROS)生成与清除失衡导致细胞毒性损伤的关键机制。临床研究显示,DKD患者肾脏及循环中氧化应激水平显著升高[22]。AMPK可直接磷酸化并激活转录因子Nrf2,促进其核转位及与抗氧化反应元件结合,进而上调血红素氧合酶-1(HO-1)、醌氧化还原酶1(NQO1)、超氧化物歧化酶(SOD)等抗氧化酶的表达,系统增强ROS的清除能力[23]。有研究表明,在高糖刺激的肾小管上皮细胞中,激活AMPK可增强Nrf2介导的抗氧化应答,并抑制烟酰胺腺嘌呤二核苷酸磷酸氧化酶(NOX)活性,有效减轻氧化应激损伤[24]。此外,AMPK能够通过激活高糖诱导的人肾小管上皮细胞(HK-2)中PGC-1α及其下游抗氧化基因表达,增强线粒体生物合成和功能,并抑制线粒体来源的ROS过量产生,从而减轻氧化应激诱发的细胞损伤[25]。可见,AMPK信号通路通过多靶点调控ROS的生成与清除过程,对于维持肾脏细胞氧化还原稳态、阻断氧化应激介导的肾脏结构与功能损伤具有重要意义。
2.4 抑制肾脏炎症反应炎症反应是机体对代谢紊乱与组织损伤的关键应答形式。DKD状态下,长期高糖环境可持续激活肾脏固有免疫与炎症信号网络,形成低度、慢性而持久的炎症微环境,并与代谢紊乱相互交织加剧肾脏损伤[26]。有研究表明,DKD患者肾组织中存在明显的炎性细胞浸润且关键炎症介质如白细胞介素(IL)-1β、IL-6显著增加[27]。AMPK位于多条炎症信号通路的上游,因而可通过多条信号轴抑制DKD的炎症级联反应。有报道显示,AMPK活性降低可导致核因子-κB(NF-κB)等炎症转录因子持续激活,促进炎性介质合成,并与DKD状态下肾小球系膜细胞基质沉积有关[28-29]。此外,在DKD小鼠和高糖培养的肾小管上皮细胞中,AMPK的激活能够通过改善线粒体功能、减轻氧化应激而间接抑制NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎症小体的活化,减少IL-1β等促炎因子释放,从而有效减轻DKD诱导的肾小管间质炎[30]。可见,AMPK信号通路能从干预转录因子活性、调控炎症小体功能及改善细胞代谢微环境等多维度抑制DKD相关炎症反应,为延缓DKD的进展提供重要靶点。
2.5 抑制肾脏细胞程序性死亡细胞程序性死亡是细胞受特定基因调控,遵循精密程序,主动结束自身生命的过程。在DKD发展过程中,高糖、氧化应激及炎症反应等病理因素可异常激活多种肾脏细胞程序性死亡途径,包括细胞凋亡、铁死亡、细胞焦亡等,共同导致肾脏固有细胞丢失及肾单位结构破坏[31-33]。AMPK信号通路在调控DKD相关的肾细胞程序性死亡中发挥关键保护作用。有报道称,重组成纤维细胞生长因子4(FGF4)的治疗能够通过激活DKD小鼠足细胞中的成纤维细胞生长因子受体1(FGFR1)/AMPK/叉头框蛋白O1(FOXO1)信号级联反应介导,从而抑制细胞凋亡,促进足细胞存活[34]。此外,DKD患者肾脏活检显示溶质携带家族7成员11(SLC7A11)和谷胱甘肽过氧化物酶4(GPX4)表达降低,提示铁死亡的发生,而恩格列净的干预能够促进AMPK介导的Nrf2激活,减轻DKD过程中的肾小管上皮细胞铁死亡[35]。细胞焦亡的本质是NLRP3炎症小体激活介导消皮素D(GSDMD)的释放,进而迅速导致细胞膜破裂和细胞内容物的释放,从而引发强烈的炎症反应。AMPK/mTORC1/NLRP3信号轴是细胞焦亡的重要调控途径。研究发现[36],天然植物成分能够抑制该信号轴介导的DKD中的足细胞焦亡并缓解肾纤维化。可见,AMPK信号通路能够调控细胞凋亡、铁死亡、细胞焦亡等多种肾脏细胞的程序性死亡过程,在延缓DKD进展中具有关键作用。
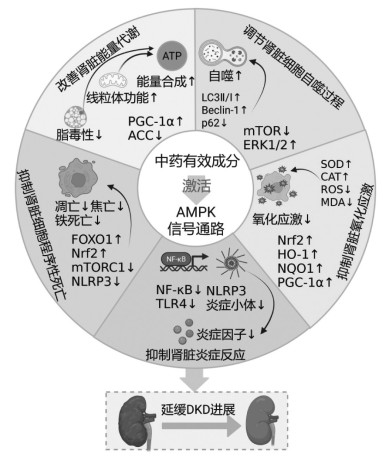
3 中药有效成分调控AMPK通路防治DKD的研究现状近年来,中医药在治疗DKD方面取得丰硕成果。大量研究表明,中药有效成分能够调控AMPK通路改善DKD,其作用机制见图 1。现对中药有效成分通过调控AMPK信号通路防治DKD的研究现状进行阐述。
|
| 注:图片使用Biorender在线绘制。PGC-1α,氧化物酶体增殖物激活受体γ共激活因子-1α;ACC,乙酰辅酶A羧化酶;ATP,三磷酸腺苷;LC3,微管相关蛋白1轻链3;Beclin-1,自噬相关蛋白贝克林1;p62,泛素结合蛋白p62;mTOR,哺乳动物雷帕霉素靶蛋白;ERK1/2,细胞外信号调节激酶1/2;SOD,超氧化物歧化酶;CAT,过氧化氢酶;ROS,活性氧;MDA,丙二醛;Nrf2,核因子E2相关因子2;HO-1,血红素加氧酶-;NQO1,醌氧化还原酶1;NF-κB,核因子-κB;NLRP3,NOD样受体热蛋白结构域相关蛋白3;TLR4,Toll样受体4;FOXO1,叉头框蛋白O1;mTORC1,哺乳动物雷帕霉素靶蛋白复合物1。↑表示促进,↓表示抑制。 图 1 中药有效成分调控AMPK信号通路防治DKD的作用机制 Fig. 1 Mechanisms of the active components of TCM in the treatment of DKD by regulating AMPK signaling pathway |
小檗碱是传统中药材黄连的主要有效成分之一,具有抗炎抗菌、调节血糖血脂及肾脏保护等作用。研究显示,在高脂高糖联合链脲佐菌素诱导的DKD大鼠中,小檗碱能够促进肾组织AMPK的基因转录及磷酸化蛋白表达,提高SOD活性并降低丙二醛(MDA)水平,改善血糖和肾功能,降低24 h尿蛋白并减轻肾组织病理损伤及细胞凋亡[37]。此外,在高糖诱导的肾小球系膜细胞中,小檗碱可激活沉默信息调节因子1(SIRT1)/AMPK信号通路,上调自噬标志蛋白微管相关蛋白1轻链3(LC3)-B、Beclin-1的表达,下调p62和磷酸化NF-κB的p65亚基(p-p65)的蛋白水平,改善系膜细胞异常增殖,减少细胞外基质沉积[38]。这表明小檗碱对DKD的肾保护作用与激活AMPK信号通路提高自噬水平,抑制氧化应激有关。
葫芦巴碱主要来源于豆科植物葫芦巴的种子,具有降血糖、降脂、镇静等作用。研究显示[39],葫芦巴碱能够激活高糖诱导的人肾小球系膜细胞中的miR-5189-5p/AMPK信号通路,增加自噬相关蛋白LC3-B、Beclin-1并减少自噬底物p62表达,从而促进细胞自噬,抑制系膜细胞过度增殖,发挥潜在的肾保护作用。
3.2 皂苷类知母皂苷元是中药知母中的主要成分,具有抗炎、抗氧化、抗肿瘤等广泛的生物活性。据报道,知母皂苷元能够降低DKD大鼠的24 h尿蛋白,改善肾功能并抑制肾小球肥大、系膜基质扩张及胶原纤维沉积,同时可上调磷酸化AMPK(p-AMPK)/AMPK、磷酸化ULK1(p-ULK1)/ULK1、Beclin-1、LC3-Ⅱ/LC3-Ⅰ并下调磷酸化mTOR(pmTOR)/mTOR比值[40],这提示知母皂苷元可能通过调控AMPK/mTOR/ULK1信号通路激活自噬从而改善DKD。
黄芪甲苷Ⅳ主要提取自中药黄芪,具有抗炎、抗氧化、抗纤维化及免疫调节等多种药理作用。研究显示[41],黄芪甲苷Ⅳ可提高DKD大鼠肾组织中的p-AMPK和SIRT1水平,抑制NF-κB的表达,减轻肾组织炎性细胞浸润和纤维化程度。此外,黄芪甲苷Ⅳ还可上调p-AMPK/AMPK和p-ULK1/ULK1比值,促进自噬相关蛋白LC3-Ⅱ/LC3-Ⅰ及Beclin1的表达,同时降低细胞焦亡蛋白N端(N)-消皮素D(GSDMD)/GSDMD、剪切的胱天蛋白酶(Caspase)-1/Caspase-1比值及NLRP3和IL-1β的表达[42]。另有实验证实[43],该成分可激活DKD大鼠肾脏的AMPK/内皮型一氧化氮合酶(eNOS)信号通路,降低血糖和蛋白尿水平,并减轻肾小球病理损伤及肾脏胶原纤维沉积。上述结果提示黄芪甲苷Ⅳ可能通过激活AMPK信号通路,从增强自噬、抑制炎症和细胞焦亡、改善内皮功能等多种途径发挥肾脏保护作用。
3.3 黄酮类葛根素主要提取自中药葛根的干燥根,具有抗炎、抗氧化、调节糖脂代谢等药理作用。研究表明,葛根素能够以剂量依赖性降低DKD小鼠的空腹血糖和尿蛋白,改善肾功能,抑制肾小球系膜扩张及足细胞损伤,提高SOD和过氧化氢酶(CAT)水平并降低ROS含量,并且p-AMPK/AMPK和Nrf2的表达均被上调[44]。这些结果提示葛根素可能通过激活AMPK/Nrf2信号通路抑制氧化应激造成的肾小球和足细胞损伤。
紫云英苷是黄芪、紫云英等多种中药的活性成分,具有优异的抗氧化特性。研究发现,紫云英苷在DKD小鼠和高糖高脂诱导的HK-2细胞中均能够激活AMPK/PGC1α信号通路,抑制醛糖还原酶(ALR2)的活化,促进线粒体的生物合成,并维持线粒体融合-分裂平衡,从而改善能量代谢,减轻氧化应激损伤,阻断线粒体依赖性细胞凋亡途径,减轻DKD相关肾损伤,在细胞模型中敲低AMPK后紫云英苷的上述作用被消除,进一步证明这些作用依赖于AMPK信号通路的激活[45]。
山柰酚是广泛存在于多种中药材中的天然黄酮类化合物。研究表明,山柰酚能够降低DKD大鼠的空腹血糖和尿蛋白水平,并改善肾功能,同时升高肾组织p-AMPK/AMPK和磷酸化Nrf2(p-Nrf2)/Nrf2比值,上调铁死亡抑制蛋白GPX4和SLC7A11的表达,下调p-p65、肿瘤坏死因子-α(TNF-α)、IL-1β、IL-6水平,提高SOD活性并降低ROS和MDA含量[46],这提示山柰酚可能通过激活AMPK/Nrf2信号通路,抑制铁死亡和炎症反应,减轻氧化应激,从而保护肾脏。
芒柄花苷可从黄芪、甘草、红芪等多种中药中提取而来。有研究证实[47],芒柄花苷可上调AMPK、SIRT1和LC3-B并下调FOXO1和纤维连接蛋白(FN)的蛋白表达,提高肾组织SOD、谷胱甘肽过氧化物酶(GSH-PX)水平,降低MDA水平,改善DKD大鼠的血糖和肾功能,减轻肾小球肥大、系膜增生和间质纤维化等病理损伤,这提示芒柄花苷可能通过调控AMPK/SIRT1/FOXO1通路发挥对DKD的保护作用。
二氢杨梅素是主要提取自藤茶茎叶的有效成分,具有抗炎、抗氧化、降血糖和调节血脂等药理作用。在DKD大鼠模型中,二氢杨梅素能激活AMPK信号通路,进而抑制下游mTOR的活性,促进LC3-Ⅰ/LC3-Ⅱ、Beclin-1的表达,并抑制转化生长因子-β1(TGF-β1)、α-平滑肌肌动蛋白(α-SMA)表达,减少Ⅰ型胶原(COLⅠ)、Ⅳ型胶原(COLⅣ)、FN含量,从而增强自噬水平,减轻肾小球细胞外基质沉积及纤维化程度[48]。
灯盏花素是从灯盏花中提取的黄酮类化合物,具有抗炎、调节血脂、降血糖及抗氧化等特性。有研究表明[49],灯盏花素能够上调DKD大鼠肾皮质中p-AMPK及其下游脂质代谢调控蛋白ACC的磷酸化表达,下调固醇调节元件结合蛋白(SREBP)-1、SREBP-2和脂肪分化相关蛋白(ADRP)的蛋白表达水平,从而抑制肾脏的异常脂质蓄积,减轻肾小球肥大、基底膜增厚、足细胞损伤及肾小管空泡化等病理改变。
川陈皮素是从中药陈皮中提取的黄酮类化合物,具有抗血小板聚集、抗肿瘤、抗氧化及改善糖代谢等广泛的活性。有研究证实[50],川陈皮素可降低DKD大鼠的尿蛋白并改善肾功能,上调AMPK和eNOS的蛋白及mRNA转录水平,升高SOD、还原型谷胱甘肽(GSH)并降低MDA水平。体外细胞实验进一步表明川陈皮素能够调控AMPK/NLRP3信号通路,提高脂多糖诱导的人肾小球系膜细胞(HBZY-1)的抗氧化能力,并降低细胞上清液中的炎症因子水平,提高细胞活性。以上结果提示川陈皮素可能通过调控AMPK/eNOS及AMPK/NLRP3通路,抑制氧化应激和炎症反应,改善肾小球系膜细胞损伤等DKD相关损害[51]。
牡荆素是一种广泛存在于山楂、西番莲等植物中的黄酮类化合物,具有优异的抗氧化、抗炎效应。在肥胖诱导的DKD小鼠模型中[52],牡荆素能够激活肾脏中AMPK的磷酸化,抑制ACC的活性,同时抑制NF-κB通路,从而改善肾脏细胞能量代谢和脂质代谢紊乱,并减少下游炎症因子释放,减轻肾脏炎症反应和氧化应激损伤,改善肾功能。
3.4 多糖类岩藻多糖是一类主要存在于褐藻和棘皮动物中的多糖类化合物,具有抗炎、抗肿瘤及免疫抑制等生物活性。近期研究表明,其在DKD中亦展现出肾脏保护作用。有报道显示,岩藻多糖能够降低DKD大鼠的尿蛋白,改善肾功能,抑制足细胞焦亡导致的炎症性足细胞损伤,并减轻肾脏纤维化等组织病理改变,在此过程中,肾组织中p-AMPK和磷酸化mTOR调控相关蛋白(p-raptor)的表达上调,磷酸化mTORC1、NLRP3、凋亡相关斑点样蛋白(ASC)和Caspase-1的蛋白表达被抑制,上述作用在体外实验中得到进一步证实[36]。这些发现提示岩藻多糖可能通过调控AMPK/mTORC1/NLRP3信号通路减轻DKD过程中的足细胞损伤和肾纤维化。
黄芪多糖是中药黄芪的主要有效活性成分,具有改善血糖、增强免疫力及抗氧化等作用。有实验证实,黄芪多糖能够激活高糖诱导的肾小管上皮细胞中的AMPK/SIRT1/PGC-1α信号通路,提高细胞活性和ATP含量,降低LDH漏出率及Caspase-9活性,从而提高能量代谢、减少肾小管上皮细胞凋亡[53]。在体内研究中,黄芪多糖可升高肾组织p-AMPKα/AMPKα比值及LC3-B蛋白表达,抑制FOXO1的激活和p62蛋白表达,升高血清SOD、CAT及GSH-PX并降低MDA水平,改善DKD大鼠的糖脂代谢、胰岛素抵抗及肾功能,减轻肾脏纤维化,表明黄芪多糖可能通过调节AMPK/SIRT1/FOXO1通路,激活自噬并抑制氧化应激,从而改善DKD[54]。上述结果体现了黄芪多糖激活AMPK后具有从多种途径减轻DKD肾损伤的优势。
线粒体自噬的适当激活是清除受损线粒体,维持线粒体正常功能的关键步骤,然而过度的线粒体自噬将加重肾脏细胞能量代谢紊乱和细胞凋亡。当归多糖作为中药当归的主要活性成分,具有改善贫血、免疫调节及调节糖脂的作用。有研究表明[55],在DKD小鼠的肾脏中,当归多糖可通过抑制AMPK和mTOR的基因转录和蛋白表达,降低线粒体自噬蛋白LC3-Ⅱ/LC3-Ⅰ、Nip3样蛋白X(Nix)及线粒体动力相关蛋白1(Drp1)的表达,升高p62蛋白水平,呈剂量依赖性改善尿蛋白和肾功能并减轻肾脏组织损伤。这提示当归多糖对DKD的肾保护机制可能与抑制AMPK/mTOR信号通路介导的线粒体过度自噬有关,也反映出中药有效成分对自噬过程的双向调节优势。
3.5 多酚类姜黄素是中药姜黄根茎中的主要活性成分,具有免疫调节、抗氧化、抗纤维化等生物活性。有研究表明[56],姜黄素能够提高DKD大鼠肾脏AMPK和ACC的磷酸化水平,抑制固醇调节元件结合蛋白(SREBP)1、SREBP2及ADRP的蛋白表达,从而减少脂质积累,降低血脂和游离脂肪酸水平,减少尿蛋白,减轻肾小球肥大、基底膜增厚及足突融合等病理改变。另有研究显示[57],姜黄素可通过激活AMPK信号通路上调LC3-Ⅱ/LC3-Ⅰ比值,从而增强自噬水平,改善血糖和肾功能,抑制促纤维化蛋白TGF-β1的蛋白表达及肾小球基底膜增厚和肾小球系膜基质扩张。可见,姜黄素可能通过激活AMPK信号通路从多种途径发挥对DKD的有益作用。
虎杖苷是中药虎杖的主要有效成分,具有抗炎、抗氧化及扩张血管等作用。研究证实[58],虎杖苷可上调DKD小鼠肾组织中AMPKα1亚基(AMPKα1)的基因转录和蛋白表达水平,同时抑制下游Toll样受体4(TLR4)的基因转录,并降低炎症因子IL-18和单核细胞趋化蛋白-1表达水平,这提示虎杖苷可能通过调控AMPK/TLR4信号通路减轻DKD的肾脏免疫炎症损伤。
丹参多酚酸B是从中药丹参中提取的水溶性多酚类活性成分,在DKD小鼠和高糖刺激的人足细胞中,其能够激活AMPK进而负向调控NOX4的表达,减少线粒体ROS产生和氧化应激损伤,抑制足细胞凋亡并改善肾脏病理损伤和蛋白尿。在体外敲低AMPK后丹参多酚酸B对NOX4的抑制作用及其抗凋亡、抗氧化效应消失,证实了其保护作用由激活AMPK信号通路实现[59]。
3.6 萜类雷公藤多苷是中药雷公藤的主要活性成分,具有显著的免疫调节和抗炎作用。实验表明[60],雷公藤多苷可上调DKD大鼠肾组织中p-AMPK、Nrf2并抑制NF-κB的蛋白表达,增加SOD、GSH-PX含量,降低MDA、TNF-α、IL-1、IL-6及干扰素-γ水平,改善肾小球体积增大及系膜区扩张等病理损伤,这提示其肾脏保护作用可能与激活AMPK信号通路从而减轻炎症反应及氧化应激有关。
梓醇是地黄根中的主要成分,具有广泛的降血糖、抗肿瘤、抗氧化、抗炎等生物活性。在DKD小鼠和高糖刺激的小鼠足细胞中,梓醇均能够激活AMPK并上调SIRT1的表达,抑制下游NF-κB及NLRP3炎症小体相关蛋白和Caspase-1的活化,减少下游裂解的IL-1β和焦亡执行蛋白Gasdermin D蛋白的N-末端结构域(GSDMD-N)的表达,从而抑制高糖导致的肾细胞氧化应激、炎症反应及足细胞焦亡,最终减轻DKD的肾脏损伤,这一机制通过在高糖诱导的足细胞模型中敲低AMPK得到验证[61]。
3.7 蒽醌类番泻叶苷A是主要来源于大黄、番泻叶等中草药的蒽醌类化合物。有研究表明[62],番泻叶苷A可以呈剂量依赖性改善DKD小鼠的肾功能,降低尿蛋白,减轻肾小球肥大及肾小管上皮细胞的炎性浸润,并且能够上调肾组织中的p-AMPK和NOX4的蛋白表达,提高SOD并降低MDA、TGF-β1和TNF-α的水平,抑制炎症反应和氧化应激损伤。这提示,番泻叶苷A的肾保护作用可能与激活AMPK/NOX4信号通路有关。
大黄素主要提取自中药大黄,具有强效的抗炎、抗纤维化及肾脏保护作用。研究发现[63],大黄素可上调DKD小鼠肾脏AMPKα1并下调TLR4、p65的mRNA转录及蛋白表达,抑制促炎因子IL-6和IL-18的表达。这提示大黄素可能通过调控AMPKα1/TLR4/p65信号通路,减轻DKD的肾脏免疫炎性损伤。
3.8 异硫氰酸酯类萝卜硫素广泛分布于十字花科植物中,具有高效的抗氧化、抗炎、代谢调节及心血管保护活性。在高糖诱导的人肾小管上皮细胞中,萝卜硫素能够上调p-AMPK的蛋白表达及细胞周期蛋白D1、B细胞淋巴瘤-2(Bcl-2)的基因转录,下调磷酸化磷脂酰肌醇3-激酶(p-PI3K)、磷酸化蛋白激酶B(p-Akt)、p-mTOR蛋白及Caspase-3、B细胞淋巴瘤-2相关X蛋白(Bax)的mRNA表达,从而抑制肾小管上皮细胞凋亡。应用AMPK抑制剂后萝卜硫素对mTOR的抑制作用消失,然而对pPI3K、p-Akt的表达无影响。这提示萝卜硫素可能同时调控AMPK/mTOR和PI3K/Akt两条信号通路发挥对高糖诱导的肾小管上皮细胞的保护作用[64]。
3.9 氰苷类苦杏仁苷是主要提取自中药苦杏仁的氰苷类化合物,能够发挥抗肿瘤、抗纤维化、抗炎及镇痛等药理作用。有实验证实[65],苦杏仁苷可改善DKD大鼠的糖代谢与肾功能,降低尿蛋白和血清炎症因子TNF-α、IL-1β,抑制肾细胞凋亡和肾小管损伤,并且能够上调p-AMPK/AMPK比值、Beclin1并下调p-mTOR/mTOR比值、Bax、p62的蛋白表达,应用AMPK抑制剂后,苦杏仁苷对这些蛋白的调节作用被明显逆转,这提示苦杏仁苷可通过激活AMPK信号通路发挥上述对DKD小鼠的保护作用。
3.10 香豆素类蛇床子素是从蛇床子果实中提取的羟基香豆素类化合物,具有抗过敏、抗高血压、抗肿瘤、抗炎等活性。有研究证实[66],蛇床子素可降低DKD小鼠的尿蛋白,改善肾功能和肾小球充血及肾小管间质纤维化,同时上调p-AMPKα、SIRT1、PGC-1α及上皮细胞标志蛋白E-钙黏蛋白(Ecadherin)的基因转录和蛋白表达,并抑制间充质标志物α-SMA、COLⅣ及上皮-间质转化调控子锌指蛋白Snail1的表达,这提示蛇床子素可能通过激活AMPK/SIRT1/PGC-1α信号通路从而抑制DKD的肾脏上皮-间质转化及纤维化进程。
3.11 酚苷类红景天苷是来源于传统中药红景天中的化合物,具有抗炎、抗肿瘤等生物特性。研究表明[67],红景天苷能够激活DKD大鼠肾脏和高糖诱导的大鼠系膜细胞中AMPK的磷酸化,促进SIRT1的核转位及其下游转录因子肿瘤蛋白P53和FOXO1的去乙酰化,进而上调抗凋亡蛋白Bcl-2和锰超氧化物歧化酶的表达,下调Bax和活化型Caspase-3的表达,减轻氧化应激和系膜细胞凋亡,改善DKD病理变化和肾功能。
天麻素是从天麻根茎中提取的酚苷类化合物,具有抗癫痫、镇痛、抗炎、抗氧化等广泛活性。在DKD小鼠中,天麻素能够显著激活肾脏AMPK的磷酸化并促进其下游Nrf2的核转位及活化,进而上调其靶基因HO-1和NQO1的蛋白表达,降低肾组织脂质过氧化产物MDA水平,提高抗氧化能力,抑制炎症反应,改善肾功能及肾小球肥大、系膜基质扩张等病理变化。AMPK抑制剂与天麻素共同干预时,上述所有保护作用均被逆转,证实其疗效依赖于AMPK/Nrf2通路的激活[68]。
综上所述,上述研究表明生物碱、皂苷、黄酮、多糖、多酚、萜类、蒽醌、异硫氰酸酯、氰苷、香豆素、酚苷等类别的有效成分可通过激活AMPK信号通路在DKD的防治中发挥多维度保护效应。例如,在能量代谢层面,中药有效成分可通过激活AMPK抑制ACC的活性,改善肾脏异常脂质堆积,并能够促进PGC-1α介导的线粒体生物合成而修复能量失衡;在自噬调控方面,中药有效成分能够激活AMPK进而直接磷酸化ULK1,增强自噬水平,清除受损的线粒体及有害蛋白聚集体;在氧化应激与炎症层面,中药有效成分激活AMPK后一方面可激活Nrf2通路增强抗氧化酶表达,另一方面能够抑制NF-κB核转位减轻炎症级联反应,形成“抗氧化-抗炎”协同网络;在细胞命运与结构重塑层面,中药有效成分可激活AMPK进而负调控mTOR通路,减轻肾小球系膜基质积累、足突脱落及肾小管间质纤维化等肾脏病理损害。这些研究为开发治疗DKD的相关传统中药提供了确切的分子生物学基础,有助于推动中医药研究的现代化与标准化。然而,目前多数研究大多停留在“AMPK激活-表型改善”的现象描述层面,缺乏对激活机制的深入解析。此外,当前的机制验证多依赖于体外抑制剂或小干扰RNA的应用,但在体内水平基于基因敲除的精确证据较少。未来应注重应用系统生物学方法,系统解析中药有效成分调控AMPK信号网络的协同机制并加强高级别证据验证,以便高效挖掘基于AMPK靶点的DKD创新中药有效成分。中药有效成分调控AMPK通路防治DKD的研究现状总结见表 1。
| 类别 | 有效成分 | 研究对象 | 给药剂量 | 通路/靶点 | 作用机制 |
| 生物碱 | 小檗碱[37] | SD大鼠; 肾小球系膜细胞 | 50、100、200 mg/kg; 30、60、90 μmol/L | SIRT1/AMPK↑、LC3-B↑、Beclin-1↑、p-p65↓、p62↓ | 氧化应激↓、细胞凋亡↓、自噬↑ |
| 葫芦巴碱[39] | 人肾小球系膜细胞 | 50、100、200 μmol/L | miR-5189-5p/AMPK↑ | 自噬↑、细胞增殖↓ | |
| 皂苷类 | 知母皂苷元[40] | SD大鼠 | 20、60 mg/kg | p-AMPK/AMPK↑、p-mTOR/mTOR↓、p-ULK1/ULK1↑ | 自噬↑ |
| 黄芪甲苷Ⅳ[41-43] | SD大鼠 | 40、80 mg/kg; 60 mg/kg; 40 mg/kg | p-AMPK/AMPK↑、SIRT1↑、NF-κB↓、p-ULK1/ULK1↑、NLRP3↓、AMPK/eNOS↑ | 炎性反应↓、细胞焦亡↓、自噬↑、内皮功能↑ | |
| 黄酮类 | 葛根素[44] | C57BL/6J小鼠 | 40、80 mg/kg | p-AMPK/AMPK↑、Nrf2↑ | 氧化应激↓ |
| 紫云英苷[45] | C57BL/6J小鼠; HK-2细胞 | 5、10 mg/kg; 20 μmol/L | AMPK/PGC1α↑、ALR2↓ | 线粒体功能↑、氧化应激↓、细胞凋亡↓ | |
| 山柰酚[46] | SD大鼠 | 50、100 mg/kg | AMPK/Nrf2↑ | 氧化应激↓、炎症反应↓、细胞凋亡↓ | |
| 芒柄花苷[47] | SD大鼠 | 50、200 mg/kg | AMPK/SIRT1↑、FOXO1↓ | 氧化应激↓、自噬↑ | |
| 二氢杨梅素[48] | SD大鼠 | 50、100 mg/kg | AMPK↑、mTOR↓ | 自噬↑ | |
| 灯盏花素[49] | Wistar大鼠 | 80 mg/kg | p-AMPK↑、p-ACC↑、SREBP-1↓、SREBP-2↓、ADRP↓ | 脂质积累↓ | |
| 川陈皮素[50-51] | SD大鼠; HBZY-1细胞 | 100、200、400 mg/kg; 40 μmol/L | AMPK/eNOS↑、NLRP3↓ | 氧化应激↓、炎症反应↓、细胞凋亡↓ | |
| 牡荆素[52] | C57BL/6小鼠 | 15、30、60 mg/kg | AMPK↑、ACC↓、NF-κB↓ | 能量代谢↑、脂代谢紊乱↓炎症反应↓ | |
| 多糖类 | 岩藻多糖[36] | SD大鼠; 小鼠肾足细胞 | 120 mg/kg; 20 μg/ml | p-AMPK↑、p-raptor↑、p-mTORC1↓、NLRP3↓、ASC↓、Caspase-1↓ | 细胞焦亡↓、细胞凋亡、炎症反应↓ |
| 黄芪多糖[53-54] | HK-2细胞; SD大鼠 | 200 mg/L; 200 mg/kg | AMPK/SIRT1/PGC-1α↑、FOXO1↓ | 细胞凋亡↓、能量代谢↑、氧化应激↓、自噬↑ | |
| 当归多糖[55] | KK-Ay小鼠 | 100、200、400 mg/kg | AMPK/mTOR↓ | 线粒体自噬↓ | |
| 多酚类 | 姜黄素[56-57] | 大鼠 | 100 mg/kg; 100、200 mg/kg | p-AMPK↑、p-ACC↑、SREBP1↓、SREBP2↓、ADRP↓ | 脂质积累↓、自噬↑ |
| 虎杖苷[58] | KK-Ay小鼠 | 3.33、6.67、13.33 mg/kg | AMPKα1↑、TLR4↓ | 炎症反应↓ | |
| 丹参多酚酸B[59] | db/db小鼠; 人足细胞 | 80 mg/kg; 200 μmol/L | AMPK↑、NOX4↓ | 线粒体氧化应激↓、细胞凋亡↓ | |
| 萜类 | 雷公藤多苷[60] | SD大鼠 | 50 mg/kg | AMPK/Nrf2↑、NF-κB↓ | 氧化应激↓、炎症反应↓ |
| 梓醇[61] | C57/B6小鼠; 小鼠足细胞 | 100、200 mg/kg; 1、5、10 μmol/L | AMPK/SIRT1↑、NF-κB↓ | 氧化应激↓、炎症反应↓、细胞焦亡↓ | |
| 蒽醌类 | 番泻叶苷A[62] | C57BL/6小鼠 | 15、30、60 mg/kg | AMPK/NOX4↑ | 炎症反应↓、氧化应激↓ |
| 大黄素[63] | KK-Ay小鼠 | 3.33、6.67、13.33 mg/kg | AMPKα1↑、TLR4↓、p65↓ | 炎症反应↓ | |
| 异硫氰酸酯类 | 萝卜硫素[64] | HK-2细胞 | 10、20、40 μmol/L | p-AMPK↑、PI3K/Akt/mTOR↓、 | 细胞凋亡↓ |
| 氰苷类 | 苦杏仁苷[65] | SD大鼠 | 3、10 mg/kg | AMPK↑、mTOR↓ | 炎症反应↓、细胞凋亡↓ |
| 香豆素类 | 蛇床子素[66] | C57BL/6小鼠 | 50 mg/kg | AMPK/SIRT1/PGC-1α↑ | 自噬↑ |
| 酚苷类 | 红景天苷[67] | Wistar大鼠; 大鼠系膜细胞 | 100 mg/kg; 100 μmol/L | AMPK/SIRT1↑ | 氧化应激↓、细胞凋亡↓ |
| 天麻素[68] | C57BL/6小鼠 | 5、10、20 mg/kg | AMPK/Nrf2↑ | 氧化应激↓、炎症反应↓ |
DKD是一种弥漫性且具有隐匿进展性的肾脏病变,其发病机制复杂,涉及代谢紊乱、自噬异常、细胞异常死亡、氧化应激及炎症反应等多个环节。随着分子生物学研究的发展,AMPK信号通路在DKD中的关键调节作用受到关注,部分能够激活AMPK的药物显示出对DKD的潜在临床应用价值。例如,在第58届美国肾脏病学会年会上,全球首创的抗炎代谢调节剂HTD1801展示出对2型糖尿病伴有轻度肾功能损害患者的肾脏获益证据,其旨在通过激活AMPK及抑制NLRP3的双机制促进肾功能稳态恢复[69]。二甲双胍作为经典的间接性AMPK激活剂,已在多项临床观察中被发现可降低DKD患者肾功能下降速度及终末期肾病风险[70-71]。在中医药领域,获批用于气阴两虚型DKD临床治疗的中成药渴络欣胶囊被证实可通过调控AMPK/NF-κB轴减轻肾脏异位脂质沉积并改善肾功能[72]。此外,津力达颗粒的相关临床研究显示其能够改善DKD患者的肾功能,机制研究表明其作用途径涉及激活AMPK/PGC-1α通路,减轻足细胞凋亡和线粒体功能障碍[73]。这些证据共同揭示了AMPK信号通路在DKD治疗中的核心地位与巨大的临床转化潜力。
由于中药复方物质基础较为复杂,作用机制具有整体性和多维性的特点,故其发挥药效的微观机制常难以精确解析,而聚焦于中药有效成分的研究则能更精准地锁定并阐释其具体的作用靶点与调控网络,为阐释复方整体效应的科学内涵及药理本质提供有效切入点。已有大量研究表明中药有效成分能够调控AMPK信号通路改善DKD[74-75]。因此,本文着眼于AMPK信号通路参与DKD发病的作用机制,系统综述了通过调控AMPK信号通路防治DKD的中药有效成分,主要涉及生物碱、皂苷、黄酮等类别,包含22种不同有效成分。梳理总结后发现,这些有效成分可直接或间接激活AMPK,进而调节下游靶点如mTOR、eNOS、Nrf2、PGC1α、ACC、NLRP3、TLR4等的表达,实现改善肾脏能量代谢、调控自噬、调节脂质代谢、减轻氧化应激和炎症反应、抑制肾脏固有细胞的异常程序性死亡的作用,以保护肾脏结构和功能,延缓DKD的进展。这些调节过程恰好反映了DKD多机制交织的发病特点及中药有效成分的系统调控作用。同时,上述中药有效成分与已知AMPK激活药物在调控代谢稳态、抗炎、抗氧化及改善线粒体功能等方面存在机制趋同性,表明中药有效成分通过AMPK信号通路发挥肾脏保护作用具有坚实的生物学基础,为DKD的中西医协同干预开拓了新思路。
当前研究初步揭示了中药有效成分通过激活AMPK信号通路防治DKD的独特潜力,然而仍然存在一些问题:第一,AMPK作为中药有效成分干预DKD的关键靶点,关于其核心因果调控关系的证据尚不充分,仅有部分研究进行了关键的基因敲除和抑制剂验证,未来的相关研究应注重对AMPK上下游网络的系统验证,以加强证据链的完整性。第二,现有证据以动物和细胞实验为主,其直接应用于临床的有效性有待探究,未来应侧重于开展相关的临床转化研究,特别是设计以AMPK活性变化为关键观察指标,以进一步明确其在DKD治疗中的靶向价值。第三,同一有效成分在不同研究中所用的给药剂量及干预途径缺乏统一规范,限制了研究结果之间的可比性,未来应建立统一的中药有效成分防治DKD的相关实验规范与技术指南,以提高研究可信度。综上,中药有效成分通过激活AMPK信号通路防治DKD已取得一定成果。尽管当前研究还有一定不足,未来借助系统生物学及人工智能等前沿技术手段并通过规范化的药效学及药理毒理评价,可加快基于AMPK通路防治DKD的中药创新药物和治疗方案的临床转化进程,有望为中医药防治DKD的现代化发展开辟全新路径。
| [1] |
DUNCAN B B, MAGLIANO D J, BOYKO E J. IDF diabetes atlas 11th edition 2025: Global prevalence and projections for 2050[J]. Nephrology Dialysis Transplantation, 2025, 41(1): 7-9. DOI:10.1093/ndt/gfaf177 |
| [2] |
COLLABORATORS G C K D. Global, regional, and national burden of chronic kidney disease in adults, 1990-2023, and its attributable risk factors: A systematic analysis for the global burden of disease study 2023[J]. The Lancet, 2025, 406(10518): 2461-2482. DOI:10.1016/S0140-6736(25)01853-7 |
| [3] |
MATSUI S, YAMAMOTO T, TAKABATAKE Y, et al. Defective autophagy and AMPK inactivation drive ferroptosis in diabetic kidney disease[J]. Diabetologia, 2025, 69(3): 815-832. |
| [4] |
HERZIG S, SHAW R J. AMPK: Guardian of metabolism and mitochondrial homeostasis[J]. Nature Reviews Molecular Cell Biology, 2018, 19(2): 121-135. DOI:10.1038/nrm.2017.95 |
| [5] |
TREFTS E, SHAW R J. AMPK: Restoring metabolic homeostasis over space and time[J]. Molecular Cell, 2021, 81(18): 3677-3690. DOI:10.1016/j.molcel.2021.08.015 |
| [6] |
CUI Y, CHEN J, ZHANG Z, et al. The role of AMPK in macrophage metabolism, function and polarisation[J]. Journal of Translational Medicine, 2023, 21(1): 892. DOI:10.1186/s12967-023-04772-6 |
| [7] |
GARCIA D, SHAW R J. AMPK: Mechanisms of cellular energy sensing and restoration of metabolic balance[J]. Molecular Cell, 2017, 66(6): 789-800. DOI:10.1016/j.molcel.2017.05.032 |
| [8] |
TAMARGO-GOMEZ I, MARINO G. AMPK: Regulation of metabolic dynamics in the context of autophagy[J]. International Journal of Molecular Sciences, 2018, 19(12): 3812. DOI:10.3390/ijms19123812 |
| [9] |
CHEN J, LIU B, YAO X, et al. AMPK/SIRT1/PGC-1alpha Signaling pathway: Molecular Mechanisms and targeted strategies from energy homeostasis regulation to disease therapy[J]. CNS Neuroscience and Therapeutics, 2025, 31(11): e70657. DOI:10.1111/cns.70657 |
| [10] |
QI B, CHEN Y, LAN Y, et al. Metformin attenuates O-GlcNAc modification to improve renal function via AMPK/mTOR signaling in diabetic nephropathy[J]. The Journal of Biological Chemistry, 2025, 301(12): 110909. DOI:10.1016/j.jbc.2025.110909 |
| [11] |
LI F, CHEN Y, LI Y, et al. Geniposide alleviates diabetic nephropathy of mice through AMPK/SIRT1/NF-kappaB pathway[J]. European Journal of Pharmacology, 2020, 886: 173449. DOI:10.1016/j.ejphar.2020.173449 |
| [12] |
DUGAN L L, YOU Y H, ALI S S, et al. AMPK dysregulation promotes diabetes-related reduction of superoxide and mitochondrial function[J]. Journal of Clinical Investigation, 2013, 123(11): 4888-4899. DOI:10.1172/JCI66218 |
| [13] |
YU W, HAOYU Y, LING Z, et al. Targeting lipid metabolic reprogramming to alleviate diabetic kidney disease: Molecular insights and therapeutic strategies[J]. Frontiers in Immunology, 2025, 16: 1549484. DOI:10.3389/fimmu.2025.1549484 |
| [14] |
FONTECHA-BARRIUSO M, MARTIN-SANCHEZ D, MARTINEZ-MORENO J M, et al. The role of PGC-1alpha and mitochondrial biogenesis in kidney diseases[J]. Biomolecules, 2020, 10(2): 347. DOI:10.3390/biom10020347 |
| [15] |
TANG C, LIVINGSTON M J, LIU Z, et al. Autophagy in kidney homeostasis and disease[J]. Nature Reviews Nephrology, 2020, 16(9): 489-508. DOI:10.1038/s41581-020-0309-2 |
| [16] |
GOMEZ-VIRGILIO L, SILVA-LUCERO M D, FLORES-MORELOS D S, et al. Autophagy: A key regulator of homeostasis and disease: An overview of molecular mechanisms and modulators[J]. Cells, 2022, 11(15): 2262. DOI:10.3390/cells11152262 |
| [17] |
NAGUIB M, RASHED L A. Serum level of the autophagy biomarker Beclin-1 in patients with diabetic kidney disease[J]. Diabetes Research and Clinical Practice, 2018, 143: 56-61. DOI:10.1016/j.diabres.2018.06.022 |
| [18] |
WANG X, ZENG H X, JIANG L, et al. Clinical significance of glomerular autophagy in evaluation of diabetic kidney disease progression[J]. Diabetes, Metabolic Syndrome and Obesity: Targets and Therapy, 2022, 15: 1945-1959. |
| [19] |
SELIM S M, EL F H, EL-SAYED N M, et al. Alogliptin attenuates STZ-induced diabetic nephropathy in rats through the modulation of autophagy, apoptosis, and inflammation pathways: Targeting NFkappa B and AMPK/mTOR pathway[J]. Life Sciences, 2025, 361: 123307. DOI:10.1016/j.lfs.2024.123307 |
| [20] |
XUE M, YANG F, LE Y, et al. Klotho protects against diabetic kidney disease via AMPK- and ERK-mediated autophagy[J]. Acta Diabetologica, 2021, 58(10): 1413-1423. DOI:10.1007/s00592-021-01736-4 |
| [21] |
REN H, SHAO Y, WU C, et al. Metformin alleviates oxidative stress and enhances autophagy in diabetic kidney disease via AMPK/SIRT1-FoxO1 pathway[J]. Molecular and Cellular Endocrinology, 2020, 500: 110628. DOI:10.1016/j.mce.2019.110628 |
| [22] |
VODOSEK H N, BEVC S, EKART R, et al. Oxidative stress markers in chronic kidney disease with emphasis on diabetic nephropathy[J]. Antioxidants, 2020, 9(10): 925. DOI:10.3390/antiox9100925 |
| [23] |
JOO M S, KIM W D, LEE K Y, et al. AMPK facilitates nuclear accumulation of Nrf2 by phosphorylating at serine 550[J]. Molecular and Cellular Biology, 2016, 36(14): 1931-1942. DOI:10.1128/MCB.00118-16 |
| [24] |
LEE H J, LEE D Y, MARIAPPAN M M, et al. Hydrogen sulfide inhibits high glucose-induced NADPH oxidase 4 expression and matrix increase by recruiting inducible nitric oxide synthase in kidney proximal tubular epithelial cells[J]. The Journal of Biological Chemistry, 2017, 292(14): 5665-5675. DOI:10.1074/jbc.M116.766758 |
| [25] |
JING M, CEN Y, GAO F, et al. Nephroprotective effects of tetramethylpyrazine nitrone TBN in diabetic kidney disease[J]. Frontiers in Pharmacology, 2021, 12: 680336. DOI:10.3389/fphar.2021.680336 |
| [26] |
TANG S, YIU W H. Innate immunity in diabetic kidney disease[J]. Nature Reviews Nephrology, 2020, 16(4): 206-222. DOI:10.1038/s41581-019-0234-4 |
| [27] |
ARAUJO L S, TORQUATO B, DA S C, et al. Renal expression of cytokines and chemokines in diabetic nephropathy[J]. BMC Nephrology, 2020, 21(1): 308. DOI:10.1186/s12882-020-01960-0 |
| [28] |
GU J, YE S, WANG S, et al. Metformin inhibits nuclear factor-kappaB activation and inflammatory cytokines expression induced by high glucose via adenosine monophosphate-activated protein kinase activation in rat glomerular mesangial cells in vitro[J]. Chinese Medical Journal, 2014, 127(9): 1755-1760. DOI:10.3760/cma.j.issn.0366-6999.20132781 |
| [29] |
EFIONG E E, MAEDLER K, EFFA E, et al. Decoding diabetic kidney disease: A comprehensive review of interconnected pathways, molecular mediators, and therapeutic insights[J]. Diabetology & Metabolic Syndrome, 2025, 17(1): 192. |
| [30] |
HOU Y, WANG Q, HAN B, et al. CD36 promotes NLRP3 inflammasome activation via the mtROS pathway in renal tubular epithelial cells of diabetic kidneys[J]. Cell Death and Disease, 2021, 12(6): 523. DOI:10.1038/s41419-021-03813-6 |
| [31] |
LIU X Q, JIANG L, LI Y Y, et al. Wogonin protects glomerular podocytes by targeting Bcl-2-mediated autophagy and apoptosis in diabetic kidney disease[J]. Acta Pharmacologica Sinica, 2022, 43(1): 96-110. DOI:10.1038/s41401-021-00721-5 |
| [32] |
MENGSTIE M A, SEID M A, GEBEYEHU N A, et al. Ferroptosis in diabetic nephropathy: Mechanisms and therapeutic implications[J]. Metabolism Open, 2023, 18: 100243. DOI:10.1016/j.metop.2023.100243 |
| [33] |
FAN Q, LI R, WEI H, et al. Research progress of pyroptosis in diabetic kidney disease[J]. International Journal of Molecular Sciences, 2024, 25(13): 7130. DOI:10.3390/ijms25137130 |
| [34] |
ZHOU J, WANG S, LOU J, et al. FGF4-FGFR1 signaling promotes podocyte survival and glomerular function to ameliorate diabetic kidney disease in male mice[J]. Nature Communications, 2025, 16(1): 10430. DOI:10.1038/s41467-025-65978-4 |
| [35] |
LU Q, YANG L, XIAO J J, et al. Empagliflozin attenuates the renal tubular ferroptosis in diabetic kidney disease through AMPK/NRF2 pathway[J]. Free Radical Biology and Medicine, 2023, 195: 89-102. DOI:10.1016/j.freeradbiomed.2022.12.088 |
| [36] |
WANG M Z, WANG J, CAO D W, et al. Fucoidan alleviates renal fibrosis in diabetic kidney disease via inhibition of NLRP3 inflammasome-mediated podocyte pyroptosis[J]. Frontiers in Pharmacology, 2022, 13: 790937. DOI:10.3389/fphar.2022.790937 |
| [37] |
岳薇薇, 阿克拜尔·乌普, 王卫群. 盐酸小檗碱对链脲佐菌素诱导的糖尿病肾病大鼠AMPK信号通路的调节作用及肾组织保护作用研究[J]. 中医药导报, 2020, 26(16): 1-5. |
| [38] |
杨琳, 王蓉蓉, 郭小雨, 等. 小檗碱激活SIRT1/AMPK信号通路改善高糖诱导的系膜细胞异常增殖和自噬功能[J]. 安徽医科大学学报, 2023, 58(6): 896-901. |
| [39] |
CHEN C, MA J, MIAO C S, et al. Trigonelline induces autophagy to protect mesangial cells in response to high glucose via activating the miR-5189-5p-AMPK pathway[J]. Phytomedicine, 2021, 92: 153614. DOI:10.1016/j.phymed.2021.153614 |
| [40] |
张少泉, 倪向荣, 李鑫辉. 知母皂苷元通过AMPK-mTOR-ULK1途径抑制肾小球系膜基质合成和激活自噬治疗糖尿病肾病的研究[J]. 现代中西医结合杂志, 2021, 30(11): 1180-1186. |
| [41] |
张文龙, 彭红艳, 郭露琴, 等. 基于AMPK信号通路探究黄芪甲苷Ⅳ对糖尿病肾病大鼠的干预机制[J]. 天然产物研究与开发, 2025, 37(9): 1618-1626. |
| [42] |
陈蝶, 安静文, 宋林春, 等. 基于AMPK/ULK1线粒体自噬通路探讨黄芪甲苷抑制细胞焦亡改善糖尿病肾病机制[J/OL]. 中华中医药学刊, (2025-11-12)[2025-12-20]. https://link.cnki.net/urlid/21.1546.R.20251112.1447.047.
|
| [43] |
李国玲, 匡彬, 张舒, 等. 基于AMPK/eNOS信号通路探讨黄芪甲苷改善糖尿病肾病大鼠肾损伤的作用及机制研究[J]. 广州中医药大学学报, 2023, 40(3): 701-707. |
| [44] |
XUE S, FAN W, LI Q, et al. Puerarin attenuates podocyte damage in mice with diabetic kidney disease by modulating the AMPK/Nrf2 pathway[J]. International Journal of Endocrinology, 2025, 2025: 4473803. DOI:10.1155/ije/4473803 |
| [45] |
SUN M Y, YE H J, ZHENG C, et al. Astragalin ameliorates renal injury in diabetic mice by modulating mitochondrial quality control via AMPK-dependent PGC1α pathway[J]. Acta Pharmacologica Sinica, 2023, 44(8): 1676-1686. DOI:10.1038/s41401-023-01064-z |
| [46] |
喻信林, 宋莹, 张宇晴, 等. 山柰酚对高糖诱导的人肾上皮细胞增殖与凋亡的影响[J]. 实用癌症杂志, 2024, 39(7): 1100-1104. |
| [47] |
姚艺, 李艳丽, 丁洪成, 等. 芒柄花苷经AMPK/SIRT1/FoxO1通路对2型糖尿病肾病大鼠肾损伤的改善作用[J]. 河北医学, 2022, 28(11): 1785-1790. |
| [48] |
陈红, 公欣华, 陈丽君, 等. 二氢杨梅素激活AMPK通路预防糖尿病肾病的作用研究[J]. 现代生物医学进展, 2017, 17(34): 6613-6619. |
| [49] |
王静, 李敏, 何立明, 等. 灯盏花素保护大鼠免受糖尿病肾病侵害的作用机制研究[J]. 世界中医药, 2022, 17(22): 3162-3167. |
| [50] |
武俊紫, 胡冬雄, 赵微, 等. 川陈皮素对糖尿病肾病大鼠AMPK和eNOS表达的影响研究[J]. 西部医学, 2019, 31(11): 1657-1662. |
| [51] |
罗丹, 王燕, 丁旭, 等. 川陈皮素调节AMPK/NLRP3信号通路对脂多糖诱导的肾小球系膜细胞炎性损伤的影响[J]. 中药新药与临床药理, 2024, 35(2): 224-229. |
| [52] |
ZHOU G, CUI J, XIE S, et al. Vitexin, a fenugreek glycoside, ameliorated obesity-induced diabetic nephropathy via modulation of NF-kappaB/IkBalpha and AMPK/ACC pathways in mice[J]. Bioscience, Biotechnology, and Biochemistry, 2021, 85(5): 1183-1193. DOI:10.1093/bbb/zbab012 |
| [53] |
徐雪垠. 黄芪多糖通过AMPK/SIRT1/PGC-1α途径对糖尿病肾病肾小管上皮细胞线粒体的影响[J]. 山东医药, 2020, 60(5): 33-37. |
| [54] |
刘旭峰, 冯佳, 王述进, 等. 黄芪多糖对糖尿病肾病大鼠氧化应激和自噬的影响及机制[J]. 山西医科大学学报, 2023, 54(3): 343-351. |
| [55] |
王江侠, 杨丽霞, 米登海, 等. 当归多糖对糖尿病肾病KK-Ay小鼠肾脏AMPK信号通路及线粒体自噬的影响[J]. 中草药, 2023, 54(10): 3189-3196. |
| [56] |
马丽芬, 苏振丽, 王文科, 等. 姜黄素对2型糖尿病肾病模型大鼠肾脏氧化应激以及脂质代谢的保护作用[J]. 中国老年学杂志, 2017, 37(9): 2128-2132. |
| [57] |
葛亮, 谭红金. 传统中药姜黄素促进自噬并减轻大鼠糖尿病肾病肾脏纤维化[J]. 分子植物育种, 2022, 20(6): 2064-2069. |
| [58] |
张正菊, 孟凤仙, 白华, 等. 虎杖苷对糖尿病肾病小鼠AMPKα1/TLR4信号通路的影响[J]. 中国中西医结合杂志, 2019, 39(11): 1378-1384. |
| [59] |
LIANG Y, LIU H, FANG Y, et al. Salvianolate ameliorates oxidative stress and podocyte injury through modulation of NOX4 activity in db/db mice[J]. Journal of Cellular and Molecular Medicine, 2021, 25(2): 1012-1023. DOI:10.1111/jcmm.16165 |
| [60] |
宋其蔓, 刘勇, 徐新禹, 等. 雷公藤多甙通过AMPK途径减轻糖尿病大鼠肾脏组织中炎症及氧化应激的实验研究[J]. 临床和实验医学杂志, 2020, 19(5): 464-468. |
| [61] |
CHEN J, YANG Y, LV Z, et al. Study on the inhibitive effect of Catalpol on diabetic nephropathy[J]. Life Sciences, 2020, 257: 118120. DOI:10.1016/j.lfs.2020.118120 |
| [62] |
申亮, 王培珍, 王鑫. 番泻叶苷A基于AMPK/Nox4信号通路对糖尿病肾病小鼠的作用[J]. 西北药学杂志, 2023, 38(4): 84-89. |
| [63] |
张正菊, 张承承, 白华, 等. 大黄素对糖尿病肾病小鼠AMPKα1/TLR4/p65信号通路的影响[J]. 世界中西医结合杂志, 2019, 14(12): 1685-1690. |
| [64] |
周磊, 艾望, 陈小娟, 等. 萝卜硫素对高糖诱导人肾小管上皮细胞增殖和凋亡的影响及机制[J]. 中国药房, 2021, 32(24): 3000-3007. |
| [65] |
闫萌萌, 徐林丽, 刘岩岩, 等. 苦杏仁苷对糖尿病肾病大鼠肾小管上皮细胞损伤的影响[J]. 中国临床药理学杂志, 2024, 40(7): 1019-1023. |
| [66] |
毕智敏, 伍军, 张艳霞. 基于AMPK/SIRT1/PGC-1α信号通路探讨蛇床子素对糖尿病小鼠肾脏自噬水平及肾间质纤维化的影响[J]. 中国老年学杂志, 2025, 45(6): 1499-1503. |
| [67] |
SHATI A A. Salidroside ameliorates diabetic nephropathy in rats by activating renal AMPK/SIRT1 signaling pathway[J]. Journal of Food Biochemistry, 2020, 44(4): e13158. |
| [68] |
ZHAO S, PAN Q, LIN X, et al. Gastrodin ameliorates diabetic nephropathy by activating the AMPK/Nrf2 pathway[J]. Journal of Molecular Histology, 2024, 55(6): 1327-1339. DOI:10.1007/s10735-024-10273-7 |
| [69] |
SURMONT F A, GAO L, LIU K, et al. Evidence of kidney benefit with htd1801 in patients with mild renal impairment[EB/OL]. (2025-11-07)[2026-01-09]. https://www.asn-online.org/education/kidneyweek/2025/program-abstract.aspx?controlId=4399019.
|
| [70] |
SONG A, ZHANG C, MENG X. Mechanism and application of metformin in kidney diseases: An update[J]. Biomedicine & Pharmacotherapy, 2021, 138: 111454. |
| [71] |
WANG H, LIN S, HUNG S, et al. Renal protective effect of metformin in type 2 diabetes patients[J]. The Journal of Clinical Endocrinology and Metabolism, 2025, 110(5): 1224-1234. DOI:10.1210/clinem/dgae477 |
| [72] |
ZHANG S, WEN Z, CHEN Y, et al. Keluoxin reduces renal lipid deposition in diabetic nephropathy via AMPK/NF-kappaB-mediated mtabolic regulation[J]. Phytomedicine, 2025, 145: 156776. DOI:10.1016/j.phymed.2025.156776 |
| [73] |
SUN S, YANG S, CHENG Y, et al. Jinlida Granules alleviate podocyte apoptosis and mitochondrial dysfunction via the AMPK/PGC-1alpha pathway in diabetic nephropathy[J]. International Journal of Molecular Medicine, 2025, 55(2): 26. |
| [74] |
杨舒雅, 曾静, 胥勋梅, 等. 当归红芪超滤膜提取物调控p38 MAPK/CREB信号通路对糖尿病肾病大鼠的肾脏保护作用研究[J]. 天津中医药, 2026, 43(1): 90-95. |
| [75] |
张西巧, 张学琴, 马赟, 等. 化瘀通络中药通过调控AMPK/mTOR通路激活自噬改善糖尿病肾病大鼠肾损伤[J]. 天津中医药, 2025, 42(5): 656-661. |
2. State Key Laboratory of Component-Based Chinese Medicine, Tianjin 301617, China;
3. State Key Laboratory of Modern Chinese Medicine Creation, Tianjin 301617, China;
4. The 988th Hospital of the Joint Logistics Support Force of the Chinese People's Liberation Army, Zhengzhou 450000, China;
5. The First Affiliated Hospital of Henan University of Chinese Medicine, Zhengzhou 450000, China;
6. Baokang Hospital Affiliated to Tianjin University of Traditional Chinese Medicine, Tianjin 300193, China