 2026, Vol. 43
文章信息
- 钟吉崴, 王继达, 曹东东, 等.
- ZHONG Jiwei, WANG Jida, CAO Dongdong, et al.
- 从“补肾活血”法探讨淫羊藿苷调节软骨细胞自噬治疗膝骨关节炎的研究进展
- Research progress on icariin in regulating chondrocyte autophagy for the treatment of knee osteoarthritis based on the "tonifying kidney and activating blood" theory
- 天津中医药, 2026, 43(7): 928-936
- Tianjin Journal of Traditional Chinese Medicine, 2026, 43(7): 928-936
- http://dx.doi.org/10.11656/j.issn.1672-1519.2026.07.15
-
文章历史
- 收稿日期: 2026-04-28


引用本文 |


2. 中医国家临床医学研究中心,天津 300381;
3. 天津中医药大学,天津 301617
膝骨关节炎(KOA)是一种以关节软骨退变、软骨下骨硬化及滑膜炎症为主要病理特征的慢性退行性疾病[1],其临床表现为关节疼痛、肿胀及功能障碍[2],严重影响患者生活质量。随着人口老龄化进程加剧,中国KOA患病率已达17%~18%,患者人数约1.2亿,且呈持续增长趋势[3-4]。目前,临床多采用关节腔注射等缓解症状的保守疗法,尚缺乏能有效延缓甚至逆转疾病进展的药物[5]。本病属“痹证”“骨痹”“鹤膝风”范畴,《中藏经·五痹》明确指出“骨痹者,乃嗜欲不节,伤于肾也”,强调肾虚为本病的发病基础。肾精亏虚则骨失所养,加之久病入络、气血瘀滞,形成本虚标实的复杂病机[6]。针对这一基本病机,治疗可采用“补肾”以固其本、治其虚,活血”以祛其标、化其瘀,以“补肾活血”作为治疗KOA的重要策略[7]。
细胞自噬是细胞通过溶酶体途径降解受损细胞器及异常蛋白质的基本生命过程,软骨细胞自噬在KOA发展过程中扮演关键角色,健康的软骨细胞通过清除代谢废物和维持能量平衡保障其自身的存活与功能,因此,保护软骨细胞存活的治疗策略被认为具有重要临床价值[8]。淫羊藿苷(ICA)对KOA的干预作用呈现多靶点、多途径的特点[9],其核心药理机制主要通过缓解症状、促进修复及改善微环境等方面得以体现[10]。研究表明,ICA不仅能通过抑制炎症因子释放缓解关节疼痛[11-12],还能通过促进间充质干细胞成骨分化、增强软骨自身修复能力,并通过改善骨髓微血管内皮细胞外泌体功能、促进血管生成,从而优化软骨修复的局部微环境[13],尤为重要的是,ICA可通过调控5’-腺苷酸活化蛋白激酶/哺乳动物雷帕霉素靶蛋白(AMPK/mTOR)等多条信号通路调节软骨细胞自噬,这为阐释“补肾活血”理论的现代科学内涵提供了新的视角。综上,ICA在KOA干预中展现出多方面的治疗潜力,其多机制协同作用为KOA的临床治疗提供了重要的理论与实验依据。笔者将基于“补肾活血”理论,综述ICA调节软骨细胞自噬治疗KOA的研究进展,分析其应用价值,为KOA的药物研发提供新思路。
1 肾虚血瘀型KOA补肾活血治则及其病理机制理论探讨KOA在中医理论中多归属于“痹证”“骨痹”“鹤膝风”等范畴,其病机特点以本虚标实为主。历代医家普遍认为,肾虚是本病发生发展的内在基础,而血瘀则是疾病迁延、症状加重的重要病理因素,两者相互影响,构成“肾虚血瘀”的核心病机模式[6,14]。从肾虚血瘀证候出发阐释KOA的发病特点,并据此确立相应治则,是中医认识和治疗本病的重要理论基础。
中医认为“肾主骨,生髓”,肾精充盛则骨骼得养、关节强健。《素问·宣明五气篇》提出“肾主骨”,奠定了肾与骨关节疾病关系的理论基础[6]。随年龄增长或久病耗损,肾精渐亏,骨失所养,关节稳固功能下降,为KOA的发生提供内在条件[6,15]。在此基础上,肾虚气化无力,推动血行乏力,或久病入络,易致血行不畅、瘀血内停。《素问·调经论》指出“血气不和,百病乃变化而生”,强调气血运行失调在疾病发生中的重要作用;朱丹溪亦提出“瘀血久留,必成窠臼”,揭示瘀血在疾病迁延及关节形态改变中的致病意义[15],瘀血既是肾虚发展的病理结果,又可进一步阻滞经络、耗伤正气,形成“因虚致瘀、因瘀伤正”的病理演变过程[6,15]。
《膝骨关节炎中西医结合诊疗指南(2023)》将肾虚血瘀证”列为KOA的核心证型之一,其临床多表现为腰膝酸软、关节疼痛固定、屈伸不利,舌质暗或有瘀斑等[2]。从现代研究角度看,软骨组织修复能力减弱及关节局部微环境失衡,可在一定程度上反映“肾精亏乏、骨失所养”的病理状态[16];而滑膜微循环障碍及慢性炎症反应持续存在,则与“瘀血内停、络阻不通”的病机内涵具有一定对应关系[17]。相关研究还发现,“肾虚”常伴随骨代谢相关指标异常,而“血瘀”状态多与血液流变学异常及微循环灌注不足有关[18-19]。
基于上述病机特点,“补肾活血”被确立为治疗肾虚血瘀型KOA的重要治则。补肾重在填精生髓、强筋壮骨,以固其本;活血旨在化瘀通络、改善血行,以治其标,两者相辅相成,体现了中医标本兼治的整体观念[18,20]。多项临床研究表明,补肾活血方药在缓解关节疼痛、改善关节功能等方面具有较好疗效,且安全性较高[21-22]。
从病理机制层面认识,补肾活血治则并非针对KOA病理过程中的单一环节发挥作用,而是通过多方面调节共同参与疾病进展的干预。现有研究认为,KOA的发生发展涉及软骨退变、滑膜炎症及关节局部微循环障碍等多种因素相互作用,其病理过程具有长期性和复杂性[18,23]。研究证明,补肾活血治则在整体干预KOA过程中,可能通过改善软骨组织稳态和促进组织修复能力,为关节结构稳定提供基础支持[24-27]。其中,“补肾”侧重于增强机体整体及局部的修复基础,通过改善内在调节能力,为软骨结构稳定和功能维持提供支持[22]。“活血”则重在改善关节局部血行状态,促进代谢产物清除,缓解因瘀血阻络所致的组织损伤,其在改善关节局部微循环和炎症状态方面的作用已得到多项研究支持[25-26]。两者在作用层面上相互补充,共同参与关节局部环境的调节过程。
综上所述,从整体病理进程看,补肾与活血并非各自独立发挥作用,而是在调节关节局部环境、延缓软骨退变及维持关节功能方面形成协同效应。相关研究认为,该协同调节过程与炎症控制、组织稳态维持及修复能力改善密切相关,从而在一定程度上解释了补肾活血治则在临床上改善症状、延缓病程的综合效应[27]。肾虚血瘀是KOA发生发展的重要病机基础,“补肾活血”治则在传统理论与现代研究中均具有较为充分的依据,为本文进一步探讨ICA干预KOA的作用机制,提供了清晰而稳定的理论支撑
2 基于补肾活血法的ICA应用证据ICA作为补肾阳类中药淫羊藿的核心活性成分,其药理作用与中医“补肾活血”治法高度契合。现有研究表明,ICA通过多靶点、多途径机制,在骨代谢调控、软骨修复及关节局部微环境改善等方面发挥综合作用,为其干预KOA提供了较为充分的实验依据。
从“补肾”角度看,中医认为“肾主骨,生髓”,肾精亏虚则骨失所养,是KOA发生发展的重要内在基础。现代研究发现,ICA可通过快速诱导胰岛素样生长因子-1(IGF-1)受体与雌激素受体α的相互作用,激活磷脂酰肌醇3-激酶(PI3K)/蛋白激酶B(AKT)等成骨相关信号通路,促进成骨分化;同时,下调活化T细胞核因子胞质1型(NFATc1)、组织蛋白酶K(Ctsk)等破骨细胞标志基因的表达,抑制破骨细胞分化与骨吸收活性,从而维持骨代谢稳态[28]。上述作用有助于改善KOA中软骨下骨结构异常及关节力学环境,为软骨修复提供稳定的结构基础。
在此基础上,ICA还可通过调节炎症反应与氧化应激状态,改善关节局部微环境。研究显示,ICA能抑制白细胞介素(IL)-1β、肿瘤坏死因子-α(TNF-α)等促炎因子的释放,并通过降低活性氧(ROS)水平缓解氧化应激,从而减轻炎症介导的软骨损伤,为软骨细胞稳态维持和修复过程创造有利条件[29]。
既往研究显示,ICA在多种“肾虚血瘀”相关疾病模型中,均可通过调控能量代谢[30]、自噬活性[31]及氧化应激相关通路改善组织稳态[30-31]。鉴于上述机制在KOA的软骨退变、关节微环境失衡及自噬功能障碍中同样具有重要病理意义,这些研究为ICA在KOA中发挥“补肾活血”效应提供了机制层面的旁证支持[32]。
此外,在复方与配伍研究中,ICA常作为补肾活血类方剂的重要活性成分参与整体干预,其在动物实验中对能量代谢、炎症反应及组织修复能力的协同改善作用,进一步提示补肾活血中药活性成分ICA在针对“肾虚血瘀”这一KOA核心病机时具有较好的配伍合理性[33]。
综上所述,ICA的“补肾”与“活血”作用在KOA中并非孤立存在,而是通过协同调节骨代谢、软骨细胞稳态及关节局部微环境,形成多靶点干预模式。上述应用证据为后续重点探讨ICA调控软骨细胞自噬治疗KOA的分子机制奠定了基础。
3 ICA调节软骨细胞自噬治疗KOA的作用机制 3.1 ICA对软骨细胞自噬核心通路的调控作用研究表明,ICA对软骨细胞自噬的调控可归纳为“以哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)为汇聚闸门的层级网络”:上游以沉默信息调节因子1(SIRT1)/5’-腺苷酸活化蛋白激酶(AMPK)为主要能量感知/放大输入,促使AMPK活化并通过结节性硬化复合物蛋白2(TSC2)/调控相关蛋白Raptor等节点抑制mTORC1;与之相对,炎症/氧化应激条件下PI3K/AKT分支可通过结节性硬化症蛋白2(TSC2)等节点促进mTORC1活化,构成对AMPK输入的对向调制。两路信号在mTORC1节点完成“方向决策”,进而将下游输出分配至两个功能模块:其一为Unc-51样激酶1(ULK1)介导的自噬启动模块,其二为转录因子EB(TFEB)介导的溶酶体生成/自噬流完成模块。在该框架下,研究显示ICA可显著提高p-AMPK/AMPK比值并降低p-mTOR/mTOR比值,解除mTORC1对ULK1的抑制,从而触发自噬体形成并促进自噬启动[34]。体外实验已证实,在OA软骨细胞中激活AMPK可有效逆转自噬受损状态,恢复细胞稳态[35]。此外,ICA可通过激活SIRT1/AMPK进一步增强对mTORC1的抑制输入,使自噬启动更稳定[36]。然而,自噬体形成仅代表自噬启动被触发,并不能等同于自噬功能的有效实现;自噬保护效应的建立更依赖于自噬流的连续运行与终末降解能力。作为自噬过程由“启动”迈向“完成”的关键转折点,TFEB在ICA介导的自噬调控中承担溶酶体—自噬系统的容量扩增功能。研究提示,ICA可促进TFEB核转位;TFEB激活后驱动溶酶体生物合成及自噬相关基因转录,上调溶酶体相关膜蛋白1(LAMP1)、自噬相关基因/蛋白(ATG)家族等蛋白表达,增强自噬体与溶酶体融合及降解能力,从而保障自噬流完整性。分子层面表现为微管相关蛋白1轻链3(LC3)-Ⅱ/Ⅰ与Beclin-1升高、p62下降,提示软骨细胞自噬通量得到恢复[37-38]。
在自噬启动与自噬流维持建立的基础上,ICA进一步作用于稳态维持层级,通过激活PTEN诱导激酶1(PINK1)/帕金蛋白(Parkin)介导的线粒体自噬选择性清除受损线粒体,维持线粒体功能及细胞能量稳态[37-38]。线粒体自噬的增强不仅有助于减少活性氧(ROS)过度累积,还可对AMPK信号形成正反馈支持,从而进一步巩固自噬调控网络的稳定性。
在功能层面,ICA介导的自噬增强一方面通过下调Bax/B细胞淋巴瘤2(Bcl-2)比值抑制软骨细胞凋亡[39]另一方面通过抑制基质金属蛋白酶表达并缓解氧化应激,减少细胞外基质降解和软骨损伤[38]。综上所述,ICA通过整合AMPK/mTOR介导的自噬启动、TFEB介导的自噬流维持及PINK1/Parkin介导的线粒体稳态调控,构建了一个具有明确层级分工与因果衔接的自噬调控网络。这一网络化调控模式构成ICA改善KOA病理进程的核心分子机制。然而,ICA与ULK1、SIRT1等关键调控节点之间的直接相互作用模式及其时空动态特征,仍有待进一步深入研究[11]。
3.2 ICA通过改善关节微环境间接调控软骨细胞自噬在以AMPK/mTOR/TFEB轴为核心的自噬调控网络基础上,ICA还通过改善关节局部微环境,对软骨细胞自噬形成间接但关键的支持作用,从而放大其整体保护效应。研究显示,ICA能够通过直接促进自噬体与溶酶体融合,增强自噬流运行效率,清除受损细胞器并维持软骨细胞稳态。分子对接及计算模拟研究提示,ICA可通过结合TFEB的特定氨基酸位点(ARG304、THR308、GLN311),促进其核转位,激活溶酶体生物合成及自噬相关基因表达[32]。与此同时,自噬水平的提升还有助于抑制血管内皮细胞铁死亡过程,减轻脂质过氧化与ROS积累,从而缓解关节局部炎症反应与氧化损伤[40,32]。除直接作用外,ICA还可通过改善关节微环境进一步支持自噬调控网络的稳定运行。具体而言,ICA经由TFEB通路改善线粒体膜电位并降低ROS水平[41],维持线粒体功能完整性,从而减少软骨细胞凋亡及IL-1β、基质金属蛋白酶(MMP)13等炎症因子的释放。该作用机制与Koumine通过激活线粒体自噬抑制软骨退变的研究结论相互印证[42]。此外,ICA还表现出多通路协同调控自噬的潜力,不仅可通过SIRT1/AMPK/叉头框蛋白O3(FOXO3)通路间接促进自噬,还可抑制PI3K/AKT/mTOR等自噬负调控信号[43],与已知自噬诱导剂辛基衣康酸(OI)的作用机制一致[44]。综上,ICA通过改善关节局部氧化应激、炎症反应及线粒体功能状态,为自噬调控网络的持续发挥提供有利微环境条件,使直接的自噬调控效应得以放大并稳定维持。自噬诱导比较见表 1。
| 自噬诱导剂 | 给药途径 | 自噬主轴/关键节点 | 主要药效终点 | 参考文献 |
| 淫羊藿苷(ICA) | 口服/灌胃; 转化优先: 关节内注射(IA)局部+缓释/靶向 | SIRT1/AMPK ↑ PI3K/AKT/mTOR ↓ ULK1 ↑ TFEB核转位↑自噬流↑ | ↓炎症/↓ ROS/↓凋亡/↑细胞外基质(ECM)稳态/结构改善↑ | [16, 32, 40] |
| 钩吻素子(Koumine) | 多为系统给药+细胞/动物 | mitophagy主轴: PINK1/Parkin ↑ | ↓炎症/↓ ECM降解/↓退变(随mitophagy↑) | [42] |
| 4-辛基衣康酸(4-OI) | 多为系统给药+细胞/动物 | PI3K/AKT/mTOR ↓→自噬↑ | ↓退变/↓炎症(与自噬↑相关) | [44] |
| 硫酸软骨素A-硒纳米颗粒(CSA-SeNP) | 纳米/材料体系给药(多体外/特定损伤模型) | SIRT1/AMPK/FOXO3 ↑(材料-抗氧化-自噬激活) | ↓氧化损伤/↑线粒体功能/↑自噬指标 | [42] |
| 注:↑表示上调、激活或促进;↓表示下调、抑制或减少。 | ||||
现有研究显示,部分补肾或活血类中药活性成分亦可通过不同途径参与软骨代谢调节及炎症反应干预,并在一定程度上涉及自噬相关过程的调控。例如,有研究报道葛根素、甘草苷及补骨脂素等成分在抗炎、抗氧化或促进骨修复方面具有一定作用[45-46]。然而,上述研究多集中于单一作用环节,其对自噬过程的调控多为间接或伴随效应,相关机制尚缺乏系统阐释[47]。相比之下,ICA在KOA研究中已形成相对连续的证据链,其作用不仅覆盖炎症抑制、氧化应激缓解和骨代谢调节等多个病理环节,更在分子层面明确指向AMPK/mTOR、SIRT1/AMPK及TFEB等自噬核心调控轴,体现出以自噬调节为关键枢纽、不同通路分工协同的网络化调控特征[43]。因此,本文将研究重点聚焦于ICA调控软骨细胞自噬的作用机制,以期更清晰地阐释补肾活血”理论在KOA防治中的现代生物学内涵。
4 中医“补肾活血”理论与ICA调节软骨细胞自噬的关系中医认为KOA属“骨痹”“痹证”范畴,其病机多呈“肾虚为本、瘀阻为标”的本虚标实格局。肾精亏虚则骨失所养、筋脉失濡,软骨修复与代谢稳态维持能力下降;瘀血阻络则气血运行不畅,关节局部微循环障碍、缺氧与代谢废物堆积,形成炎症持续与退变加重的恶性循环。现代研究显示,自噬作为维持软骨细胞代谢稳态、清除受损蛋白与线粒体、调控炎症与凋亡的重要机制,其功能下降可促使ROS累积、炎症激活及基质降解加重,从而推动KOA进展。因此,从“肾虚血瘀—稳态失衡—自噬障碍—软骨退变”的连续链条出发,将ICA对自噬相关信号的调控纳入网络化解释,可为“补肾活血”法治疗KOA提供更可追溯的分子机制基础[10,32]。为避免多通路“并列罗列”,本章采用层级网络(hierarchy)视角组织证据:上游输入(SIRT1/AMPK与PI3K/AKT)在mTORC1节点竞争整合(最高优先级门控),下游分别驱动自噬启动(ULK1)与自噬流维持(TFEB-溶酶体生物发生/融合),从而共同影响炎症、凋亡与细胞外基质(ECM)稳态输出。
4.1 “补肾”功效与ICA激活软骨细胞自噬的理论关联中医理论强调“肾主骨,生髓”,肾精亏虚则骨失所养、筋脉失濡,是KOA发生发展的重要内在基础。在现代病理学中,软骨细胞能量代谢与稳态维持能力下降、线粒体损伤积累及自噬功能不足,可导致细胞衰老、凋亡和基质合成能力下降,从而推动软骨退变进程。现代研究发现,作为补肾要药淫羊藿的核心成分,ICA能够通过多途径调控软骨细胞自噬,改善细胞稳态,为“补肾壮骨”理论提供了分子生物学依据[48]。
在延缓细胞衰老方面,《灵枢·经脉》曰:“人始生,先成精,精成而脑髓生,骨为干,脉为营”,阐明肾精”作为生命物质基础的重要地位。研究发现,ICA通过激活自噬通路促进衰老相关蛋白核纤层蛋白B1(Lamin B1)的降解,在酸性微环境中显著延缓酸敏感离子通道1a(ASIC1a)介导的软骨细胞衰老进程[24]。上述结果提示,应激微环境下自噬不足可能加速衰老相关蛋白累积与功能退变,而ICA通过增强自噬促进结构更新,从分子层面为“肾精充则骨得所养、退变可缓”的治疗逻辑提供了可追溯解释[24,32]。
在调节能量代谢方面,《素问·六节藏象论》云:肾者,主蛰,封藏之本”,揭示了肾在能量储存与转化中的关键作用。ICA通过上调SIRT1表达,激活SIRT1/AMPK信号轴,该通路作为细胞能量感受器,在能量应激时启动自噬,将细胞内受损成分转化为可利用资源[36]。同时,ICA通过该通路调控PINK1/Parkin介导的线粒体自噬,维持细胞能量代谢稳态[33],因此,ICA通过激活SIRT1/AMPK并促进线粒体自噬,改善软骨细胞能量供需与损伤清除能力,从现代机制层面为“肾藏精、精化气”所体现的代谢调控功能提供了可验证的微观解释。ICA通过直接结合TFEB并促进其核转位,显著增强了自噬流整体效率,这是其维持软骨细胞内环境稳定的关键环节[40]。
此外,关节局部微环境的改善亦是软骨稳态维持的重要外部条件。《素问·金匮真言论》言:“夫精者,身之本也”,强调了“肾精”是构成人体和维持生命活动的根本物质。TFEB通过促进自噬体-溶酶体融合,及时清除衰老、受损的细胞器与蛋白质,并将分解产物重新用于合成代谢与能量供给。这一过程,在细胞层面精准地演绎了“肾精”作为生命基础物质,其“盈满而不壅滞、耗损而能再生”的动态平衡特性,是“肾精”得以持续发挥濡养骨骼作用的微观体现。ICA通过增强自噬,有效抑制了血管内皮细胞铁死亡,改善了关节局部血供[40-41]。中医认为“精能生髓,髓能化血”“肾精充盈则血液充沛”。在KOA关节微环境中,充足的灌注与营养供给有助于软骨细胞维持稳态,自噬通过促进细胞损伤清除并改善局部应激负荷,进一步体现“补肾壮骨”在“固本”层面的综合意义。
在调节阴阳平衡方面,《景岳全书》强调“阴阳之理,原自互根”,强调肾阴肾阳的相互制约与动态平衡关系。对应到分子层面,PI3K/AKT/mTOR轴偏向促进合成代谢并对自噬形成负调控;在炎症/氧化应激持续作用下,该分支过度活化可增强mTORC1输出,抑制ULK1介导的自噬启动并削弱TFEB相关的溶酶体生成与自噬流完成能力,从而降低损伤清除效率并放大促炎介质释放与基质降解反应。因而,ICA对PI3K/AKT/mTOR分支的抑制可被视为对上述“促合成—抑自噬”偏置的回调,有助于恢复自噬稳态并降低炎症负荷[10,16]。结合中医治法阐释,这种“纠偏复衡”的调控方向可概括为“抑其偏亢、扶其不足,以归于阴阳平衡”,体现调节阴阳平衡的治疗特色。
需要强调的是,“补肾”在本虚层面改善软骨细胞稳态与修复潜能,亦可为关节局部微环境改善提供基础。中医认为“肾精充则气化健,气行则血行”,补肾常与活血相须为用,体现从“固本”到“通络”的连续治疗策略。相应地,ICA在增强自噬稳态的同时还能降低炎症负荷与氧化应激,从而为其后续“活血通络、化瘀止痛”的机制阐释提供逻辑承接。综上所述,ICA通过多靶点调控自噬网络,在分子、细胞和组织层面系统阐释了“补肾壮骨”理论的科学内涵,为中医药现代化研究提供了范例。见图 1。
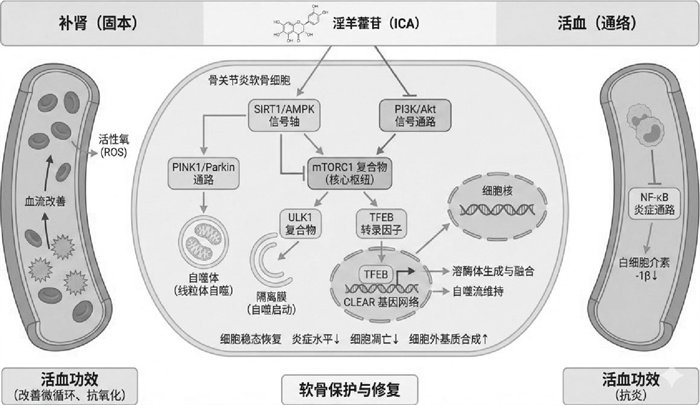
|
| 注:使用Biorender网站软件绘制。 图 1 基于“补肾活血”理论的淫羊藿苷调控软骨细胞自噬多靶点分子网络机制示意图 Fig. 1 Schematic diagram of the multi-target molecular network mechanism by icariin regulating chondrocyte autophagy based on the"tonifying kidney and activating blood"theory |
《素问·调经论》中强调“血气不和,百病乃变化而生”,其明确指出“活血”在维持机体健康中的核心地位。现代研究表明,在KOA关节微环境中,ICA可通过多靶点调控自噬相关通路,改善缺氧、炎症与氧化应激等病理因素,从而与“活血化瘀、通络止痛”的功效形成机制性关联。
在改善微循环方面,ICA的作用可归纳为两条机制链并在mTORC1节点汇聚:其一,ICA通过促进TFEB相关溶酶体功能与自噬流完整性,清除诱发血管内皮细胞铁死亡的受损组分,从而维持内皮功能并改善局部灌注[40,49];其二,ICA可抑制AKT/TSC2/Rheb/mTOR级联并增强SIRT1/AMPK输入,进一步降低mTORC1活性并动员FOXO3相关抗氧化与线粒体稳态程序,减轻线粒体氧化损伤,为微循环恢复提供分子支持[50]。这一系列分子机制共同构成了ICA改善微循环的完整机制链[44],与《血证论》“瘀血去则新血生”的论述相印证,从微观层面阐释了ICA “活血通络”的现代生物学基础。
在抗氧化应激方面,ICA通过激活自噬有效清除受损线粒体及氧化产物,抑制血小板异常聚集,同时提高一氧化氮生物利用度,增强血管舒张功能[51],印证了《诸病源候论》所述“血行失度”而致“瘀血”的病机转归,ICA通过恢复氧化-抗氧化平衡,维持血液正常运行,实现了“化瘀”的功效。
在调节免疫炎症方面,ICA通过抑制NF-κB活性和IL-1β等促炎因子释放[52],减轻炎症对自噬的干扰,同时通过ER-α36/G蛋白偶联雌激素受体(GPER)受体激活自噬,调控骨保护素(OPG)/核因子-κB受体活化因子配体(RANKL)比值,抑制炎症微环境过度活化[19]。自噬增强还可清除炎症小体(如NLRP3),形成抗炎与自噬的良性循环[53]。这与《医林改错》中“瘀血致痹”理论相应,表明ICA通过调节骨免疫微环境,在“活血”的同时实现“生骨”的功效。ICA通过维持自噬-凋亡平衡对软骨细胞发挥综合保护作用:抑制半胱氨酸-天冬氨酸蛋白酶-3(Caspase-3)等凋亡相关蛋白[54],减少衰老标志物表达[19],同时促进ECM合成[55]。这种“祛瘀生新”效应与中医“瘀去新生”的治疗理念高度契合。此外,ICA还通过调节肠道菌群-自噬轴改善全身组织修复能力[56],为“活血通络”提供了潜在的“肠—骨/血管轴”解释,但其在KOA中的直接证据仍需进一步验证。
从整体来看,ICA以自噬为枢纽同时干预软骨细胞稳态与关节微环境,呈现“补肾以固本、活血以通络”的连续作用链条,从现代机制层面进一步支持了“补肾活血”法治疗KOA的理论合理性。综上所述,ICA通过靶向TFEB、P53、PI3K/Akt/mTOR等多条通路,在血管保护、氧化应激调节、免疫微环境平衡等层面形成网络化调控,从分子层面系统阐释了其“活血化瘀、通络止痛”功效的科学内涵,为中医药“活血”理论的现代化研究提供了新的方向。
5 讨论本研究基于“补肾活血”理论视角,系统梳理了ICA调控软骨细胞自噬干预KOA的潜在机制,为传统治法提供了现代分子解释。研究证据提示,ICA主要通过增强SIRT1/AMPK的能量感知输入并削弱PI3K/AKT的对向促活调制,在mTORC1汇聚节点处重定向下游输出至ULK1自噬启动模块与TFEB介导的溶酶体生成/自噬流完成模块,并在PINK1/Parkin线粒体自噬反馈支持下促进损伤清除,协同降低氧化应激与炎症反应,维持软骨基质代谢平衡。这种多靶点综合调控模式与中医整体观相契合,也为“补肾强骨”“活血生骨”等理论提供了可解释的生物学基础。
然而,从证据层级与机制严谨性角度审视,现有研究仍存在若干关键问题。首先,自噬在KOA中的作用可能具有“双相性”,适度自噬可促进损伤清除并发挥保护效应,但过度或失控的自噬亦可能诱导Ⅱ型程序性细胞死亡并加速软骨细胞丧失。目前多数研究倾向于强调ICA激活自噬的保护作用,但对不同KOA分期、不同刺激强度下自噬“最佳调控窗口”与阈值范围缺乏系统比较,使得“激活自噬必然获益”的推断仍需谨慎。其次,现有机制证据多停留在相关性层面,不少研究主要依据LC3、Beclin-1、p62等标志物变化推断自噬参与,但缺乏自噬关键基因敲除或特异性抑制剂的功能性验证,因此“自噬是否为ICA发挥软骨保护作用的必要机制”仍有待进一步确证。再次,模型与中医证候一致性不足亦影响结论外推。当前研究多采用炎症因子诱导或单一动物造模方式,难以全面模拟KOA病程中“退变—炎症—微环境失衡”的复杂演变,更难体现“肾虚血瘀”本虚标实、动态发展的证候特征,限制了中西医结合阐释的深度与临床精准转化。
基于上述不足,未来研究一方面应在“证候—分期”框架下构建更贴近临床病程演变的KOA模型,结合多组学与功能学终点评估,从整体层面界定ICA干预的适用窗口与关键表型;另一方面需引入自噬关键基因敲除/沉默及通路特异性抑制等因果验证策略,明确ICA调控自噬的必要环节、上下游顺序与有效阈值。在医学转化层面,应以“局部有效暴露”为核心完善剂量—暴露—效应(D-PK-PD)研究:优先评估关节腔内给药与可注射缓释体系(如水凝胶/微球/支架)对关节驻留与软骨渗透的提升,并进一步引入软骨/炎症微环境靶向或仿生载体策略以增强病灶富集;同时探索低强度脉冲超声(LIPUS)作为协同治疗或外源触发信号对递送效率与释放动力学的增益窗口。类似关节内注射雷帕霉素微粒与“两阶段递送系统”已被用于提升关节驻留与渗透并改善OA表型,可作为未来ICA关节局部缓释/递送优化的可移植范式。除常规系统PK参数外,应建立关节局部暴露指标(滑液/软骨浓度—时间曲线、驻留时间、组织分布)与长期结构安全性评估,并在规范化临床前证据基础上开展多中心临床研究以提升证据等级,从而推动补肾活血相关活性成分由机制证据走向可验证的临床应用路径。
| [1] |
ZHU C, ZHANG L, DING X, et al. Non-coding RNAs as regulators of autophagy in chondrocytes: Mechanisms and implications for osteoarthritis[J]. Ageing Research Reviews, 2024, 99: 102404. DOI:10.1016/j.arr.2024.102404 |
| [2] |
中华中医药学会. 膝骨关节炎中西医结合诊疗指南(2023年版)[J]. 中医正骨, 2023, 35(6): 1-10. |
| [3] |
程亭秀, 刘树强. 膝骨性关节炎的自我康复[J]. 家庭中医药, 2021, 28(1): 49-51. |
| [4] |
王斌, 邢丹, 董圣杰, 等. 中国膝骨关节炎流行病学和疾病负担的系统评价[J]. 中国循证医学杂志, 2018, 18(2): 134-142. |
| [5] |
DHANABALAN K M, DRAVID A A, AGARWAL S, et al. Intra-articular injection of rapamycin microparticles prevent senescence and effectively treat osteoarthritis[J]. Bioengineering & Translational Medicine, 2023, 8(1): e10298. |
| [6] |
徐传毅, 樊粤光, 宁显明. 肾虚血瘀与膝骨性关节炎关系初探[J]. 新中医, 2002(3): 7-9. |
| [7] |
周沁心, 陈继鑫, 牛朴钰, 等. 基于"筋柔骨正"理论探讨补肾活血法治疗膝骨关节炎[J]. 云南中医学院学报, 2021, 44(4): 97-102. |
| [8] |
LIN G, HUANG H, SUN M, et al. Enhancing retention and permeation of rapamycin for osteoarthritis therapy using a two-stage drug delivery system[J]. Materials Today Bio, 2024, 29: 101279. DOI:10.1016/j.mtbio.2024.101279 |
| [9] |
刘力菠, 卢敏, 邝高艳, 等. 基于网络药理学和分子对接探究补肾活血汤"从虚从瘀从毒"治疗膝骨关节炎的作用机制[J]. 亚太传统医药, 2022, 18(1): 160-166. |
| [10] |
李远栋, 王世坤, 杨东元, 等. 淫羊藿苷防治膝骨性关节炎作用机制的研究进展[J]. 中草药, 2023, 54(8): 2652-2658. |
| [11] |
MOHAMMADZADEH M, ZAREI M, ABBASI H, et al. Promoting osteogenesis and bone regeneration employing icariin-loaded nano-platforms[J]. Journal of Biological Engineering, 2024, 18(1): 29. DOI:10.1186/s13036-024-00425-4 |
| [12] |
LI X, XU Y, LI H, et al. Verification of pain-related neuromodulation mechanisms of icariin in knee osteoarthritis[J]. Biomedicine & Pharmacotherapy, 2021, 144: 112259. |
| [13] |
ZHANG Q, LI T, LI Z, et al. Autocrine activity of extracellular vesicles induced by icariin and its effectiveness in glucocorticoid-induced injury of bone microvascular endothelial cells[J]. Cells, 2022, 11(12): 1921. DOI:10.3390/cells11121921 |
| [14] |
李洋, 李琴. 中医治疗膝骨关节炎研究进展[J]. 中外医学研究, 2022, 20(35): 175-179. |
| [15] |
李鑫, 乔隆, 于冬冬. 基于补肾祛瘀理论探讨膝骨关节炎的病机与治疗[J]. 云南中医中药杂志, 2021, 42(2): 84-88. |
| [16] |
CHEN Y, PAN X, ZHAO J, et al. Icariin alleviates osteoarthritis through PI3K/Akt/mTOR/ULK1 signaling pathway[J]. European Journal of Medical Research, 2022, 27(1): 204. DOI:10.1186/s40001-022-00820-x |
| [17] |
秦丰伟, 黄荷, 焦锋, 等. 淫羊藿苷和骨髓间充质干细胞共育液对兔骨关节炎模型关节液中IL-1、TNF-α、IL-10、MMP-3表达的影响[J]. 实用医学杂志, 2018, 34(17): 2876-2879. |
| [18] |
LI X, LI S, FU X, et al. Apoptotic extracellular vesicles restore homeostasis of the articular microenvironment for the treatment of rheumatoid arthritis[J]. Bioactive Materials, 2024, 35: 564-576. DOI:10.1016/j.bioactmat.2023.11.019 |
| [19] |
BAI L, LIU Y, ZHANG X, et al. Osteoporosis remission via an anti-inflammaging effect by icariin activated autophagy[J]. Biomaterials, 2023, 297: 122125. DOI:10.1016/j.biomaterials.2023.122125 |
| [20] |
史建伟. "补肾活血法"治疗早期膝骨关节炎疗效观察及中医"肾"理论初探[D]. 广州: 广州中医药大学, 2017.
|
| [21] |
李念虎. 补肾活血中药治疗早中期膝骨性关节炎临床观察[J]. 中医正骨, 2006, 18(10): 11-12. |
| [22] |
马浩哲, 黄奎. 补肾活血方对肾虚血瘀证膝关节骨性关节炎患者的疗效及其对血清细胞因子的影响[J]. 世界中医药, 2019, 14(3): 696-699, 704. |
| [23] |
黄涛, 徐传毅, 邹季, 许申明. 活血止痛汤治疗早期骨性关节炎的实验研究[J]. 中医正骨, 1999, 11(5): 3-5. |
| [24] |
DING J, CHEN Y, ZHAO Y J, et al. Acid-sensitive ion channel 1a mediates osteoarthritis chondrocyte senescence by promoting lamin B1 degradation[J]. Biochemical Pharmacology, 2022, 202: 115107. DOI:10.1016/j.bcp.2022.115107 |
| [25] |
MINAMI S, SAKAI S, YAMAMOTO T, et al. FGF21 and autophagy coordinately counteract kidney disease progression during aging and obesity[J]. Autophagy, 2024, 20(3): 489-504. DOI:10.1080/15548627.2023.2259282 |
| [26] |
LI X, ZHANG Z, JIANG W, et al. Dipeptidyl peptidase 4(DPP4) exacerbates osteoarthritis progression in an enzyme-independent manner[J]. Advanced Science, 2025, 12(6): e2410525. DOI:10.1002/advs.202410525 |
| [27] |
LIU Y, XU S, ZHANG H, et al. Stimulation of α7-nAChRs coordinates autophagy and apoptosis signaling in experimental knee osteoarthritis[J]. Cell Death and Disease, 2021, 12(5): 448. DOI:10.1038/s41419-021-03726-4 |
| [28] |
SHU S, WANG H, ZHU J, et al. Reciprocal regulation between ER stress and autophagy in renal tubular fibrosis and apoptosis[J]. Cell Death & Disease, 2021, 12(11): 1016. |
| [29] |
CHEN C, WANG S, WANG N, et al. Icariin inhibits prostate cancer bone metastasis and destruction via suppressing TAM/CCL5-mediated osteoclastogenesis[J]. Phytomedicine, 2023, 120: 155076. DOI:10.1016/j.phymed.2023.155076 |
| [30] |
ZHOU L, POON C C W, WONG K Y, et al. Icariin ameliorates estrogen-deficiency induced bone loss by enhancing IGF-I signaling via its crosstalk with non-genomic ERα signaling[J]. Phytomedicine, 2021, 82: 153413. DOI:10.1016/j.phymed.2020.153413 |
| [31] |
WANG M, WANG L, ZHOU Y, et al. Icariin attenuates renal fibrosis in chronic kidney disease by inhibiting interleukin-1β/transforming growth factor-β-mediated activation of renal fibroblasts[J]. Phytotherapy Research, 2021, 35(11): 6204-6215. DOI:10.1002/ptr.7256 |
| [32] |
HE Y, JIANG H, DU K, et al. Exploring the mechanism of taohong siwu decoction on the treatment of blood deficiency and blood stasis syndrome by gut microbiota combined with metabolomics[J]. Chinese Medicine, 2023, 18(1): 44. DOI:10.1186/s13020-023-00734-8 |
| [33] |
WANG X, ZHANG M, MAO C, et al. Icariin alleviates ferroptosis-related atherosclerosis by promoting autophagy in xo-LDL-induced vascular endothelial cell injury and atherosclerotic mice[J]. Phytotherapy Research, 2023, 37(9): 3951-3963. DOI:10.1002/ptr.7854 |
| [34] |
HU Z, DENG N, LI Y, et al. Buyang huanwu decoction improves energy metabolism disorders after cerebral ischemia-reperfusion by regulating the SIRT1/AMPK signaling pathway to promote glycolysis and the tricarboxylic acid cycle[J]. Chinese Medicine, 2025, 20(1): 108. DOI:10.1186/s13020-025-01163-5 |
| [35] |
BI Z, ZHANG W, YAN X. Anti-inflammatory and immunoregulatory effects of icariin and icaritin[J]. Biomedicine & Pharmacotherapy, 2022, 151: 113180. |
| [36] |
CHEN Y, HU Z, LI Y, et al. Pharmacologically active constituents of buyang huanwu decoction against cerebral ischemia-reperfusion injury and verification of its effects on oxidative stress, energy metabolism, and inflammation[J]. Journal of Ethnopharmacology, 2025, 353(Pt B): 120405. |
| [37] |
LI R, HE T, YANG M, et al. Regulation of bacillus calmette-guérin-induced macrophage autophagy and apoptosis by the AMPK-mTOR-ULK1 pathway[J]. Microbiological Research, 2025, 290: 127952. DOI:10.1016/j.micres.2024.127952 |
| [38] |
LI Z, HUANG Z, ZHANG H, et al. Moderate-intensity exercise alleviates pyroptosis by promoting autophagy in osteoarthritis via the P2X7/AMPK/mTOR axis[J]. Cell Death Discovery, 2021, 7(1): 346. DOI:10.1038/s41420-021-00746-z |
| [39] |
WANG H, WANG L, HU F, et al. Neuregulin-4 attenuates diabetic cardiomyopathy by regulating autophagy via the AMPK/mTOR signalling pathway[J]. Cardiovascular Diabetology, 2022, 21(1): 205. DOI:10.1186/s12933-022-01643-0 |
| [40] |
院一蔚, 叶子丰, 张乐, 等. 淫羊藿苷对lps诱导的滑膜成纤维细胞炎症反应、自噬及纤维化的调控作用[J]. 时珍国医国药, 2025, 36(17): 3234-3239. |
| [41] |
DENG H, LIN J, JIANG Y, et al. Chondroitin sulfate a-selenium nanoparticles protect chondrocytes from T-2 toxin-induced oxidative stress and mitochondrial dysfunction through activating autophagy by the SIRT1-AMPK-FOXO3 pathway[J]. Ecotoxicology and Environmental Safety, 2025, 303: 118797. DOI:10.1016/j.ecoenv.2025.118797 |
| [42] |
KONG X, NING C, LIANG Z, et al. Koumine inhibits IL-1β-induced chondrocyte inflammation and ameliorates extracellular matrix degradation in osteoarthritic cartilage through activation of PINK1/parkin-mediated mitochondrial autophagy[J]. Biomedicine & Pharmacotherapy, 2024, 173: 116273. |
| [43] |
PAN X, SHAN H, BAI J, et al. Four-octyl itaconate improves osteoarthritis by enhancing autophagy in chondrocytes via PI3K/AKT/mTOR signalling pathway inhibition[J]. Communications Biology, 2022, 5(1): 641. DOI:10.1038/s42003-022-03592-6 |
| [44] |
CHENG C, WU Y, HUANG Y, et al. Epigenetic modification and exosome effects on autophagy in osteoarthritis[J]. Biochemical Pharmacology, 2023, 218: 115930. DOI:10.1016/j.bcp.2023.115930 |
| [45] |
QIU M, CHENG L, XU J, et al. Liquiritin reduces chondrocyte apoptosis through P53/PUMA signaling pathway to alleviate osteoarthritis[J]. Life Sciences, 2024, 343: 122536. DOI:10.1016/j.lfs.2024.122536 |
| [46] |
ZHU T, WANG L, WANG L P, et al. Therapeutic targets of neuro-protection and neurorestoration in ischemic stroke: Applications for natural compounds from medicinal herbs[J]. Biomedicine & Pharmacotherapy, 2022, 148: 112719. |
| [47] |
WANG K, YIN C, YE X, et al. A metabolic driven bio-responsive hydrogel loading psoralen for therapy of rheumatoid arthritis[J]. Small, 2023, 19(21): e2207319. DOI:10.1002/smll.202207319 |
| [48] |
刘小刚, 李甜, 张舵. 中药有效成分促进骨髓间充质干细胞分化为软骨细胞的作用与机制[J]. 中国组织工程研究, 2022, 26(1): 119-124. |
| [49] |
LU Q, LIU P, MIAO Z, et al. SIRT1 restoration enhances chondrocyte autophagy in osteoarthritis through PTEN-mediated EGFR ubiquitination[J]. Cell Death Discovery, 2022, 8(1): 203. DOI:10.1038/s41420-022-00896-8 |
| [50] |
CARNEVALE R, NOCELLA C, SCHIAVON S, et al. Beneficial effects of a combination of natural product activators of autophagy on endothelial cells and platelets[J]. British Journal of Pharmacology, 2021, 178(10): 2146-2159. DOI:10.1111/bph.15399 |
| [51] |
WANG Y, WANG C, ZHU Y, et al. Systematic pharmacology and experimental validation revealed the mechanism of bupleurum chinense DC-mediated autophagy in alleviating osteoarthritis[J]. Journal of Ethnopharmacology, 2025, 351: 120042. DOI:10.1016/j.jep.2025.120042 |
| [52] |
HE H, HUANG C, HUANG H, et al. Zn2+-driven metformin conjugated with siRNA attenuates osteoarthritis progression by inhibiting NF-κB signaling and activating autophagy[J]. Biomaterials, 2025, 319: 123210. DOI:10.1016/j.biomaterials.2025.123210 |
| [53] |
BROCKMUELLER A, BUHRMANN C, SHAYAN P, et al. Calebin a modulates inflammatory and autophagy signals for the prevention and treatment of osteoarthritis[J]. Frontiers in Immunology, 2024, 15: 1363947. DOI:10.3389/fimmu.2024.1363947 |
| [54] |
DALMAO-FERNÁNDEZ A, HERMIDA-GÓMEZ T, NOGUEIRA-RECALDE U, et al. Mitochondrial role on cellular apoptosis, autophagy, and senescence during osteoarthritis pathogenesis[J]. Cells, 2024, 13(11): 976. DOI:10.3390/cells13110976 |
| [55] |
CHEN H, CHEN F, HU F, et al. MicroRNA-224-5p nanoparticles balance homeostasis via inhibiting cartilage degeneration and synovial inflammation for synergistic alleviation of osteoarthritis[J]. Acta Biomaterialia, 2023, 167: 401-415. DOI:10.1016/j.actbio.2023.06.010 |
| [56] |
LI X, KHAN I, XIA W, et al. Icariin enhances youth-like features by attenuating the declined gut microbiota in the aged mice[J]. Pharmacological Research, 2021, 168: 105587. DOI:10.1016/j.phrs.2021.105587 |
2. National Clinical Research Center for Chinese Medicine, Tianjin 300381, China;
3. Tianjin University of Traditional Chinese Medicine, Tianjin 301617, China