 2026, Vol. 43
文章信息
- 马梁, 文彬, 邓鑫.
- MA Liang, WEN Bin, DENG Xin.
- 线粒体自噬在慢性乙型肝炎-肝纤维化中作用机制及中医药干预研究进展
- Research progress on the mechanism of mitophagy in chronic hepatitis B-associated liver fibrosis and the intervention of traditional Chinese medicine
- 天津中医药, 2026, 43(9): 1202-1207
- Tianjin Journal of Traditional Chinese Medicine, 2026, 43(9): 1202-1207
- http://dx.doi.org/10.11656/j.issn.1672-1519.2026.09.15
-
文章历史
- 收稿日期: 2026-04-25


引用本文 |


2. 广西中医药大学第二附属医院,南宁 530011;
3. 广西中医药大学基础医学院,南宁 530200
慢性乙型肝炎(CHB)是由乙型肝炎病毒(HBV)持续感染引起、具有高传染性和高发病率,是中国肝纤维化的主要致病因素。流行病学显示,全球约有3亿人感染HBV,显著增加了进展性肝病的发生风险,进而引发肝纤维化、肝硬化及肝细胞癌 [1-2]。线粒体作为真核细胞能量代谢的核心细胞器,对外界刺激高度敏感,极易受损导致功能障碍与细胞稳态失衡。因此,及时清除受损线粒体对维持细胞稳态至关重要。线粒体自噬作为一种选择性自噬过程,可特异性识别并降解受损线粒体 [3]。近年研究发现,HBV通过特异性劫持线粒体自噬机制建立持续感染,恢复其功能则有助于减轻肝纤维化。本文旨在系统阐明HBV感染、线粒体自噬、肝纤维化三者间的分子机制,并综述中医药干预的研究进展,以期为慢性乙型肝炎-肝纤维化的精准治疗提供理论依据,并为中医药现代化研究开辟新视角。
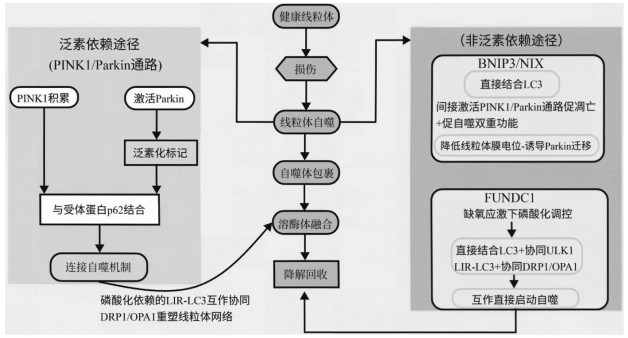
1 线粒体自噬概述线粒体自噬是清除受损线粒体、维持细胞稳态的主要方式,其机制分为两类:一是泛素依赖途径,以磷酸酶张力蛋白诱导激酶1(PINK1)/帕金蛋白(Parkin)通路为代表;二是非泛素依赖途径,由BCL2相互作用蛋白3样(BNIP3L/NIX)、FUN14结构域蛋白1(FUNDC1)等线粒体受体直接介导 [4]。PINK1/Parkin通路研究最为深入,PINK1作为线粒体健康的传感器,在受损线粒体膜上积累并激活Parkin蛋白,活化的Parkin蛋白泛素化线粒体外膜蛋白招募受体蛋白p62,标记受损线粒体以启动自噬降解。BNIP3/NIX通路兼具促凋亡与促自噬的双重功能,NIX不仅可直接与微管相关蛋白1A/1B轻链3(LC3)相互作用,还能通过降低线粒体膜电位促进Parkin蛋白转位至线粒体,进而协同激活PINK1/Parkin通路。FUNDC1则是缺氧应激下线粒体质量控制的关键受体,通过磷酸化依赖的LIR-LC3相互作用直接启动自噬,并协同Unc-51自噬激活激酶1(ULK1)、动力蛋白相关蛋白1(DRP1)/视神经萎缩蛋白1(OPA1)动态重塑线粒体网络。FUNDC1与BNIP3/NIX共同构成的缺氧响应网络,为基于线粒体自噬的疾病治疗提供了新策略 [5-7]。见图 1。
|
| 图 1 线粒体自噬的调控机制 Fig. 1 Regulatory mechanisms of mitophagy |
CHB患者作为HBV的长期宿主,目前临床治疗主要聚焦于抑制或清除HBV DNA[8],但HBV感染引发的线粒体自噬失衡在病程进展中的作用不容忽视。研究表明,HBV可通过激活Drp1促进线粒体裂变,诱导Parkin蛋白向线粒体易位,进而刺激线粒体自噬 [9]。Li等 [10]研究发现,这种被病毒劫持的细胞质量控制机制在HBV感染中呈现出双向作用:一方面,线粒体自噬作为修复程序,有助于清除受损线粒体、维持细胞能量稳态并抑制细胞凋亡;另一方面,被HBV利用后,持续性的线粒体自噬会导致线粒体功能衰竭,加剧炎症反应及DNA损伤,为病毒复制创造庇护所,从而驱动肝纤维化的发生发展。目前,其具体调控机制仍在探索中,这种双向作用反映了病毒与宿主细胞的动态博弈。
2.1 线粒体自噬促进HBV复制、持续感染HBV常通过调控线粒体自噬以建立持续感染。Kim等 [9]和Li等 [10]研究发现,HBV通过诱导PINK1/Parkin通路介导的线粒体自噬保护感染细胞免于凋亡,为病毒持久存在创造前提。Khan等 [11]进一步证实,该通路对维持感染细胞活力至关重要,在HBV感染细胞中沉默Parkin蛋白或Drp1以抑制线粒体自噬后,可引发显著的细胞死亡,此过程虽避免了细胞过早凋亡,却使其在肝内长期滞留,为炎症持续及纤维化发生提供病理基础。乙型肝炎病毒X蛋白(HBx)可通过诱导线粒体损伤激活PINK1/Parkin通路,为病毒复制创造稳定的细胞内环境 [12]。此外,Lucifora等 [13]研究指出HBx不仅可使感染细胞存活,还能协助共价闭合环状DNA(cccDNA)的表观遗传调控,确保HBV持续复制。Wang等 [14]研究表明,HBV利用自噬促进复制的机制在病毒被有效抑制时仍可能持续存在,这解释了部分患者病毒载量降低后仍出现纤维化进展的现象。
2.2 线粒体自噬维持细胞稳态、抑制炎症尽管HBV通过劫持线粒体自噬实现持续感染,但从宿主防御角度看,该过程在维持细胞稳态、抑制肝脏炎症方面仍发挥着关键保护作用。Loureiro等 [15]研究发现,线粒体自噬是构建线粒体弹性网络的关键环节,若该过程受阻会导致线粒体堆积,诱发肝细胞坏死并释放线粒体损伤相关分子模式,进而激活邻近肝细胞、库普弗细胞和常驻巨噬细胞的旁分泌炎症反应,加重肝脏炎症。这表明正常的线粒体自噬是肝脏对抗炎症损伤的天然屏障。此外,宿主细胞也具备相应的防御机制抵抗病毒利用。Yoo等 [16]研究表明,线粒体E3泛素连接酶(MARCH5)能够通过降解HBx蛋白负向调节HBV介导的病理过程,从而减轻HBx引起的线粒体功能损伤及相关炎症反应。
3 线粒体自噬在慢性乙型肝炎-肝纤维化中的作用机制肝纤维化是肝脏慢性炎症持续进展导致肝脏结构发生不可逆破坏的病理过程,常见病因包括乙型或丙型病毒性肝炎、非酒精性脂肪性肝炎、酒精性肝病及代谢性疾病等 [17]。长期HBV感染打破了线粒体自噬平衡,致使宿主细胞质量控制系统由代偿转为失代偿,由此引发的线粒体功能障碍成为连接HBV持续感染与肝纤维化发生的关键病理桥梁。在此过程中,线粒体功能障碍持续激活肝脏炎症形成恶性循环,其构建的炎症微环境驱动肝星状细胞(HSC)活化,最终诱发肝纤维化。线粒体自噬作为调控炎症反应与HSC活化的关键枢纽,发挥着重要作用。
3.1 线粒体自噬在炎症反应的调控作用在CHB向肝纤维化演变早期,线粒体自噬崩溃是诱发肝脏炎症的关键,纠正其失衡成为重要的干预靶点 [18]。肝损伤初期,适度的线粒体自噬可及时清除受损线粒体,阻止活性氧(ROS)积累和促凋亡因子释放。然而,随着损伤持续加重,受损线粒体数量超出自噬清除能力,或因线粒体自噬机制本身受损,导致线粒体质量控制失衡及线粒体功能障碍,加剧细胞死亡和组织损伤,最终诱发纤维化 [19]。有研究也证实了受损线粒体释放线粒体DNA(mtDNA)后激活炎症小体,诱导促炎因子大量分泌,并促进炎症细胞浸润肝组织 [20]。在此机制下,肝组织经历反复炎症坏死后纤维组织增生,逐渐发展为肝纤维化,乃至肝硬化或肝癌 [21]。
3.2 线粒体自噬在肝星状细胞活化的调控作用HSC作为肝纤维化的主要效应细胞,在肝脏再生及炎症反应中发挥关键作用 [22]。Wang等 [23]研究发现,PM2.5可通过激活Drp1介导的线粒体自噬诱导HSC活化及纤维化形成。线粒体自噬失衡易导致ROS大量产生,ROS刺激炎症细胞因子分泌进入肝组织,持续炎症进而激活HSC诱发肝纤维化 [24-25]。Ding等 [26]研究发现,抑制线粒体自噬会进一步增强HSC活化,促进肝纤维化发展。
综上,线粒体自噬在CHB向肝纤维化演进中发挥着重要调控作用。在CHB时期,通过清除受损线粒体阻断ROS累积及炎症小体激活以延缓炎症;而在病程进展期,线粒体自噬功能崩溃加剧了肝细胞的炎症坏死,并诱导HSC活化加速肝纤维化。然而,目前针对线粒体自噬在慢性乙型肝炎-肝纤维化演进中的具体作用机制,仍存在诸多未知。因此,探究线粒体自噬在疾病不同阶段的动态规律,对揭示其作为潜在治疗靶点价值及临床阻断肝纤维化进展提供新的治疗思路。
4 中医药调控线粒体自噬干预慢性乙型肝炎-肝纤维化近年来研究表明中医药可通过调控线粒体自噬有效治疗慢性乙型肝炎-肝纤维化,并深入探讨了其作用机制。中医理论认为,肝纤维化当从“络病”论治。湿热疫毒袭肝,邪毒循经入络,日久壅阻络道,因实致虚致肝络受损,病情顽固难愈,最终演进至肝纤维化。针对其“毒损肝络”的核心病机,运用自拟方芪术颗粒以化瘀通络、扶正解毒,取得了良好的治疗效果 [27]。
4.1 中医药调控炎症-线粒体自噬途径抗肝纤维化炎症状态下,线粒体自噬可通过清除受损线粒体及促炎物质抑制过度的先天免疫反应,有效干预纤维化的进程 [28]。HBV感染导致的肝组织慢性炎症是肝纤维化的主要病因。槲皮素作为天然类黄酮,具有抗氧化、抗炎及抗纤维化等多种药理特性。Wu等 [29]发现槲皮素可显著上调PINK1、Parkin及LC3的表达,增强线粒体自噬并减少ROS积累,从而减轻炎症与凋亡,提示其具有抗肝纤维化潜力 [29]。姜黄素是一种具有抗炎、保护肝脏作用的天然多酚 [30]。研究显示,腺苷酸活化蛋白激酶(AMPK)可直接或经哺乳动物雷帕霉素靶蛋白(mTOR)间接激活ULK1以驱动下游信号启动PINK1/Parkin通路调控线粒体自噬 [31]。姜黄素即通过激活AMPK/mTOR信号通路降低ROS水平并恢复线粒体自噬,最终减轻肝脏炎症、抑制纤维化 [32]。Shang等 [33]研究发现,软肝颗粒通过抑制PINK1/Parkin介导的线粒体自噬途径,减轻肝细胞损伤及炎症因子释放,缓解大鼠肝纤维化。龙胆泻肝汤则通过激活Parkin蛋白信号通路抑制肝纤维化,发挥保肝作用 [34]。此外,在PINK1/Parkin泛素化受损线粒体外膜的基础上,核因子-κB(NF-κB)延迟积累的受体蛋白p62被招募至线粒体表面介导线粒体自噬 [35]。益脉颗粒干预可降低小鼠肝脏内NLRP3炎症小体、半胱氨酸-天冬氨酸酶-1(Caspase-1)、NF-κB及p62蛋白表达,升高PINK1与LC3B,提示其可能通过NF-κB/p62通路促进线粒体自噬以发挥防治肝纤维化的作用 [36]。见表 1。
| 疗法 | 组成 | 第一作者/发表年份 | 作用机制 | 效果 |
| 槲皮素 | 广泛存在于多种可食用植物中的主要类黄酮 | Wu/2024[29] | 上调PINK1、Parkin及LC3等关键蛋白的表达, 增强线粒体的自噬、减少ROS积累 | 减轻炎症反应及肝细胞凋亡, 抗纤维化 |
| 姜黄素 | 源于姜黄, 是一种天然多酚 | Sadeghi/2023[30] Eldken/2025[32] |
激活AMPK/mTOR信号通路, 降低ROS水平, 恢复线粒体自噬 | 减轻肝脏炎症抑制纤维化 |
| 软肝颗粒 | 黄芪、赤芍、白术等药物组成 | Cui/2020[33] | 抑制PINK1/Parkin介导的线粒体自噬, 减轻肝细胞损伤及炎症因子释放 | 减缓肝纤维化 |
| 龙胆泻肝汤 | 龙胆、黄芩、栀子等药物组成 | Deng/2024[34] | 激活Parkin蛋白信号通路 | 保护肝脏 |
| 益脉颗粒 | 黄芪、清半夏、桃仁等药物组成 | 王伟霖/2024[36] | 通过NF-κB/p62通路促进线粒体自噬 | 抑制肝脏炎症反应防治肝纤维化 |
线粒体自噬能通过HSC活化发挥抗肝纤维化的作用 [37]。黄连素(小檗碱)是从中药黄连中分离出来的生物碱,通过上调miR-30a-5p表达靶向抑制自噬相关基因5(ATG5),阻断HSC内的线粒体自噬,促使受损线粒体积累进而触发细胞焦亡,进而抑制HSC活化及减轻肝纤维化 [38]。人参皂苷作为人参的活性成分,通过激活磷脂酰肌醇3-激酶/蛋白激酶B(PI3K/AKT)通路促进下游mTOR活化,下调LC3转化水平以抑制线粒体自噬介导的HSC活化,改善肝病病理损伤并发挥抗纤维化作用 [39]。张文富等 [40]发现,柔肝化纤颗粒能够抑制miR-135a表达,激活FOXO1/PINK1通路促进线粒体自噬,从而抑制HSC活化发挥抗肝纤维化作用。此外,mTOR作为线粒体自噬的关键负调控因子及PI3K/AKT通路的下游效应因子,在肝纤维化中扮演着重要角色。肝爽颗粒通过抑制mTOR通路阻断HSC活化并诱导线粒体自噬激活,显著减少肝组织纤维化形成 [41]。芪甲柔肝汤通过调节PI3K/AKT/mTOR通路,使纤维化小鼠肝组织中异常升高的LC3回落,阻断线粒体自噬介导的HSC活化,发挥抗纤维化疗效 [42]。百合乌药汤通过阻断转化生长因子-β1(TGF-β1)/Smad家族成员2/3(Smad2/3)通路抑制HSC激活,促进线粒体自噬发挥抗炎抗氧化作用,有效控制肝纤维化的目的 [43]。见表 2。
| 疗法 | 组成 | 第一作者/发表年份 | 作用机制 | 效果 |
| 黄连素(小檗碱) | 中药黄连中分离出来的一种生物碱 | Tan/2023[38] | 通过上调miR-30a-5p表达靶向抑制ATG5, 阻断线粒体自噬, 抑制HSC活化 | 减轻肝纤维化 |
| 人参皂苷 | 人参中的活性成分 | Li/2024[39] | 激活PI3K/AKT信号通路, 促进mTOR活化, 下调LC3转化水平, 抑制HSC活化 | 实现抗纤维化 |
| 柔肝化纤颗粒 | 黄芪、牡蛎、鳖甲等药物组成 | 张文富/2024[40] | 抑制miR-135a表达, 激活FOXO1/PINK1通路, 促进线粒体自噬, 抑制HSC活化 | 发挥抗肝纤维化作用 |
| 肝爽颗粒 | 柴胡、党参、丹参等药物组成 | Zeng/2020[41] | 抑制mTOR通路, 诱导线粒体自噬激活, 阻断HSC活化 | 减少肝组织纤维化形成 |
| 芪甲柔肝汤 | 黄芪、桃仁、当归等药物组成 | Li/2025[42] | 调节PI3K/AKT/mTOR通路, 使异常升高的LC3表达回落, 阻断线粒体自噬介导的HSC活化 | 抗肝纤维化 |
| 百合乌药汤 | 百合、乌药、丹参等药物组成 | Chen/2020[43] | 阻断TGF-β1/Smad2/3通路, 促进线粒体自噬, 抑制HSC激活 | 有效控制肝纤维化 |
本文梳理了线粒体自噬在CHB向肝纤维化进展中的病理机制及中医药干预现状。现有研究证实,线粒体自噬在此过程中扮演着双重角色 [10]。HBV利用其避免感染细胞过早凋亡以建立持续感染;而长期的病毒利用导致线粒体自噬失衡,诱发炎症并激活HSC,最终驱动肝纤维化形成。目前,中医药干预前景良好,主要通过中药提取物、中药制剂及中成药调节线粒体自噬、抑制炎症及阻断HSC活化。
然现有研究仍存不足:其一,线粒体自噬在慢性乙型肝炎-肝纤维化病程中呈动态变化,但从生理防御转向病理损伤的具体节点与触发机制尚不明确,最佳临床干预时机有待确定。其二,针对HSC活化中的线粒体自噬调控网络研究相对薄弱,鉴于HSC活化是纤维化形成中的核心作用,深入解析该环节有望成为治疗突破点 [44-45]。其三,现有中药研究多局限于基础实验,虽能证实临床疗效,但其干预线粒体自噬的精确分子靶点及调控网络仍不清楚,亟待系统揭示。
未来应聚焦线粒体自噬在疾病进程中的动态变化规律,深入探究中药通过线粒体自噬治疗肝病的潜在机制,为慢性乙型肝炎-肝纤维化的防治开拓新方向。
| [1] |
DAI Y, FAN H, HU Y, et al. Comparison on different traditional Chinese medicine therapies for chronic hepatitis B liver fibrosis[J]. Frontiers in Pharmacology, 2022, 13: 943063. DOI:10.3389/fphar.2022.943063 |
| [2] |
NEUMANN‐HAEFELIN C, THIMME R. Chronic hepatitis B virus infection: Current and future treatment strategies[J]. Bundesge‐sundheitsblatt, Gesundheitsforschung, Gesundheitsschutz, 2022, 65(2): 238-245. DOI:10.1007/s00103-021-03483-x |
| [3] |
LU Y, LI Z, ZHANG S, et al. Cellular mitophagy: Mechanism, roles in diseases and small molecule pharmacological regulation[J]. Theranostics, 2023, 13(2): 736. DOI:10.7150/thno.79876 |
| [4] |
LIU X, HUSSAIN R, MEHMOOD K, et al. Mitochondrial‐endoplasmic reticulum communication‐mediated oxidative stress and autophagy[J]. BioMed research international, 2022, 2022(1): 6459585. DOI:10.1155/2022/6459585 |
| [5] |
SONG Y, ZHOU Y, ZHOU X. The role of mitophagy in innate immune responses triggered by mitochondrial stress[J]. Cell Communication and signaling, 2020, 18(1): 186. DOI:10.1186/s12964-020-00659-x |
| [6] |
BELOUSOV D M, MIKHAYLENKO E V, SOMASUNDARAM S G, et al. The dawn of mitophagy: What do we know by now?[J]. Current Neuropharmacology, 2021, 19(2): 170-192. |
| [7] |
IORIO R, CELENZA G, PETRICCA S. Mitophagy: Molecular mechanisms, new concepts on parkin activation and the emerging role of AMPK/ULK1 axis[J]. Cells, 2021, 11(1): 30. DOI:10.3390/cells11010030 |
| [8] |
AKBAR S M F, YOSHIDA O, HIASA Y. Immune therapies against chronic hepatitis B[J]. Journal of Gastroenterology, 2022, 57(8): 517-528. DOI:10.1007/s00535-022-01890-8 |
| [9] |
KIM S J, KHAN M, QUAN J, et al. Hepatitis B virus disrupts mitochondrial dynamics: Induces fission and mitophagy to attenuate apoptosis[J]. PLoS Pathogens, 2013, 9(12): e1003722. DOI:10.1371/journal.ppat.1003722 |
| [10] |
LI Y, OU J J. Regulation of mitochondrial metabolism by hepatitis B virus[J]. Viruses, 2023, 15(12): 2359. DOI:10.3390/v15122359 |
| [11] |
KHAN M, IMAM H, SIDDIQUI A. Subversion of cellular autophagy during virus infection: Insights from hepatitis B and hepatitis C viruses[J]. Liver research, 2018, 2(3): 146-156. DOI:10.1016/j.livres.2018.09.002 |
| [12] |
SCHOLLMEIER A, BASIC M, GLITSCHER M, et al. The impact of HBx protein on mitochondrial dynamics and associated signaling pathways strongly depends on the hepatitis B virus genotype[J]. Journal of Virology, 2024, 98(5): e00424-24. |
| [13] |
LUCIFORA J, ARZBERGER S, DURANTEL D, et al. Hepatitis B virus X protein is essential to initiate and maintain virus replica‐ tion after infection[J]. Journal of Hepatology, 2011, 55(5): 996-1003. DOI:10.1016/j.jhep.2011.02.015 |
| [14] |
WANG J, CHEN J, LIU Y, et al. Hepatitis B virus induces autophagy to promote its replication by the axis of miR‐192-3p‐XIAP through NF kappa B signaling[J]. Hepatology, 2019, 69(3): 974-992. DOI:10.1002/hep.30248 |
| [15] |
LOUREIRO D, TOUT I, NARGUET S, et al. Mitochondrial stress in advanced fibrosis and cirrhosis associated with chronic hepatitis B, chronic hepatitis C, or nonalcoholic steatohepatitis[J]. Hepatology, 2023, 77(4): 1348-1365. DOI:10.1002/hep.32731 |
| [16] |
YOO Y S, PARK Y J, LEE H S, et al. Mitochondria ubiquitin ligase, MARCH5 resolves hepatitis B virus X protein aggregates in the liver pathogenesis[J]. Cell Death & Disease, 2019, 10(12): 938. |
| [17] |
BI Y, LIU S, QIN X, et al. FUNDC1 interacts with GPx4 to govern hepatic ferroptosis and fibrotic injury through a mitophagy‐dependent manner[J]. Journal of Advanced Research, 2024, 55: 45-60. DOI:10.1016/j.jare.2023.02.012 |
| [18] |
ROCA SUAREZ A A, TESTONI B, BAUMERT T F, et al. Nucleic acid‐induced signaling in chronic viral liver disease[J]. Frontiers in Immunology, 2021, 11: 624034. DOI:10.3389/fimmu.2020.624034 |
| [19] |
ZHANG X, WANG Y, GUO X, et al. Mitochondrial dysfunction in fibrotic diseases: Research progress and MSC‐exos therapy[J]. Experimental and Molecular Pathology, 2025, 143: 104983. DOI:10.1016/j.yexmp.2025.104983 |
| [20] |
DE GAETANO A, SOLODKA K, ZANINI G, et al. Molecular mechanisms of mtDNA‐mediated inflammation[J]. Cells, 2021, 10(11): 2898. DOI:10.3390/cells10112898 |
| [21] |
CHUAN J, JINQING L I U, RONGHUA L I, et al. Clinicopathologic characteristics of liver inflammation and fibrosis in 310 patients with chronic hepatitis B[J]. Journal of Central South University Medical Sciences, 2023, 48(5): 698-706. |
| [22] |
HORN P, TACKE F. Metabolic reprogramming in liver fibrosis[J]. Cell Metabolism, 2024, 36(7): 1439-1455. DOI:10.1016/j.cmet.2024.05.003 |
| [23] |
WANG Z J, YU H, HAO J J, et al. PM2.5 promotes Drp1‐mediated mitophagy to induce hepatic stellate cell activation and hepatic fibrosis via regulating miR‐411[J]. Experimental Cell Research, 2021, 407(2): 112828. DOI:10.1016/j.yexcr.2021.112828 |
| [24] |
DENG Y, ZHANG Z, YANG H, et al. Mycophenolic acid induces the intestinal epithelial barrier damage through mitochondrial ROS[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022(1): 4195699. DOI:10.1155/2022/4195699 |
| [25] |
WANG T, ZHOU X, KUANG G, et al. Paeoniflorin modulates oxidative stress, inflammation and hepatic stellate cells activation to alleviate CCl4‐induced hepatic fibrosis by upregulation of heme oxygenase‐1 in mice[J]. Journal of Pharmacy and Pharmacology, 2021, 73(3): 338-346. DOI:10.1093/jpp/rgaa042 |
| [26] |
DING Q, XIE X L, WANG M M, et al. The role of the apoptosis-related protein BCL‐B in the regulation of mitophagy in hepatic stellate cells during the regression of liver fibrosis[J]. Experimental & Molecular Medicine, 2019, 51(1): 1-13. |
| [27] |
张若宣, 吕文良, 曹正民, 等. 姚乃礼以"肝络"理论辨治慢性乙型病毒性肝炎肝纤维化[J]. 中医学报, 2020, 35(2): 304-307. |
| [28] |
CUI X, ZHOU Z, TU H, et al. Mitophagy in fibrotic diseases: Molecular mechanisms and therapeutic applications[J]. Frontiers in Physiology, 2024, 15: 1430230. DOI:10.3389/fphys.2024.1430230 |
| [29] |
WU H, WU L, LUO L, et al. Quercetin inhibits mitophagy‐mediated apoptosis and inflammatory response by targeting the PPARγ/PGC‐1α/NF‐κB axis to improve acute liver failure[J]. International Immunopharmacology, 2024, 143: 113444. DOI:10.1016/j.intimp.2024.113444 |
| [30] |
SADEGHI M, DEHNAVI S, ASADIRAD A, et al. Curcumin and chemokines: Mechanism of action and therapeutic potential in inflammatory diseases[J]. Inflammopharmacology, 2023, 31(3): 1069-1093. DOI:10.1007/s10787-023-01136-w |
| [31] |
YANG Y, REID M A, HANSE E A, et al. SAPS3 subunit of protein phosphatase 6 is an AMPK inhibitor and controls metabolic homeostasis upon dietary challenge in male mice[J]. Nature Communications, 2023, 14(1): 1368. DOI:10.1038/s41467-023-36809-1 |
| [32] |
ELDKEN Z H, YOUSSEF O M, KHALIL R M, et al. Curcumin's dual effect on pyroptosis and autophagy in metabolic‐associated fatty liver disease: A potential therapeutic strategy[J]. Scientific Re‐ports, 2025, 15(1): 34309. DOI:10.1038/s41598-025-11135-2 |
| [33] |
SHANG X, YUAN H, DAI L, et al. Anti‐liver fibrosis activity and the potential mode of action of Ruangan Granules: Integrated network pharmacology and metabolomics[J]. Frontiers in Pharmacology, 2022, 12: 754807. DOI:10.3389/fphar.2021.754807 |
| [34] |
DENG J, LONG J, YANG Y, et al. Gentiana decoction inhibits liver fibrosis and the activation of hepatic stellate cells via upregulating the expression of Parkin[J]. Fitoterapia, 2024, 178: 106170. DOI:10.1016/j.fitote.2024.106170 |
| [35] |
ZHONG Z, UMEMURA A, SANCHEZ‐LOPEZ E, et al. NF‐κB restricts inflammasome activation via elimination of damaged mitochondria[J]. Cell, 2016, 164(5): 896-910. DOI:10.1016/j.cell.2015.12.057 |
| [36] |
王伟霖, 王诗瑶, 王钰, 等. 基于NF-κB/p62通路探讨益脉颗粒调控动脉粥样硬化小鼠肝脏线粒体自噬与炎症的分子机制[J]. 辽宁中医药大学学报, 2024, 26(7): 42-47. |
| [37] |
LV T, FAN X, HE C, et al. SLC7A11‐ROS/αKG‐AMPK axis regulates liver inflammation through mitophagy and impairs liver fibro‐ sis and NASH progression[J]. Redox Biology, 2024, 72: 103159. DOI:10.1016/j.redox.2024.103159 |
| [38] |
TAN Y, LI C, ZHOU J, et al. Berberine attenuates liver fibrosis by autophagy inhibition triggering apoptosis via the miR‐30a‐5p/ATG5 axis[J]. Experimental Cell Research, 2023, 427(2): 113600. DOI:10.1016/j.yexcr.2023.113600 |
| [39] |
WANG W, LI K, XIAO W. The pharmacological role of Ginsen‐oside Rg3 in liver diseases: A review on molecular mechanisms[J]. Journal of Ginseng Research, 2024, 48(2): 129-139. DOI:10.1016/j.jgr.2023.11.004 |
| [40] |
张文富, 吴姗姗, 戴铭, 等. 基于miR-135a/FOXO1/PINK1通路探讨柔肝化纤颗粒调控线粒体自噬抑制肝星状细胞活化的机制[J]. 中华中医药学刊, 2024, 42(4): 30-34. |
| [41] |
SHI H, SHI H, REN F, et al. Naringin in Ganshuang Granule suppresses activation of hepatic stellate cells for anti‐fibrosis effect by inhibition of mammalian target of rapamycin[J]. Journal of Cellular and Molecular Medicine, 2017, 21(3): 500-509. DOI:10.1111/jcmm.12994 |
| [42] |
LI G Y, LI B X, SONG H F, et al. The active ingredients and potential mechanism of Qijia Rougan Decoction in autophagy and hepatic stellate cell activation modulation in liver fibrogenesis[J]. Journal of Analytical Methods in Chemistry, 2025, 2025(1): 4646858. DOI:10.1155/jamc/4646858 |
| [43] |
CHEN Y, LI R, HU N, et al. Baihe Wuyao Decoction ameliorates CCl4‐induced chronic liver injury and liver fibrosis in mice through blocking TGF‐β1/Smad2/3 signaling, anti‐inflammation and anti‐oxidation effects[J]. Journal of Ethnopharmacology, 2020, 263: 113227. DOI:10.1016/j.jep.2020.113227 |
| [44] |
YAN M, CUI Y, XIANG Q. Metabolism of hepatic stellate cells in chronic liver diseases: Emerging molecular and therapeutic interventions[J]. Theranostics, 2025, 15(5): 1715-1740. DOI:10.7150/thno.106597 |
| [45] |
CAO B, LI Y Y, LIN M M, et al. Integrated analysis of metabolo‐mic and gut microbiota reveals idiosyncratic drug‐induced liver injury resulting from the combined administration of bavachin and icariside Ⅱ[J]. Acupuncture and Herbal Medicine, 2024, 4(2): 222-233. DOI:10.1097/HM9.0000000000000099 |
2. The Second Affiliated Hospital of Guangxi University of Chinese Medicine, Nanning 530011, China;
3. School of Basic Medicine, Guangxi University of Traditional Chinese Medicine, Nanning 530200, China