 2025, Vol. 44
文章信息
- 张悦, 尚婷, 申茹, 李玉红, 冯宇新
- ZHANG Yue, SHANG Ting, SHEN Ru, LI Yuhong, FENG Yuxin
- NK细胞在脓毒症中的作用及中药调控其功能防治脓毒症的潜力
- The role of NK cells in sepsis and the potential of traditional Chinese medicine to regulate its function in the prevention and treatment of sepsis
- 天津中医药大学学报, 2025, 44(2): 175-184
- Journal of Tianjin University of Traditional Chinese Medicine, 2025, 44(2): 175-184
- http://dx.doi.org/10.11656/j.issn.1673-9043.2025.02.13
-
文章历史
收稿日期: 2024-09-28


脓毒症被定义为宿主对感染反应失调引起的多器官功能障碍(MODS),发病快、死亡率高[1-2]。世界卫生大会和世界卫生组织将脓毒症作为全球卫生优先事项,除了支持性护理(血管加压药、胰岛素输注等)和抗生素治疗外,仍没有一种有效的治疗策略能持续挽救脓毒症患者的生命[3]。脓毒症发病机制复杂,先天免疫反应的失调是脓毒症发生和发展的重要影响因素[4],单核细胞、巨噬细胞、中性粒细胞以及树突状细胞(DC)等在宿主防御和调节炎症方面都发挥着关键作用[5-8]。脓毒症期间宿主反应的特征是同时存在过度炎症和免疫抑制。感染发生后,先天免疫细胞通过模式识别受体(PRRs)识别病原体相关分子模式(PAMPs)来“感知”病原体;损伤相关分子模式(DAMPs)也可以激活PRRs识别PAMPs,导致持续的免疫激活和器官功能障碍[9-10]。
1.1 过度炎症过度炎症通过多种细胞释放促炎介质以及凝血系统、补体系统和血管内皮的激活介导,最终导致DAMPs的释放、器官损伤和功能障碍。脓毒症高炎症期的特点是产生促炎细胞因子,如白介素6(IL-6)、肿瘤坏死因子(TNF-α)和白介素1β(IL-1β),以及趋化因子如趋化因子配体3(CCL3)等,导致细胞因子风暴,阻断或消除这些细胞因子对急性感染的动物模型具有保护作用[11]。脓毒症与凝血系统的强烈激活有关,中性粒细胞和血小板的过度活化形成的中性粒细胞胞外陷阱(NETs)、弥散性血管内凝血(DIC)以及内皮细胞表面完整性的破坏等都会引发器官损伤[12-14]。
1.2 免疫抑制脓毒症早期的过度炎症会导致晚期的免疫抑制:一方面,细胞因子风暴直接诱导各种免疫细胞死亡;另一方面,一些效应细胞在过度激活后功能被耗尽[15]。免疫抑制涉及适应性免疫系统和先天免疫系统,其特征是T细胞、B细胞、NK细胞和DC的凋亡;T细胞的衰竭、调节性T细胞(Treg)和髓源性抑制细胞(MDSCs)群体的扩增;抗原呈递细胞(APC)重编程导致的人类白细胞DR抗原(HLA-DR)表达减少,机体产生促炎细胞因子的能力减弱。
1.3 脓毒症的中医病机中医药学认识免疫的历史悠久,早在《素问·刺法论》就已经提出“正气存内,邪不可干,邪之所凑,其气必虚”,正气代表人体防御、抵抗病邪的能力,正气抗邪外出即相似于免疫系统清除病原微生物[16]。近年来中医药在脓毒症治疗中的优势以及重要性引发了广泛关注,刘清泉教授认为脓毒症是因“正气虚于一时,邪气暴盛而突发”,其基本病机是“正虚毒损、络脉瘀滞”,正气不足,毒邪内蕴,内陷营血,络脉气血运行不畅,导致毒热、瘀血、痰浊内阻,瘀阻脉络,进而使各脏器受邪而损伤,脏腑百骸失于濡养,引发此病症[17]。王今达教授则将脓毒症及其疗法概括为三证三法,即毒热证与清热解毒法;瘀血证与活血化瘀法;急性虚证与扶正固本法[18]。曹书华教授在“三证三法”基础上,提出了“四证四法”,认为腑气不通也可导致脓毒症[19]。毒、热、瘀、虚、腑气不通皆可导致脓毒症的发生。清热解毒、活血化瘀、扶正固本、攻下通气类方剂如黄连解毒汤、血必净注射液、参附注射液、大承气汤等都被报道能有效改善脓毒症[20]。
2 NK细胞自然杀伤细胞是先天免疫系统的重要组成部分,可以分泌细胞因子和趋化因子并具有细胞毒能力[21-22]。NK细胞存在于大多数器官,包括骨髓、肺、淋巴结、外周血、脾脏和肝脏,与主要在骨髓中发育的小鼠NK细胞不同,人类NK细胞在大多数前体和未成熟细胞所在的次级淋巴器官中分化[23-26]。NK细胞在分化过程中表现出显著的表型变化,包括细胞因子受体、黏附分子、趋化受体以及控制其成熟、迁移和效应功能的激活或抑制受体的表达[27-28]。
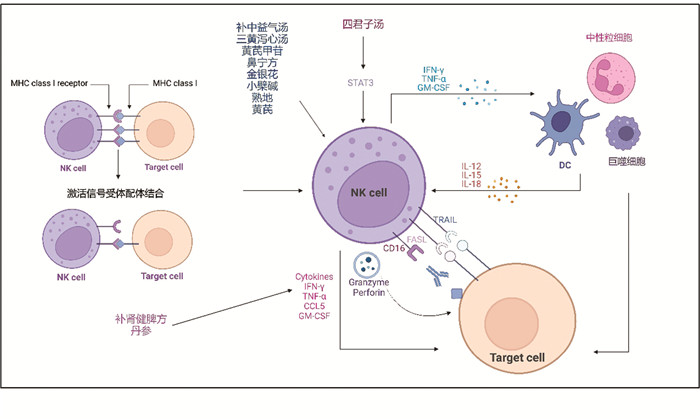
2.1 NK细胞杀伤效应NK细胞可以在未事先致敏的情况下迅速攻击目标细胞,通过生殖系编码的激活和抑制受体信号来识别它们的靶标,这些受体识别主要组织相容性复合体Ⅰ类(MHC-Ⅰ类)分子[29]。当靶细胞上缺乏MHC-Ⅰ时,就会导致NK细胞活化,这一过程被称为自我识别缺失[30-31]。活化的NK细胞具有细胞毒性,能通过胞吐作用直接释放穿孔素(perforin)和颗粒酶(granzymes,Gzms)来消灭靶细胞[32];也能通过表达Fas(CD95)配体(FASL)和肿瘤坏死因子相关诱导凋亡配体(TRAIL)诱导CD95+和TRAIL受体阳性的靶细胞通过内源酶级联反应发生凋亡[33];NK细胞也可以通过膜受体CD16发挥抗体依赖性细胞毒性(ADCC),ADCC指抗体的Fab段结合病毒感染细胞或肿瘤细胞的抗原表位,其Fc段与NK细胞、巨噬细胞等杀伤细胞表面的FcR结合,介导杀伤细胞直接作用于靶细胞[34]。NK细胞也是细胞因子(IFN-γ、TNF-α)、生长因子(GM-CSF)和趋化因子(CCL3)的快速产生者。
2.2 细胞间免疫应答NK细胞还能与中性粒细胞、DC和巨噬细胞等相互作用形成免疫应答[35]。NK细胞和中性粒细胞可以调节彼此的激活、浸润和存活,NK细胞产生的GM-CSF可以激活中性粒细胞,而中性粒细胞作为白介素18(IL-18)的来源之一,与白介素12(IL-12)协同激活NK细胞[36]。在一项关于静脉血栓栓塞的研究中,NK细胞被证明与NETs形成相关,在NK细胞缺失的小鼠中,NETs的数量显著减少,且IFN-γ是NK细胞体外诱导NETs形成所必需的[37]。DC在病毒感染期间维持NK细胞活性,多项研究表明,这两个细胞群在相互作用后会发生相关的功能串扰,在NK/DC相互作用时,IL-12和白介素15(IL-15)起关键作用,它们是NK细胞效应功能的有效诱导剂,DCs分泌IL-12有效促进NK细胞产生IFN-γ,而IL-15主要参与刺激NK细胞增殖和存活[38]。巨噬细胞也能分泌IL-12、IL-15等刺激NK细胞的细胞毒性,活化的NK细胞分泌大量IFN-γ、TNF-α、GM-CSF等细胞因子,进而激活巨噬细胞分泌IL-12/15,形成一个正反馈回路[39]。
2.3 中药调控NK细胞相关报道中药可以有效增强机体免疫功能,多项研究表明中药单体及方剂具有调控NK细胞的作用。芡茎多糖可以促进CD4+T、CD8+T、NK细胞的浸润,通过Caspase3凋亡通路诱导小鼠肺癌细胞凋亡[40]。四君子汤能通过降低PD-1/PD-L1表达并调控STAT3信号干预IFN-γ分泌从而提升NK细胞活性,抑制结肠癌细胞的生长[41]。健脾补肾方可以抑制脾脏组织细胞凋亡,减轻辐射所致的小鼠脾脏结构损伤,抑制TNF-α的过度释放,提高IFN-γ、白介素-2(IL-2)分泌水平,改善其免疫功能损伤[42]。补中益气汤可拮抗环磷酰胺导致的免疫抑制,增强NK细胞的免疫功能[43]。补肾健脾方可通过上调NK细胞数量,促进IL-12分泌,进而促进IFN-γ的合成与分泌,从而恢复乙型肝炎病毒感染者外周血单个核细胞(PBMC)的免疫功能[44]。由黄芪、党参、玉竹等组成的药食两用药膳方可显著提高大鼠、小鼠的免疫力,对细胞免疫功能、体液免疫功能、单核-巨噬细胞吞噬功能、NK细胞活性均有显著提高[45]。中药鼻宁方纱条填塞鼻腔可以有效缓解患者变应性鼻炎相关症状,降低外周血中CD8+水平,升高CD4+、CD4+/CD8+、NK细胞等水平,表明其也可改善变应性鼻炎患儿的免疫功能[46]。滋阴药熟地可促进辐射后IFN-γ分泌性T和NK细胞修复,减少辐射后的肿瘤转移风险[47]。
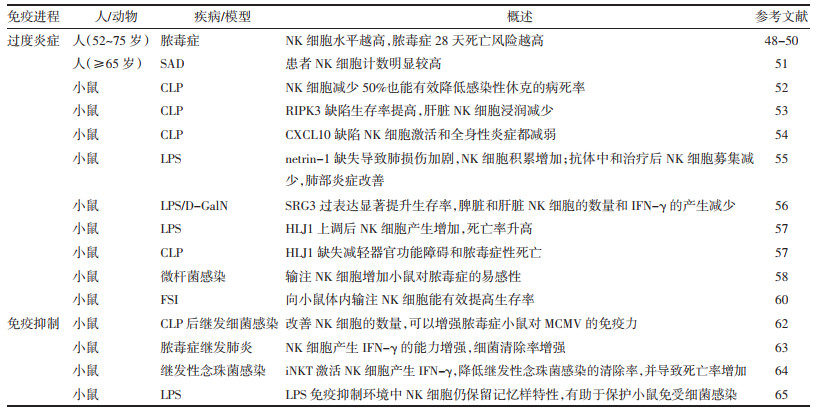
3 NK细胞在脓毒症进程中的作用 3.1 在过度炎症中的作用脓毒症28 d病死率与NK细胞计数密切相关[48]。有研究团队探究血液中早期NK细胞计数与严重脓毒症患者死亡率的关系,结果表明第1天NK细胞计数与28天死亡风险增加相关,第1天死亡患者的NK细胞水平明显升高[49]。未存活的患者比存活的患者表现出更少的NK细胞消耗[50]。脓毒症相关谵妄(SAD)在老年患者中普遍存在,被认为是与脓毒症期间中枢神经系统炎症反应增加相关的脑功能障碍,研究人员发现与年龄匹配的非SAD患者相比,老年SAD患者的淋巴细胞和NK细胞计数更高[51]。
有研究表明在盲肠结扎穿孔(CLP)建立的脓毒症小鼠模型中,不同程度的NK细胞缺失都对脓毒症生存率有显著的提高,NK细胞减少50%也能有效降低感染性休克的死亡率,缺乏NK细胞的CLP小鼠12小时血清中IFN-γ和IL-6蛋白水平显著降低,表明NK细胞依赖的促炎细胞因子反应会提高CLP小鼠的致死率[52]。受体相互作用蛋白激酶3(RIPK3)是丝氨酸/苏氨酸蛋白激酶家族的成员,被证明是TNF-α诱导的细胞凋亡和坏死之间的分子开关,RIPK3缺陷延长了CLP小鼠的存活时间,并降低了全身促炎细胞因子和器官损伤标志物的水平,同时也减少了肝脏中的NK细胞的浸润[53]。CXCL10也被称为干扰素诱导蛋白10(IP-10),多种细胞类型如单核细胞、内皮细胞和成纤维细胞在响应IFN-γ时可分泌IP-10,在CLP模型中,CXCL10缺陷小鼠的NK细胞激活和全身性炎症减弱,腹腔内NK细胞早期激活标志物CD69的表达和全身细胞因子的产生减少[54]。
netrin-1是一种具有免疫调节作用的神经元引导蛋白,netrin-1缺失会导致LPS诱导的小鼠肺损伤结果恶化,并且在netrin-1缺失小鼠中观察到NK细胞积累增加,当netrin-1缺失小鼠接受抗体中和治疗时,NK细胞募集减少,肺部炎症改善[55]。SRG3是一种染色质重塑因子,可以通过控制染色质结构和DNA对转录因子的可及性来调节基因表达,在LPS/D-GalN诱导的急性肝损伤中,SRG3过表达显著提升生存率,与野生鼠(Wild Type,WT)相比,脾脏和肝脏中NK细胞的数量和IFN-γ的产生显著减少[56]。人肝脏DnaJ样蛋白(HLJ1)是热休克蛋白40家族(HSP40)的成员,热休克蛋白(HSPs)可以在细胞应激条件下上调,如氧化应激、缺氧、发热和炎症,它们作为分子伴侣可以维持细胞质蛋白的功能,IL-12可以引发NK细胞产生IFN-γ,LPS诱导的HLJ1上调可以增强巨噬细胞中IL-12的产生和分泌,从而导致NK细胞产生的IFN-γ上调,并导致内毒素诱导的死亡;在CLP模型中,HLJ1缺失可以减轻器官功能障碍和脓毒症性死亡[57]。GzmA缺失可以显著保护小鼠免受微杆菌感染期间的脓毒症,类似的保护作用发生在NK细胞耗竭后,NK细胞从WT小鼠转移到GzmA缺失小鼠,增强了GzmA缺失小鼠对脓毒症与WT小鼠相当的易感性[58]。并且在CLP诱导的脓毒症小鼠模型中,也得出相同的结论[59]。
以上诸多研究直接或间接表明了NK细胞在脓毒症过度炎症中的负面作用,不同脓毒症模型中NK细胞数量的减少以及杀伤能力的减弱,对脓毒症病死率及器官功能障碍有不同程度的缓解。然而,在腹腔注射粪便溶液(FSI)导致的脓毒症模型中,NK细胞可以阻断炎症并增加内皮完整,向小鼠体内输注NK细胞能有效提高生存率[60]。
3.2 在免疫抑制中的作用NK细胞的表型变化和功能受损可能是脓毒症期间免疫抑制的根本原因之一,脓毒症免疫抑制期间CD3-CD56+NK细胞簇分化减少、NK激活受体向抑制性受体转变以及脓毒症患者细胞因子产生受损,NK细胞毒性显著降低[61]。免疫麻痹是免疫抑制状态的加深,在CLP诱导的脓毒症免疫麻痹早期,NK细胞数量下降,其细胞效应能力、相关蛋白表达、下游信号通路接连受损,免疫突触的形成减少,最终导致免疫功能受损,改善NK细胞的数量,可以增强对小鼠巨细胞病毒(MCMV)的免疫力[62]。
NK细胞是免疫治疗的良好靶点,可以调节脓毒症后的免疫系统。继发性肺炎期间,用IL-12治疗小鼠可以恢复NK细胞产生IFN-γ的能力,从而增强细菌清除率[63]。IFN-γ通常有助于微生物的清除,但临床脓毒症早期血浆IFN-γ的增加与念珠菌继发感染的发生有关,体内恒定自然杀伤T细胞(iNKT)激活NK细胞中的mTORC1产生IFN-γ,会加强巨噬细胞的吞噬能力,降低继发性念珠菌感染的清除率,并导致死亡率增加,内毒素血症后抗体阻断IFN-γ可改善继发性念珠菌血症的存活率[64]。LPS诱导的全身性炎症会导致记忆样NK细胞产生,记忆样NK细胞在转移到WT小鼠体内后,有助于抵抗细菌感染,尽管系统性炎症后的免疫环境受到抑制,但NK细胞可以保留染色质水平编码的记忆样特性,从而保护小鼠免受细菌感染[65]。
4 基于NK细胞免疫治疗的相关报道NK细胞在脓毒症和感染性休克的发病机制中起着至关重要的作用,通过免疫调节或免疫治疗的方法靶向NK细胞可能为治疗脓毒症提供一种新的途径。有研究表明,通过给予淋巴增殖性细胞因子可以恢复淋巴细胞数量[66-67]。IL-2已被证明可以增加NK细胞的数量并增强NK激活受体功能[68]。IL-2c复合物可以改善CLP后NK细胞的数量,从而增强对MCMV激发感染的免疫力[62]。IL-15在包括白细胞在内的大量细胞类型中表达,对NK细胞、自然杀伤T细胞(NKT)和记忆性CD8+ T细胞的发育和功能至关重要。IL-15,特别是由IL-15及其高亲和力受体α组成的强效IL-15超级激动剂(SA),正在被研究作为癌症的免疫治疗剂[69]。而在小鼠脓毒症模型中,Inoue等人证明,IL-15 SA治疗可以阻止NK细胞、DC和CD8+T细胞的凋亡,并提高腹部和肺部脓毒症的存活率[70]。但也有研究得出相反的结论,Guo等人报道IL-15缺陷小鼠在内源性休克和腹部脓毒症中的死亡率降低[71],在该研究中,用IL-15 SA治疗IL-15敲除小鼠激活NK细胞,加重了脓毒症的严重程度。这些研究结果之间的差异可能是由给药方案、疾病严重程度和所研究小鼠品系的不同导致。
NK细胞是IFN-γ的主要来源之一,同时IFN-γ的产生也是NK细胞清除病原体的重要途径,诱导NK细胞产生IFN-γ或者直接将IFN-γ应用于脓毒症,都被报道可以帮助清除病原体,从而减少损伤。因此,IFN-γ可能是脓毒症潜在的免疫调节疗法。感染期间,IL-12具有调节先天性免疫反应的能力,并且可以决定适应性免疫反应的类型和持续时间,还能诱导NK、T细胞、DC和巨噬细胞产生IFN-γ[72]。鉴于HLJ1在介导IL-12/IFN-γ轴依赖性脓毒症严重程度中起重要作用,HLJ1也有望成为新型免疫调节疗法的分子靶标[57]。Yu等人通过将重组IFN-γ应用于CLP脓毒症小鼠,表明IFN-γ治疗可减轻脓毒症诱导的T细胞功能障碍。单核细胞和巨噬细胞对于脓毒症期间的微生物消除至关重要,IFN-γ可以上调其关键活化因子HLA-DR的表达[73-74]。白介素-33(IL-33)对多种免疫细胞具有广泛作用,可以通过促进γδT细胞和NK细胞来增强IFN-γ的产生,有报道称IL-33对脓毒症具有保护作用,在CLP后1和6 h给予重组IL-33,可增强细菌清除率,提高脓毒症小鼠的存活率,但后期连续使用IL-33治疗却不利于脓毒症[75]。糖酵解增加、mTORC1信号转导和氧磷脂在IFN-γ的产生中起着重要作用,在脓毒症免疫抑制期间刺激mTORC1信号和NK细胞间的糖酵解可能有助于克服免疫抑制和继发感染的易感性[64]。
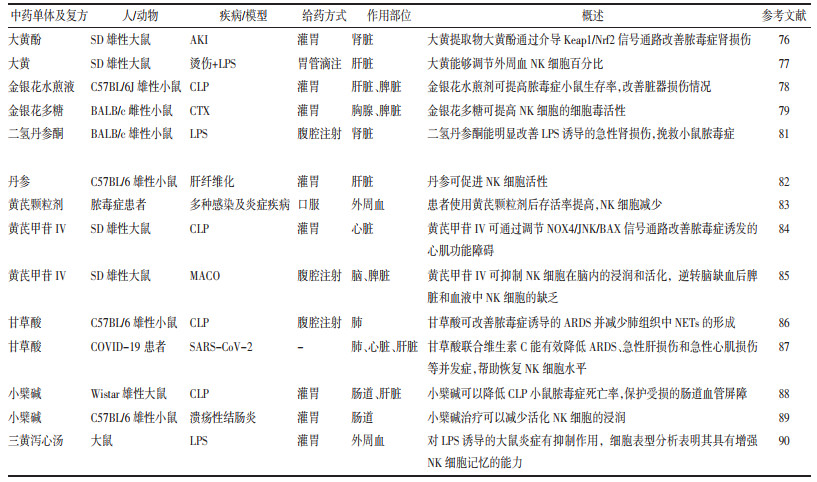
5 中药调控NK细胞相关功能防治脓毒症的潜力中药具有多成分、多途径、多靶点的特点,多种中药制剂可以通过抑制炎症反应、减少氧化应激、增强免疫力和维持细胞稳态来缓解脓毒症引起的器官功能障碍,其中很多药物及单体成分对NK细胞有调控作用,因此,中药调控NK细胞相关功能可能为防治脓毒症提供一种新思路。大黄具有抗炎、抗菌、通便和抗癌等药理作用,大黄提取物大黄酚能有效改善脓毒症大鼠肾损伤[76],在烫伤后腹腔注射LPS的脓毒症大鼠模型中,大黄能够调节外周血NK细胞百分比[77]。金银花具有疏风解表、清热解毒的功效,金银花水煎剂可提高脓毒症小鼠生存率,改善脏器损伤情况[78],在一项关于金银花多糖免疫调节作用的研究中,金银花各组分可以增强免疫功能,改善淋巴器官胸腺和脾脏的萎缩,提高巨噬细胞的吞噬功能、血清中免疫球蛋白水平和NK细胞的细胞毒活性,增加细胞因子的分泌,有效抑制环磷酰胺(CTX)诱导的免疫功能下降[79]。
血必净注射液由活血化瘀类中药红花、赤芍、川芎、丹参和当归的提取物组成,能有效防止脓毒症的发生和发展[80]。丹参中的二氢丹参酮能明显改善LPS诱导的急性肾损伤,挽救小鼠脓毒症[81],在另一项研究中,丹参可以促进NK细胞的活性,上调NKG2D和IFN-γ的表达,逆转NK细胞抑制剂对NK细胞的损耗[82]。黄芪能改善脓毒症患者的免疫失衡,提高患者存活率,患者使用黄芪颗粒剂后,T淋巴细胞、CD4+/CD8+B淋巴细胞增加,血小板活化因子和NK细胞减少[83]。黄芪甲苷是黄芪的主要生物活性成分,具有免疫调节和神经保护作用,也被报道能有效改善脓毒症[84],在缺血性脑卒中模型中,黄芪甲苷对脑和外周NK细胞有明显作用,可抑制NK细胞在脑内的浸润和活化,逆转脑缺血后脾脏和血液中NK细胞的缺乏[85]。传统中药甘草具有抗炎、抗病毒和免疫调节等作用,其主要活性成分甘草酸可改善脓毒症诱导的急性呼吸窘迫综合征(ARDS)并减少肺组织中NETs的形成[86],在一项关于甘草酸联合维生素C治疗住院COVID-19患者的回顾性观察研究中,这两者联用能有效降低ARDS、急性肝损伤和急性心肌损伤等并发症的发生率,且联合治疗可以调节免疫功能,帮助恢复NK细胞和降低血浆sIL-2R水平[87]。小檗碱可以降低CLP小鼠脓毒症死亡率,保护受损的肠道血管屏障[88],在溃疡性结肠炎中,小檗碱治疗可以减少活化NK细胞的浸润,减轻肠道炎症,维持肠道屏障功能,改善组织纤维化[89]。三黄泻心汤是一种含有小檗碱、黄酮和蒽醌衍生物等化合物的中药解毒汤剂,具有清火解毒、化痰止血等功效,对LPS诱导的大鼠炎症有抑制作用,细胞表型分析表明其具有增强外周血淋巴细胞和NK细胞记忆的能力[90]。
|
| 图 1 NK细胞活化及中药调控其相关功能 |
脓毒症发病机制复杂,涉及全身炎症反应、免疫功能障碍、凝血功能异常、组织损伤以及宿主对不同病原微生物及其毒素的异常反应等多个方面,脓毒症病程变化必然伴随着免疫细胞不同的功能特性,且NK细胞分布较广,我们对不同组织器官的NK细胞在脓毒症损伤中表型和功能的变化,以及它们如何反过来影响脓毒症病理生理学的认识仍然有限。同时,NK细胞与巨噬细胞、DC相互作用的免疫应答如何影响脓毒症也值得不断探索。现有的数据在对NK细胞的全面定量和定性评估方面还很有限,阐明NK细胞在脓毒症进程中的作用,有助于更加全面地理解脓毒症。
目前已经有不少关于NK细胞在脓毒症中作用的研究,但有些结果产生了矛盾,这可能是脓毒症病程的不同导致,且动物模型始终与人类存在差异。因此,除了继续在动物模型系统探究NK细胞在脓毒症中的作用,还需要大量的临床监测数据。尽管靶向NK细胞治疗脓毒症的研究较少,但是随着NK细胞在肿瘤和癌症免疫治疗领域研究的深入以及对NK细胞在脓毒症中反应机制了解的扩大,靶向NK细胞进行免疫调节或者免疫治疗可能为脓毒症的治疗提供一种新的途径。中医药学有着悠久的历史,凝聚着深邃的哲学智慧和中华民族几千年健康养生的理念和实践,随着对中药研究的不断深入,一些复方和单体能有效改善脓毒症,且这些药物也具有调控NK细胞的能力,因此中药可能具备调控NK细胞从而防治脓毒症的潜力,但是这些药物是否直接影响NK细胞改善脓毒症仍需深入研究。
| [1] |
CECCONI M, EVANS L, LEVY M, et al. Sepsis and septic shock[J]. The Lancet, 2018, 392: 75-87. DOI:10.1016/S0140-6736(18)30696-2 |
| [2] |
SINGER M, DEUTSCHMAN C S, SEYMOUR C W, et al. The third international consensus definitions for sepsis and septic shock(sepsis-3)[J]. Jama-journal of The American Medical Association, 2016, 315(8): 801-810. DOI:10.1001/jama.2016.0287 |
| [3] |
ASNER S A, DESGRANGES F, SCHRIJVER I T, et al. Impact of the timeliness of antibiotic therapy on the outcome of patients with sepsis and septic shock[J]. Journal of Infection, 2021, 82(5): 125-134. DOI:10.1016/j.jinf.2021.03.003 |
| [4] |
NEDEVA C, MENASSA J, DUAN M B, et al. TREML4 receptor regulates inflammation and innate immune cell death during polymicrobial sepsis[J]. Nature Immunology, 2020, 21(12): 1585-1596. DOI:10.1038/s41590-020-0789-z |
| [5] |
MARTÍNEZ-GARCÍA J J, MARTÍNEZ-BANACLOCHA H, ANGOSTO-BAZARRA D, et al. P2X7 receptor induces mitochondrial failure in monocytes and compromises NLRP3 inflammasome activation during sepsis[J]. Nature Communications, 2019, 10(1): 2711. DOI:10.1038/s41467-019-10626-x |
| [6] |
NA Y R, JE S, SEOK S H. Metabolic features of macrophages in inflammatory diseases and cancer[J]. Cancer Letters, 2018, 413: 46-58. DOI:10.1016/j.canlet.2017.10.044 |
| [7] |
JIAO Y, ZHANG T, ZHANG C M, et al. Exosomal miR-30d-5p of neutrophils induces M1 macrophage polarization and primes macrophage pyroptosis in sepsis-related acute lung injury[J]. Critical Care, 2021, 25(1): 356. DOI:10.1186/s13054-021-03775-3 |
| [8] |
BABIC Z M, ZUNIC F Z, PANTIC J M, et al. IL-33 receptor(ST2) deficiency downregulates myeloid precursors, inflammatory NK and dendritic cells in early phase of sepsis[J]. Journal of Biomedical Science, 2018, 25(1): 56. DOI:10.1186/s12929-018-0455-z |
| [9] |
CHAN J K, ROTH J, OPPENHEIM J J, et al. Alarmins: Awaiting a clinical response[J]. Journal of Clinical Investigation, 2012, 122(8): 2711-2719. DOI:10.1172/JCI62423 |
| [10] |
DEUTSCHMAN C S, TRACEY K J. Sepsis: Current dogma and new perspectives[J]. Immunity, 2014, 40(4): 463-475. DOI:10.1016/j.immuni.2014.04.001 |
| [11] |
WIERSINGA W J, LEOPOLD S J, CRANENDONK D R, et al. Host innate immune responses to sepsis[J]. Virulence, 2014, 5(1): 36-44. DOI:10.4161/viru.25436 |
| [12] |
HARMON M B A, HEIJNEN N F L, DE BRUIN S, et al. Induced normothermia ameliorates the procoagulant host response in human endotoxaemia[J]. British Journal of Anaesthesia, 2021, 126(6): 1111-1118. DOI:10.1016/j.bja.2021.02.033 |
| [13] |
ZHANG H, ZHOU Y L, QU M D, et al. Tissue factor-enriched neutrophil extracellular traps promote immunothrombosis and disease progression in sepsis-induced lung injury[J]. Frontiers in Cellular and Infection Microbiology, 2021, 11: 677902. DOI:10.3389/fcimb.2021.677902 |
| [14] |
JOFFRE J, HELLMAN J, INCE C, et al. Endothelial responses in sepsis[J]. American Journal of Respiratory and Critical Care Medicine, 2020, 202(3): 361-370. DOI:10.1164/rccm.201910-1911TR |
| [15] |
LIU D, HUANG S Y, SUN J H, et al. Sepsis-induced immunosuppression: Mechanisms, diagnosis and current treatment options[J]. Military Medical Research, 2022, 9(1): 56. DOI:10.1186/s40779-022-00422-y |
| [16] |
郭净, 王菊勇, 刘忠达. 中医药与免疫的思考[J]. 中华中医药学刊, 2013, 31(9): 1982-1984. |
| [17] |
赵红芳, 江其敏, 刘清泉. 刘清泉教授应用中医药治疗脓毒症的临床经验[J]. 中国中医急症, 2017, 26(9): 1563-1565. |
| [18] |
王今达, 李志军, 李银平. 从"三证三法"辨证论治脓毒症[J]. 中国危重病急救医学, 2006, 18(11): 643-644. |
| [19] |
曹书华, 王今达, 李银平. 从"菌毒并治"到"四证四法"——关于中西医结合治疗多器官功能障碍综合征辨证思路的深入与完善[J]. 中国危重病急救医学, 2005, 17(11): 7-9. |
| [20] |
李建洪, 龚瑞莹, 吕锐萍, 等. 脓毒症的中医药治疗及研究概况[J]. 中国中医急症, 2021, 30(1): 185-188. |
| [21] |
SHIMASAKI N, JAIN A, CAMPANA D. NK cells for cancer immunotherapy[J]. Nature Reviews Drug Discovery, 2020, 19(3): 200-218. DOI:10.1038/s41573-019-0052-1 |
| [22] |
CRINIER A, NARNI-MANCINELLI E, UGOLINI S, et al. SnapShot: Natural killer cells[J]. Cell, 2020, 180(6): 1280-1280.e1. DOI:10.1016/j.cell.2020.02.029 |
| [23] |
YANG C, SIEBERT J R, BURNS R, et al. Heterogeneity of human bone marrow and blood natural killer cells defined by single-cell transcriptome[J]. Nature Communications, 2019, 10(1): 3931. DOI:10.1038/s41467-019-11947-7 |
| [24] |
YU J H, FREUD A G, CALIGIURI M A. Location and cellular stages of natural killer cell development[J]. Trends in Immunology, 2013, 34(12): 573-582. DOI:10.1016/j.it.2013.07.005 |
| [25] |
BAI L, VIENNE M, TANG L, et al. Liver type 1 innate lymphoid cells develop locally via an interferon-γ-dependent loop[J]. Science, 2021, 371(6536): eaba4177. DOI:10.1126/science.aba4177 |
| [26] |
FREUD A G, YU J H, CALIGIURI M A. Human natural killer cell development in secondary lymphoid tissues[J]. Seminars in Immunology, 2014, 26(2): 132-137. DOI:10.1016/j.smim.2014.02.008 |
| [27] |
MONTALDO E, VACCA P, MORETTA L, et al. Development of human natural killer cells and other innate lymphoid cells[J]. Seminars in Immunology, 2014, 26(2): 107-113. DOI:10.1016/j.smim.2014.01.006 |
| [28] |
SCOVILLE S D, FREUD A G, CALIGIURI M A. Cellular pathways in the development of human and murine innate lymphoid cells[J]. Current Opinion in Immunology, 2019, 56: 100-106. DOI:10.1016/j.coi.2018.11.003 |
| [29] |
SCOVILLE S D, FREUD A G, CALIGIURI M A. Modeling human natural killer cell development in the era of innate lymphoid cells[J]. Frontiers in Immunology, 2017, 8: 360. |
| [30] |
KÄRRE K, LJUNGGREN H G, PIONTEK G, et al. Selective rejection of H-2-deficient lymphoma variants suggests alternative immune defence strategy[J]. Nature, 1986, 319(6055): 675-678. DOI:10.1038/319675a0 |
| [31] |
BIX M, LIAO N S, ZIJLSTRA M, et al. Rejection of class Ⅰ MHC-deficient haemopoietic cells by irradiated MHC-matched mice[J]. Nature, 1991, 349(6307): 329-331. DOI:10.1038/349329a0 |
| [32] |
VOSKOBOINIK I, WHISSTOCK J C, TRAPANI J A. Perforin and granzymes: Function, dysfunction and human pathology[J]. Nature Reviews Immunology, 2015, 15(6): 388-400. DOI:10.1038/nri3839 |
| [33] |
ZAMAI L, AHMAD M, BENNETT I M, et al. Natural killer(NK) cell-mediated cytotoxicity: Differential use of TRAIL and fas ligand by immature and mature primary human NK cells[J]. Journal of Experimental Medicine, 1998, 188(12): 2375-2380. DOI:10.1084/jem.188.12.2375 |
| [34] |
YILMAZ A, CUI H W, CALIGIURI M A, et al. Chimeric antigen receptor-engineered natural killer cells for cancer immunotherapy[J]. Journal of Hematology & Oncology, 2020, 13(1): 168. |
| [35] |
VIVIER E, RAULET D H, MORETTA A, et al. Innate or adaptive immunity? The example of natural killer cells[J]. Science, 2011, 331(6013): 44-49. DOI:10.1126/science.1198687 |
| [36] |
JENSEN K N, OMARSDOTTIR S Y, REINHARDSDOTTIR M S, et al. Docosahexaenoic acid modulates NK cell effects on neutrophils and their crosstalk[J]. Frontiers in Immunology, 2020, 11: 570380. DOI:10.3389/fimmu.2020.570380 |
| [37] |
BERTIN F R, RYS R N, MATHIEU C, et al. Natural killer cells induce neutrophil extracellular trap formation in venous thrombosis[J]. Journal of Thrombosis and Haemostasis, 2019, 17(2): 403-414. DOI:10.1111/jth.14339 |
| [38] |
BORG C, JALIL A, LADERACH D, et al. NK cell activation by dendritic cells(DCs) requires the formation of a synapse leading to IL-12 polarization in DCs[J]. Blood, 2004, 104(10): 3267-3275. DOI:10.1182/blood-2004-01-0380 |
| [39] |
ZHOU J P, ZHANG S L, GUO C Y. Crosstalk between macrophages and natural killer cells in the tumor microenvironment[J]. International Immunopharmacology, 2021, 101(Pt B): 108374. |
| [40] |
闵翼, 张曦尧, 向东阳, 等. 芡茎多糖通过诱导CD4+T、CD8+T和NK细胞的浸润促进小鼠肺癌LLC细胞凋亡[J]. 南京中医药大学学报, 2023, 39(07): 637-644. |
| [41] |
朱月伊, 宋运来, 石晓兰. 基于PD-1/PD-L1表达影响探讨四君子汤对NK细胞及结肠癌作用的研究[J]. 中国免疫学杂志, 2021, 37(3): 295-300, 306. |
| [42] |
肖静静, 何东初, 张勇, 等. 健脾补肾方对辐射损伤小鼠脾脏免疫功能损伤的治疗效应[J]. 中华中医药杂志, 2023, 38(6): 2538-2543. |
| [43] |
王思远, 张菁, 袁国栋. 补中益气汤对免疫抑制小鼠NK细胞调控作用研究[J]. 辽宁中医药大学学报, 2024, 26(9): 37-41. |
| [44] |
刘影, 陈旭东, 邵华卿, 等. 补肾健脾方对乙肝病毒感染者免疫功能的影响[J]. 中药药理与临床, 2024, 40(6): 32-37. |
| [45] |
刘鑫, 欧阳竞锋, 孙梦菲, 等. 道地药食两用中药配方(药膳方)提高免疫力的实验研究[J]. 国医论坛, 2023, 38(4): 64-68. |
| [46] |
杨建莲, 张晨, 李慧佳, 等. 中药鼻宁方纱条填塞鼻腔法治疗变应性鼻炎患儿临床研究[J]. 新中医, 2023, 55(5): 191-196. |
| [47] |
张珊, 张玥, 陈祥静, 等. 低剂量X线辐射损伤后IFN-γ分泌性T、NK细胞修复能力及熟地的保护作用[J]. 中国药理学通报, 2022, 38(6): 887-893. |
| [48] |
HU Z H, DONG D J, PENG F, et al. Combination of NK and other immune markers at early phase stratify the risk of sepsis patients: A retrospective study[J]. Journal of Inflammation Research, 2023, 16: 4725-4732. DOI:10.2147/JIR.S426828 |
| [49] |
ANDALUZ-OJEDA D, IGLESIAS V, BOBILLO F, et al. Early natural killer cell counts in blood predict mortality in severe sepsis[J]. Critical Care, 2011, 15(5): R243. DOI:10.1186/cc10501 |
| [50] |
DE PABLO R, MONSERRAT J, TORRIJOS C, et al. The predictive role of early activation of natural killer cells in septic shock[J]. Critical Care, 2012, 16(2): 413. DOI:10.1186/cc11204 |
| [51] |
LI D K, ZHANG J H, BAI G X, et al. Lymphocyte and NK cell counts can predict sepsis-associated delirium in elderly patients[J]. Frontiers in Aging Neuroscience, 2021, 12: 621298. DOI:10.3389/fnagi.2020.621298 |
| [52] |
SATHE P, DELCONTE R B, SOUZA-FONSECA-GUIMARAES F, et al. Innate immunodeficiency following genetic ablation of Mcll in natural killer cells[J]. Nature Communications, 2014, 5: 4539. DOI:10.1038/ncomms5539 |
| [53] |
SHARMA A, MATSUO S, YANG W L, et al. Receptor-interacting protein kinase 3 deficiency inhibits immune cell infiltration and attenuates organ injury in sepsis[J]. Critical Care, 2014, 18(4): R142. DOI:10.1186/cc13970 |
| [54] |
HERZIG D S, LUAN L M, BOHANNON J K, et al. The role of CXCL10 in the pathogenesis of experimental septic shock[J]. Critical Care, 2014, 18(3): R113. DOI:10.1186/cc13902 |
| [55] |
BERG N K, LI J W, KIM B, et al. Hypoxia-inducible factor-dependent induction of myeloid-derived netrin-1 attenuates natural killer cell infiltration during endotoxin-induced lung injury[J]. Faseb Journal, 2021, 35(4): e21334. DOI:10.1096/fj.202002407R |
| [56] |
LEE S W, PARK H J, JEON J, et al. Chromatin regulator SRG3 overexpression protects against LPS/D-GalN-induced sepsis by increasing IL10-producing macrophages and decreasing IFNγ-producing NK cells in the liver[J]. International Journal of Molecular Sciences, 2021, 22(6): 3043. DOI:10.3390/ijms22063043 |
| [57] |
LUO W J, YU S L, CHANG C C, et al. HLJ1 amplifies endotoxin-induced sepsis severity by promoting IL-12 heterodimerization in macrophages[J]. ELife, 2022, 11: e76094. DOI:10.7554/eLife.76094 |
| [58] |
ARIAS M A, JIMÉNEZ DE BAGÜES M P, AGUILÓN, et al. Elucidating sources and roles of granzymes A and B during bacterial infection and sepsis[J]. Cell Reports, 2014, 8(2): 420-429. DOI:10.1016/j.celrep.2014.06.012 |
| [59] |
GARZÓN-TITUAÑA M, SIERRA-MONZÓN J L, COMAS L, et al. Granzyme A inhibition reduces inflammation and increases survival during abdominal sepsis[J]. Theranostics, 2021, 11(8): 3781-3795. DOI:10.7150/thno.49288 |
| [60] |
LAN J, ZHANG H, ZHAO H, et al. Cord blood natural killer cells inhibit sepsis caused by feces-induced acute peritonitis via increasing endothelium integrity[J]. Cell Transplantation, 2022, 31: 9636897221090257. DOI:10.1177/09636897221090257 |
| [61] |
FENG T, LIAO X L, YANG X W, et al. A shift toward inhibitory receptors and impaired effector functions on NK cells contribute to immunosuppression during sepsis[J]. Journal of Leukocyte Biology, 2020, 107(1): 57-67. |
| [62] |
JENSEN I J, WINBORN C S, FOSDICK M G, et al. Polymicrobial sepsis influences NK-cell-mediated immunity by diminishing NK-cell-intrinsic receptor-mediated effector responses to viral ligands or infections[J]. PLoS Pathogens, 2018, 14(10): e1007405. DOI:10.1371/journal.ppat.1007405 |
| [63] |
ROQUILLY A, MCWILLIAM H E G, JACQUELINE C, et al. Local modulation of antigen-presenting cell development after resolution of pneumonia induces long-term susceptibility to secondary infections[J]. Immunity, 2017, 47(1): 135-147.e5. DOI:10.1016/j.immuni.2017.06.021 |
| [64] |
KIM E Y, NER-GAON H, VARON J, et al. Post-sepsis immunosuppression depends on NKT cell regulation of mTOR/IFN-γ in NK cells[J]. Journal of Clinical Investigation, 2020, 130(6): 3238-3252. DOI:10.1172/JCI128075 |
| [65] |
RASID O, CHEVALIER C, CAMARASA T M, et al. H3K4me1 supports memory-like NK cells induced by systemic inflammation[J]. Cell Reports, 2019, 29(12): 3933-3945.e3. DOI:10.1016/j.celrep.2019.11.043 |
| [66] |
FRANCOIS B, JEANNET R, DAIX T, et al. Interleukin-7 restores lymphocytes in septic shock: The IRIS-7 randomized clinical trial[J]. JCI Insight, 2018, 3(5): e98960. DOI:10.1172/jci.insight.98960 |
| [67] |
SHINDO Y, FUCHS A G, DAVIS C G, et al. Interleukin 7 immunotherapy improves host immunity and survival in a two-hit model of Pseudomonas aeruginosa pneumonia[J]. Journal of Leukocyte Biology, 2017, 101(2): 543-554. DOI:10.1189/jlb.4A1215-581R |
| [68] |
NANDAGOPAL N, ALI A K, KOMAL A K, et al. The critical role of IL-15-PI3K-mTOR pathway in natural killer cell effector functions[J]. Frontiers in Immunology, 2014, 5: 187. |
| [69] |
GUO Y, LUAN L M, PATIL N K, et al. Immunobiology of the IL-15/IL-15Rα complex as an antitumor and antiviral agent[J]. Cytokine & Growth Factor Reviews, 2017, 38: 10-21. |
| [70] |
INOUE S, UNSINGER J, DAVIS C G, et al. IL-15 prevents apoptosis, reverses innate and adaptive immune dysfunction, and improves survival in sepsis[J]. Journal of Immunology, 2010, 184(3): 1401-1409. DOI:10.4049/jimmunol.0902307 |
| [71] |
GUO Y, LUAN L M, PATIL N K, et al. IL-15 enables septic shock by maintaining NK cell integrity and function[J]. Journal of Immunology, 2017, 198(3): 1320-1333. DOI:10.4049/jimmunol.1601486 |
| [72] |
VIGNALI D A A, KUCHROO V K. IL-12 family cytokines: Immunological playmakers[J]. Nature Immunology, 2012, 13(8): 722-728. DOI:10.1038/ni.2366 |
| [73] |
SHIH H P, DING J Y, SOTOLONGO BELLÓN J, et al. Pathogenic autoantibodies to IFN-γ act through the impedance of receptor assembly and Fc-mediated response[J]. Journal of Experimental Medicine, 2022, 219(9): e20212126. DOI:10.1084/jem.20212126 |
| [74] |
ZHAO Q, GONG Z J, WANG J L, et al. A zinc- and calcium-rich lysosomal nanoreactor rescues monocyte/macrophage dysfunction under sepsis[J]. Advanced Science, 2023, 10(6): e2205097. DOI:10.1002/advs.202205097 |
| [75] |
BAO Q, LV R, LEI M. IL-33 attenuates mortality by promoting IFN-γ production in sepsis[J]. Inflammation Research, 2018, 67(6): 531-538. DOI:10.1007/s00011-018-1144-9 |
| [76] |
贾合磊, 卢长青, 袁彬, 等. 大黄提取物对脓毒症大鼠急性肾损伤的保护作用和对Keap1/Nrf2信号通路的影响[J]. 药物分析杂志, 2021, 41(6): 979-985. |
| [77] |
LIU J, LI G, CHEN Y Z, et al. Effects of rhubarb on the expression of glucocorticoids receptor and regulation of cellular immunity in burn-induced septic rats[J]. Chinese Medical Journal, 2019, 132(10): 1188-1193. DOI:10.1097/CM9.0000000000000201 |
| [78] |
闫雨蒙. 金银花对脓毒症小鼠炎症反应、免疫调节影响及机制探究[D]. 北京: 北京中医药大学, 2021.
|
| [79] |
ZHANG T, LIU H P, MA P C, et al. Immunomodulatory effect of polysaccharides isolated from Lonicera japonica Thunb. in cyclophosphamide-treated BALB/c mice[J]. Heliyon, 2022, 8(11): e11876. DOI:10.1016/j.heliyon.2022.e11876 |
| [80] |
ZHANG M, ZHENG R, LIU W J, et al. Xuebijing injection, a Chinese patent medicine, against severe pneumonia: Current research progress and future perspectives[J]. Journal of Integrative Medicine, 2023, 21(5): 413-422. DOI:10.1016/j.joim.2023.08.004 |
| [81] |
YUAN R, HUANG L T, DU L J, et al. Dihydrotanshinone exhibits an anti-inflammatory effect in vitro and in vivo through blocking TLR4 dimerization[J]. Pharmacological Research, 2019, 142: 102-114. DOI:10.1016/j.phrs.2019.02.017 |
| [82] |
PENG Y, YANG T, HUANG K, et al. Salvia miltiorrhiza ameliorates liver fibrosis by activating hepatic natural killer cells in vivo and in vitro[J]. Frontiers in Pharmacology, 2018, 9: 762. DOI:10.3389/fphar.2018.00762 |
| [83] |
沈丽娟, 吴锡平, 关云艳, 等. 不同剂量黄芪对脓毒症患者免疫功能和血小板活化因子的干预研究[J]. 南京中医药大学学报, 2019, 35(2): 135-138. |
| [84] |
SU Y, YIN X, HUANG X, et al. Astragaloside Ⅳ ameliorates sepsis-induced myocardial dysfunction by regulating NOX4/JNK/BAX pathway[J]. Life Sciences, 2022, 310: 121123. DOI:10.1016/j.lfs.2022.121123 |
| [85] |
DOU B K, LI S C, WEI L Y, et al. Astragaloside Ⅳ suppresses post-ischemic natural killer cell infiltration and activation in the brain: Involvement of histone deacetylase inhibition[J]. Frontiers of Medicine, 2021, 15(1): 79-90. DOI:10.1007/s11684-020-0783-8 |
| [86] |
GU J R, RAN X F, DENG J, et al. Glycyrrhizin alleviates sepsis-induced acute respiratory distress syndrome via suppressing of HMGB1/TLR9 pathways and neutrophils extracellular traps formation[J]. International Immunopharmacology, 2022, 108: 108730. DOI:10.1016/j.intimp.2022.108730 |
| [87] |
TAN R, XIANG X, CHEN W, et al. Efficacy of diammonium glycyrrhizinate combined with vitamin C for treating hospitalized COVID-19 patients: A retrospective, observational study[J]. Qjm-an International Journal of Medicine, 2022, 115(2): 77-83. DOI:10.1093/qjmed/hcab184 |
| [88] |
LI Y N, ZHOU J, QIU J S, et al. Berberine reduces gut-vascular barrier permeability via modulation of ApoM/S1P pathway in a model of polymicrobial sepsis[J]. Life Sciences, 2020, 261: 118460. DOI:10.1016/j.lfs.2020.118460 |
| [89] |
LI H, FENG C L, FAN C, et al. Intervention of oncostatin M-driven mucosal inflammation by berberine exerts therapeutic property in chronic ulcerative colitis[J]. Cell Death & Disease, 2020, 11(4): 271. |
| [90] |
GAO Y, LIU S Q, WANG J L, et al. Vitro UPLC analysis and mass method identification, and in vivo or cellular immune anti-inflammatory function of Sanhuang Xiexin Decoction(SHXD)[J]. Journal of Ethnopharmacology, 2024, 318(Pt B): 117002. |