 2026, Vol. 45
文章信息
- 夏玉涛, 张冠宇, 张永强, 武帅, 张莉, 杨丹凤, 李曦
- XIA Yutao, ZHANG Guanyu, ZHANG Yongqiang, WU Shuai, ZHANG Li, YANG Danfeng, LI Xi
- 氯化两面针碱抑制小鼠C2C12细胞成肌分化
- Nitidine Chloride inhibits myogenesis of murine C2C12 cells
- 天津中医药大学学报, 2026, 45(5): 553-560
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(5): 553-560
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.05.07
-
文章历史
收稿日期: 2026-01-06


2. 军事科学院军事医学研究院, 天津 300050
2. Academy of Military Medical Sciences, Academy of Military Sciences, Tianjin 300050, China
两面针[Zanthoxylum nitidum(Roxb.)DC.]是中国传统中药,具有行气止痛,活血散瘀,通络祛风等功效[1],现代研究表明两面针还有抗菌、抗炎等药理活性,是许多经典处方制剂的成方药材之一,如三九胃泰、清上颗粒剂等,在临床上被广泛应用[2]。氯化两面针碱(NC)是从两面针干燥根茎中提取的一种苯并菲啶类生物碱[3],具有广泛的抗癌活性,能够通过磷脂酰肌醇-3-激酶(PI3K)/蛋白激酶B(AKT)/雷帕霉素靶蛋白(mTOR)信号通路、线粒体途径、P38丝裂原活化蛋白激酶(P38 MAPK)信号通路、阻断细胞周期等促进癌细胞凋亡、发挥抗癌作用[4-7],提高某些耐药化疗药物的敏感性[8],其药物制剂有望用于临床治疗,是未来潜在的抗癌候选药物。近年来,NC的副作用越来越受到广泛的关注。Mao等[9]采用100 μmol/L NC处理人肝微粒体,发现能够抑制细胞色素P4502D6(CYP2D6)酶的活性,CYP2D6是一种药物代谢酶,它的失活会导致某些临床副作用如肝毒性,尚不清楚该剂量的NC对其他器官的影响。
骨骼肌是人体最大的组织,约占人体体重的40%[10],除了运动的功能外,在全身代谢中也起着重要作用。骨骼肌通过调节葡萄糖摄取和胰岛素敏感性维持代谢稳态和代谢健康,其代谢状态对机体健康具有重要影响[11]。研究表明肌肉萎缩可增加衰老、慢性肾病和神经元性疾病等的发病风险和死亡风险[12-13]。骨骼肌由多核肌管组成,肌肉祖细胞形成肌纤维的过程称为肌生成。肌生成时骨骼肌干细胞即卫星细胞(MuSCs)首先被激活,在肌因子的调控下增殖并融合成多核肌管,从而进一步分化为肌纤维。成肌细胞分化是一个复杂的过程,其过程受到多个肌肉特异性转录因子的调控[14],如肌源性调节因子(MRFs)家族中的成肌分化因子(MyoD)、生肌因子4(Mrf4/Myf6)、生肌因子5(Myf5)和肌细胞生成素(MyoG)等,通过P38 MAPK、PI3K/AKT、JAK/STAT、Wnt、Notch、TGF-β等信号通路控制肌动蛋白、肌钙蛋白和肌球蛋白重链等重要肌肉蛋白的合成共同参与骨骼肌再生和修复[15],并调节肌分化[16]。癌症患者通常伴随着肌肉减少症和肌蛋白流失等肌肉相关的不利影响[17],NC作为潜在抗癌药物,其对于骨骼肌的影响是一个值得探索的问题。研究表明100 μmol/L浓度的NC能够抑制药物代谢酶活性,探索同样剂量的NC对于骨骼肌是否具有抑制作用,对于指导其在未来临床上用药剂量具有重要意义。因此本研究以小鼠C2C12成肌细胞为研究对象,采用100 μmol/L浓度的NC初步探讨对C2C12成肌分化的影响及其可能的分子机制。
1 材料 1.1 细胞C2C12成肌细胞系CRL-1772[批号:63677024,中国科学院(上海)]。
1.2 药物与试剂氯化两面针碱(货号:HY-N0498,美国MedChemExpress公司);DMEM培养基(货号:C11995500BT,美国Thermo Fisher Scientific);胎牛血清(货号:16000-044,美国Gibco);马血清(货号:16050122,美国Gibco);驴血清(货号:S9100,北京索莱宝);总RNA提取试剂盒(货号:B511321-0100,生工生物工程(上海));反转录预混试剂(实时定量PCR)(货号:RR036A,宝日医生物技术);PCR预混液(货号:A25742,Thermo Fisher Scientific);RIPA裂解液(货号:P0013B,上海碧云天);蛋白酶抑制剂混合物(货号:P046-1,上海碧云天);磷酸酶抑制剂混合物(货号:P1046-2,上海碧云天);BCA蛋白定量检测试剂盒(货号:23227,美国赛默飞公司);化学发光试剂盒(货号:WBKLS0100,美国Sigma公司);脱脂乳粉(货号:232100,美国BD公司);20(TBST(货号:T1082,北京索莱宝);蛋白印迹膜再生液(货号:CW0056M,上海康维世纪);Myosin 4抗体(货号:14-6503-82,美国Thermo Fisher Scientific);驴抗兔抗Donkey anti-Rabbit(货号:XG350189,美国Thermo Fisher Scientific);辣根过氧化物酶(HRP)标记山羊抗兔抗(货号:SA00001-20,武汉三鹰技术);辣根过氧化物酶(HRP)标记山羊抗鼠抗(货号:SA00001-1,武汉三鹰技术);P38 MAPK鼠抗(货号:66234-1-Ig,武汉三鹰技术);p-P38 MAPK(Thr180/Tyr182)兔抗(货号:28796-1-AP,武汉三鹰技术);AKT兔抗(货号:4601T,Cell Signaling公司);p-AKT(Ser473)兔抗(货号:4060T,Cell Signaling公司);Tubulin鼠抗(货号:66031-1-Ig,武汉三鹰技术);CCK-8试剂盒(货号:BS350B,白鲨生物技术);4%多聚甲醛固定液(货号:BL539A,白鲨生物技术);4',6-二脒基-2-苯基吲哚二盐酸盐(DAPI)溶液(货号:C0060,北京索莱宝);胰蛋白酶(货号:12604013,美国Gibco);PBS缓冲液(货号:P1020,北京索莱宝);电泳粉(货号:M00138,金斯瑞生物技术);电转粉(货号:M00139,金斯瑞生物技术);4%~12% 预制胶(M00652,金斯瑞生物技术)。
1.3 仪器台式高速冷冻离心机(5424R,德国艾本德);超微量分光光度计(Nano drop One,美国Thermo Fisher Scientific);荧光定量PCR仪器(Quant Studio 5,美国Life Technologies);Imager680凝胶成像仪(AI680RGB,美国Amersham Pharmacia);荧光倒置显微镜(DMI8,德国徕卡);酶标仪(Uquant 200-9,美国Bio-Tek)。
2 实验方法 2.1 细胞培养将C2C12细胞接种于6孔板,使用含有10%胎牛血清的DMEM培养基,在培养箱中于37 ℃、5% CO2条件下培养,待细胞密度达到80%融合时进行细胞传代。传代细胞仍按上述培养条件继续培养,待细胞密度达100%时将培养基更换为含2%马血清的DMEM培养基继续培养,每隔1 d换液1次,诱导分化7 d,使用显微镜观察分化后的肌管形态。将NC溶于DMSO中,用含2%马血清的DMEM培养基稀释浓度至100 μmol/L,干预24 h后进行后续实验。
2.2 免疫荧光染色将细胞在4%多聚甲醛中固定5 min,用PBS洗涤后用0.1% Triton X-100和5%驴血清封闭透化30~60 min后用PBS洗涤3次,每次5 min,用一抗Myosin(1∶1 000)在4 ℃条件下孵育过夜。用荧光二抗兔抗Donkey anti-Rabbit在室温条件下避光孵育1 h,用DAPI工作液染色5 min。使用荧光倒置显微镜观察肌管,并用Image J计算荧光面积。
2.3 RNA提取和定量逆转录聚合酶链式反应(qRT-PCR)收集各组细胞,每孔加入500 μL Trizol裂解细胞,根据总RNA提取试剂盒提取细胞并反转录为cDNA并稀释5倍,按照cDNA 2 μL,正反引物各0.5 μL,2×PowerUp SYBR Green Master Mix 10 μL的体系使用荧光定量PCR仪运行程序。具体的程序为:UDG酶激活:50 ℃,2 min;预变性:95 ℃,2 min;设置40个循环:变性:95 ℃,15 s,退火:55~60 ℃,15 s,延伸,72 ℃,1 min;溶解:95 ℃,15 s;60 ℃,1 min;95 ℃,15 s。根据qRT-PCR得出的CT值,以36B4为内参,采用2-ΔΔCt方法计算结果。本研究中使用的引物序列见表 1。
| Gene | Forward(5’-3’) | Reverse(5’-3’) |
| Ki67 | CCTCAGCTCCTGCCTGTTTG | TCCATGTCTCAGCCTCACAG |
| Myod | CCGCCTGAGCAAAGTGAATG | GGTCTGGGTTCCCTGTTCTG |
| Myog | AAGCGCAGGCTCAAGAAAGT | TCAATGTACTGGATGGCGCT |
| Myf6 | GACTGCCCAAGGTGGAGATT | TAGCAGTTATCACGAGGCCC |
| Tnnt1 | ACAGCGGAAAAAGGAGGAGG | AGGTAGCCCCCAAAATGAGC |
| Tnnt3 | CGCCACTATGTCTGACGAGG | TTGGACTTCCTCTGGTTCGG |
| Myh3 | ATGAGCGGCGTGTTAAGGA | ATTGACTTGCGATTCTGCGATA |
| Myh4 | GGAGGCTGAGGAACAATCCA | CTCCTGTCACCTCTCAACAGAA |
| Myh7 | GGACAAAGGCAAAGGCAAGG | GTTGTCCATCACCCCTGGAG |
| 36b4 | CTGCACTCTCGCTTTCTGGA | ACGCGCTTGTACCCATTGAT |
细胞以5×10⁴/mL接种于96孔板中,在生长培养基中培养24 h后用不同浓度(0,1,10,100 μmol/L)的NC处理24 h,然后向细胞中加入10 μL CCK-8试剂孵育30 min~4 h。使用酶标仪于450 nm处检测吸光度。
2.5 蛋白质组学分析空白组和NC(100 μmol/L)组,每组设置3个生物学重复,处理24 h后分别提取总蛋白。
蛋白质提取:每个样品分别加入适量SDT裂解液,转移到EP管中,然后沸水浴3 min,超声破碎2 min,4 ℃,16 000×g离心20 min(离心半径1.988 cm),取上清,使用BCA法进行蛋白定量。
蛋白质酶解处理流程:针对各样品,适量取样后进行FASP酶解,具体操作如下:首先,向每份样品中添加DTT至最终浓度为100 mmol/L,随后置于沸水中浴煮5 min,之后冷却至室温。接着,加入200 μL的UA缓冲液(含8 mol/L尿素,150 mmol/L Tris-HCl,pH值为8.0),充分混合后,转移至10 KD的超滤离心管中,以12 000×g的转速离心15 min(离心半径1.988 cm)。之后,再次加入200 μL UA缓冲液,同样以12 000×g的转速离心15 min(离心半径1.988 cm),然后弃去滤液。随后,向离心管中加入100 μL的IAA溶液(50 mmol/L IAA溶于UA中),在600 r/min的转速下振荡1 min(离心半径1.118 cm),避光室温放置30 min,之后以12 000×g的转速离心10 min(离心半径4.472 cm)。接着,加入100 μL UA缓冲液,以12 000×g的转速离心10 min(离心半径4.472 cm),此步骤重复两次。之后,改用100 μL的NH4HCO3缓冲液,以14 000×g的转速离心10 min(离心半径6.088 cm),此步骤同样重复两次。然后,加入40 μL的Trypsin缓冲液(含6 μg Trypsin于40 μL NH4HCO3缓冲液中),在600 r/min的转速下振荡1 min(离心半径1.118 cm),置于37 ℃环境中孵育16~18 h。孵育完成后,更换新的收集管,以12 000×g的转速离心10 min(离心半径4.472 cm),收集滤液。向滤液中加入适量的0.1% TFA溶液,然后使用Cartridge进行脱盐处理,最后进行真空冻干。将酶解产物经真空干燥处理后,使用含0.1%甲酸的溶液重新溶解,采用紫外分光光度法测定肽段含量,制备液相色谱-质谱联用检测样品。
质谱检测:进行色谱分离操作后,将所得的肽段采用Thermo Scientific公司的Orbitrap Astral质谱仪器进行DIA(数据非依赖性采集)模式的质谱分析。
数据分析:采用DIA-NN软件将所得的质谱数据进行检索,数据库为uniprotkb-Musmusculus,(Mouse)[10090]-87434-20240725.fasta(https://www.uniprot.org/taxonomy/10090),之后进行定量分析并筛选蛋白质和肽段(Qvalue≤0.01)。采用t检验(Student’s t test)筛选差异显著蛋白。将筛选标准设定为表达差异倍数超过3.0倍(无论是上调还是下调),且P值小于0.05的蛋白质,视为具有显著性差异表达的蛋白质。
生物信息学分析:对鉴定出的NC组比空白组的差异表达蛋白(N/C DEPs)进行生物信息学分析,运用注释、可视化和综合发现数据库(DAVID,https://david.ncifcrf.gov/home.jsp)对蛋白进行基因本体(GO)富集分析,并借助京都基因与基因组百科全书(KEGG)数据库进行通路富集分析;同时,利用STRING数据平台开展蛋白质-蛋白质相互作用(PPI)的网络分析,并用Cytoscape软件进行可视化。
2.6 蛋白印迹(Western Blot,WB)分析收集各组细胞,加入含有蛋白酶和磷酸酶抑制剂混合物的裂解液于冰上裂解30 min,4 ℃、12 000 r/min、离心10 min(离心半径4.472 cm),上清液为细胞总蛋白,用BCA法测定蛋白浓度后,计算蛋白上样体积,加入5×loading buffer于95 ℃金属浴10 min。使用4%~12%预制胶进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),接着用湿转法转膜后,用5%的脱脂牛奶封闭2 h,加入一抗p-P38 MAPK(Thr180/Tyr182)、P38 MAPK、p-AKT(Ser473)、AKT(按1∶1 000比例,用1×TBST稀释配制),4 ℃孵育过夜,分别使用二抗兔抗和二抗鼠抗(按1∶10 000比例,用5%脱脂牛奶配制)于室温孵育1 h。最后用化学发光试剂显色后用化学发光成像仪曝光,用Image J软件进行灰度分析。
2.7 统计分析使用GraphPad Prism 8.2.1软件对结果进行统计分析。数据以均数±标准差(x±s)表示。两组间以P < 0.05为差异具有统计学意义,比较采用独立样本t检验,结果以(*P < 0.05;**P < 0.01;***P < 0.001)进行标注。
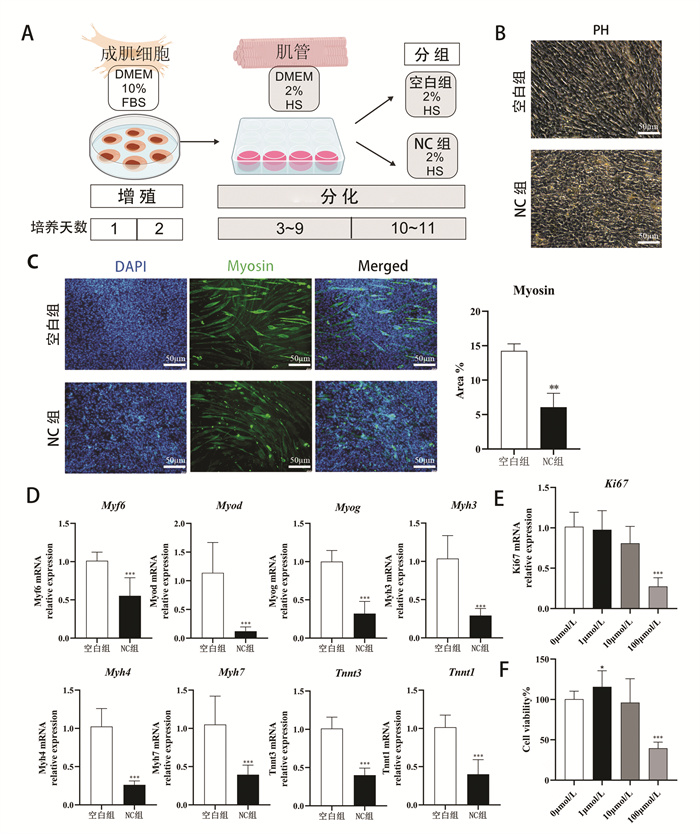
3 结果 3.1 氯化两面针碱对C2C12成肌分化的抑制作用如图 1A,将细胞给药后置于显微镜下观察,发现NC组细胞形态发生改变(图 1B),采用免疫荧光染色分析了NC对C2C12肌管形态的影响,结果显示相比于空白组,NC组肌管变少,肌球蛋白(Myosin)荧光面积显著降低(图 1C)。检测肌源性分化基因和不同肌纤维类型标记基因,发现NC处理的肌细胞中一些特异性基因显著下调,包括Myf6、Myod、Myog、肌球蛋白重多肽3(Myh3)、肌球蛋白重多肽4(Myh4)、肌球蛋白重多肽7(Myh7)、肌钙蛋白T1(Tnnt1)、肌钙蛋白T3(Tnnt3)(图 1D)。以上结果说明,NC抑制C2C12成肌分化。
|
| 注:图A,细胞培养流程图(分化后第10天给药);图B,C2C12肌细胞明场图(比例尺:50 μm);图C,NC对C2C12肌管形态的影响(比例尺:50 μm,n=3);图D,肌分化相关基因的mRNA表达水平(x±s,n=18;与空白组相比,**P < 0.01,***P < 0.001);图E,NC对C2C12细胞活力的影响(x±s,n=9;与空白组(0 μmol/L)相比,***P < 0.001;图F,NC对C2C12肌细胞中Ki67表达的影响(x±s,n=9;与空白组(0 μmol/L)相比,***P < 0.001。 图 1 NC抑制C2C12成肌分化及增殖 |
通过检测细胞增殖标志物Ki67表达和细胞活力检测结果发现,1 μmol/L浓度的NC提高了C2C12细胞活力,但是没有上调Ki67的表达,说明1 μmol/L浓度的NC可能通过非增殖的途径短暂提高细胞代谢活力,而10 μmol/L浓度的NC对C2C12细胞增殖和代谢活力无显著抑制作用。100 μmol/L NC显著下调C2C12中Ki67的表达(图 1E),并显著降低细胞活力(图 1F),表明NC能够抑制C2C12细胞增殖和代谢活力,这可能是抑制C2C12分化的原因之一。
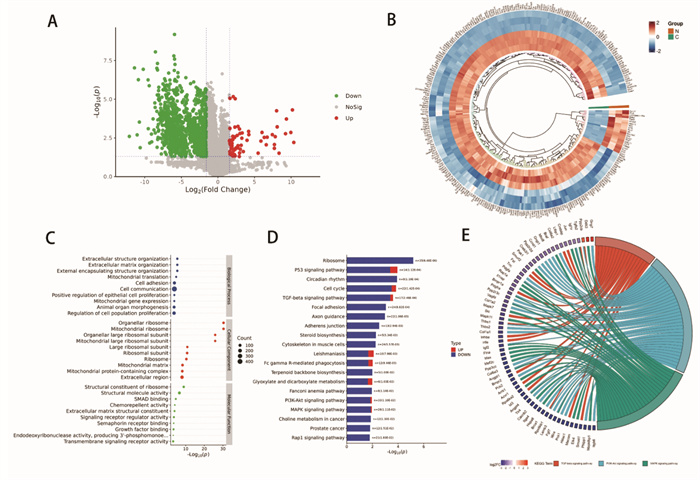
3.2 氯化两面针碱可能通过P38 MAPK和AKT通路抑制C2C12成肌分化 3.2.1 蛋白质组学分析结果 3.2.1.1 差异表达蛋白的鉴定和筛选结果为了研究NC处理的C2C12成肌细胞中蛋白质丰度的变化,对未处理和NC处理的C2C12细胞进行了基于质谱的DIA定量蛋白质组学鉴定筛选,共鉴定出1 297个DEPs,NC组与空白组相比,有64个上调蛋白,1 233个下调蛋白(图 2A、B)。
|
| 注:图A,差异表达蛋白火山图;图B,差异表达蛋白环形热图;图C,GO功能富集分析;图D,KEGG通路富集分析;图E,蛋白通路富集关系弦图。 图 2 差异表达蛋白GO及KEGG分析 |
GO分析结果显示DEPs在生物过程(BP)方面,NC可能通过细胞外结构组织、细胞外基质组织、外部封装结构组织、细胞黏附等过程发挥抑制肌分化作用;在细胞组分(CC)方面,NC可能通过对细胞器核糖体、线粒体核糖体、细胞器大核糖体亚基等部位进行调节发挥作用;在分子功能(MF)方面,NC可能通过核糖体的结构成分、SMAD结合、结构分子活性、生长因子结合等发挥作用(图 2C)。DEPs共注释到322条KEGG通路,通过P < 0.05显著性筛选了top20条通路。KEGG分析结果显示,蛋白富集的通路有核糖体、焦点黏附、Fcγ受体(FcγR)介导的吞噬作用、肿瘤蛋白P53信号通路、TGF-β信号通路、PI3K/AKT信号通路、MAPK信号通路、Ras相关蛋白1(Rap1)信号通路等(图 2D),与肌分化有关的主要为TGF-β信号通路、PI3K/AKT信号通路、MAPK信号通路(表 2)。
| Protein ID | Name | Map ID | Map Name |
| P70340,O09106 | Smad1,Hdac1 | mmu04350 | TGF-beta signaling pathway |
| Q9Z0T9,Q8CHE4,Q9Z2V4,P22272,P36363 | Itgb6,Phlpp1,Pck1,Il6rα,Fgf7 | mmu04151 | PI3K/Akt signaling pathway |
| Q9WVI9,P14404,P41158,P36363 | Mapk8ip1,Mecom,Elk4,Fgf7 | mmu04010 | MAPK signaling pathway |
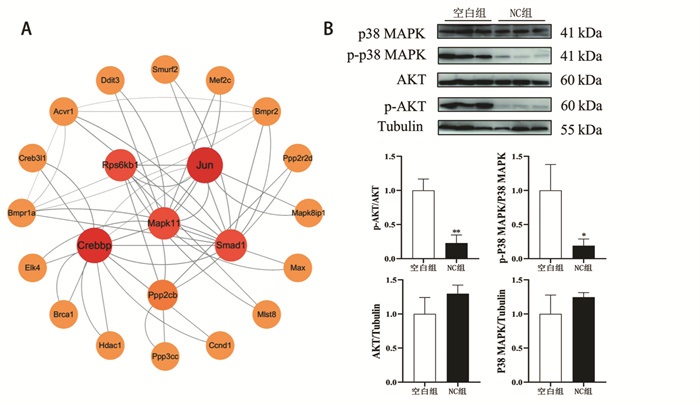
PPI网络分析结果表明,MAPK11(P38-β MAPK)占据互作网络的主要节点位置(图 3A),与Jun原癌基因(Jun)、Creb结合蛋白(Crebbp)、Smad1等多个蛋白相互作用。WB结果显示,与空白组相比,NC组P38 MAPK的磷酸化水平显著下调,同时AKT磷酸化水平显著下调(图 3B)。
|
| 注:图A,差异表达蛋白PPI网络图;图B,NC对C2C12细胞P38 MAPK和AKT表达的影响(n=3;与空白组相比,*P < 0.05,**P < 0.01)。 图 3 NC抑制p38 MAPK及AKT信号通路 |
NC具有广泛的药理活性,尤其在抗癌方面,能够抑制癌细胞增殖、阻滞细胞周期等,但同时也对多个器官表现出损伤和毒性,前期尚不清楚其对于骨骼肌的影响。本研究初步探讨了NC对C2C12细胞增殖分化的作用及相关分子机制,发现10 μmol/L浓度不会抑制C2C12细胞增殖和活力,与文献研究结果一致[18],1 μmol/L浓度的NC短暂提高了细胞代谢活力但是与细胞增殖无关,而100 μmol/L浓度对C2C12的细胞增殖和代谢活力均有显著抑制作用。C2C12细胞成肌分化依赖MuSCs之间的接触融合,NC的增殖抑制作用可能是影响C2C12成肌分化的原因之一。
P38 MAPK(P38)信号通路是将细胞外信号传递到细胞中并与细胞增殖和分化密切相关的重要途径[19]。研究表明,P38对调控肌细胞晚期分化至关重要,而PI3K/AKT信号通路具有代谢、细胞生长、增殖、分化和细胞内运输等生物学功能[20]。通过PI3K/AKT信号通路能够激活mTOR/p70核糖体蛋白S6激酶(p70s6k)增加蛋白质合成从而促进肌分化,AKT在肌分化过程中位于P38 MAPK的下游,激活P38 MAPK能够同时激活AKT[21],本研究也表明NC同时抑制了P38 MAPK和AKT的磷酸化。NC对于C2C12成肌细胞的增殖分化的抑制作用与P38 MAPK和PI3K/AKT通路的抑制有关,但是确切的分子机制仍有待进一步探究。
癌症往往同时伴随肌肉减少症,NC作为潜在的抗癌药其本身可抑制成肌分化,NC对骨骼肌分化的抑制作用可能成为限制其应用于癌症临床实践的一大原因,关注其对骨骼肌的不良作用对未来NC应用于临床试验期间监测其对骨骼肌生理学和再生修复的影响对于评估NC的疗效和所需的长期治疗计划非常重要,同时规避了大剂量的用药风险,未来可进一步研究低浓度的NC对骨骼肌的影响,以明确小剂量NC的安全性。
肌肉量减少是人类衰老的标志之一,骨骼肌的再生取决于MuSCs,它们保持静止以便受损或压力刺激时随时激活进入细胞周期,进一步增殖形成新的肌纤维或自我更新重建新的卫星细胞池,老年人群这种再生机制的受损是丧失身体能力的主要原因之一[24]。MuSCs通过不对称分裂一方面激活导致肌源性分化因子MyoD表达促进肌分化,另一方面通过下调肌因子保持静止状态。NC显著下调了肌源性分化因子的表达,表明NC可能维持了MuSCs的静止。老年人群的骨骼肌卫星细胞无法保持正常的可逆的静止状态,从而不可逆地影响骨骼肌再生。尚不清楚NC是否能够影响骨骼肌再生。研究表明,P38 MAPK的抑制能够使MuSCs退出细胞周期,保持静止状态维持干性。而García-Prat等研究发现通过激活叉头框蛋白O(FOXO)可以保持肌肉干细胞的静止状态,并且保持到老年,起到抗衰老作用。FOXO位于AKT的下游,被AKT抑制泛素化后失活。大量的研究报道了维持MuSCs静止对于维持骨骼肌和对抗老年肌肉衰老至关重要,而NC(100 μmol/L)能够通过P38 MAPK和AKT途径抑制C2C12成肌分化,因此在后续研究中有望以抗衰老为目标,进一步探索较低浓度的NC对骨骼肌的影响,为抗衰老和老年相关疾病研究提供新的思路和方法。
本研究表明100 μmol/L NC在体外抑制成肌细胞增殖和分化,初步阐释了NC抑制C2C12成肌分化的机制与P38 MAPK和AKT途径有关,为NC后续的抗癌、抗衰老等研究提供一定基础和线索。
| [1] |
王双琪, 王媛, 李晋, 等. 两面针化学成分、药理作用及质量控制的研究进展[J]. 天津中医药大学学报, 2024, 43(2): 163-170. DOI:10.11656/j.issn.1673-9043.2024.02.11 |
| [2] |
赫俊杰, 吴晓燕, 阎星旭, 等. 基于功效的两面针药理作用研究进展及临床应用分析[J]. 辽宁中医药大学学报, 2023, 25(5): 93-97. |
| [3] |
周媛, 曾英港, 陶秋霞, 等. 两面针药理作用及质量标志物预测分析研究进展[J]. 中国中医药信息杂志, 2024, 31(11): 180-185. |
| [4] |
LIAN C, HUANG Y, HU P, et al. Nitidine chloride triggers autophagy and apoptosis of ovarian cancer cells through Akt/mTOR signaling pathway[J]. Current Pharmaceutical Design, 2023, 29(19): 1524-1536. DOI:10.2174/1381612829666230614154847 |
| [5] |
YU F, TAN W, CHEN Z, et al. Nitidine chloride induces caspase 3/GSDME-dependent pyroptosis by inhibiting PI3K/Akt pathway in lung cancer[J]. Chinese Medicine, 2022, 17(1): 115. DOI:10.1186/s13020-022-00671-y |
| [6] |
CHEN S, LIAO Y, LV J, et al. Quantitative proteomics based on iTRAQ reveal that nitidine chloride induces apoptosis by activating JNK/c-Jun signaling in hepatocellu-lar carcinoma cells[J]. Planta Medica, 2022, 88(13): 1233-1244. DOI:10.1055/a-1676-4307 |
| [7] |
ZHANG B, ZHOU B, HUANG G, et al. Nitidine chloride inhibits G2/M phase by regulating the p53/14-3-3 Sigma/CDK1 axis for hepatocellular carcinoma treatment[J]. Heli-yon, 2024, 10(1): e24012. |
| [8] |
MENG L I, LI Z, WEILI Z, et al. Study on effect and mech-anism of nitidine chloride on drug resistance of ned-dylation inhibitor MLN4924 in lung cancer[J]. Academic Journal of Shanghai University of Traditional Chinese Med-icine, 2023, 37(4): 22-27. |
| [9] |
MAO X, HU Z, WANG Q, et al. Nitidine chloride is a mechanism-based inactivator of CYP2D6[J]. Drug Metabo-lism and Disposition, 2018, 46(8): 1137-1145. DOI:10.1124/dmd.117.079780 |
| [10] |
BASKIN K K, WINDERS B R, OLSON E N. Muscle as a "mediator"of systemic metabolism[J]. Cell Metabolism, 2015, 21(2): 237-248. DOI:10.1016/j.cmet.2014.12.021 |
| [11] |
MERZ K E, THURMOND D C. Role of skeletal muscle in insulin resistance and glucose uptake[J]. Comprehensive Physiology, 2011, 10(3): 785-809. |
| [12] |
EBERT S M, AL-ZOUGIBI A, BODINE S C, et al. Skeletal muscle atrophy: Discovery of mechanisms and potential therapies[J]. Physiology, 2019, 34(4): 232-239. DOI:10.1152/physiol.00003.2019 |
| [13] |
COHEN S, NATHAN J A, GOLDBERG A L. Muscle wast-ing in disease: Molecular mechanisms and promising thera-pies[J]. Nature Reviews Drug Discovery, 2015, 14(1): 58-74. |
| [14] |
VICENTE-GARCÍA C, HERNÁNDEZ-CAMACHO J D, CARVAJAL J J. Regulation of myogenic gene expression[J]. Experimental Cell Research, 2022, 419(1): 113299. DOI:10.1016/j.yexcr.2022.113299 |
| [15] |
ZAMMIT P S. Function of the myogenic regulatory factors Myf5, MyoD, Myogenin and MRF4 in skeletal muscle, satellite cells and regenerative myogenesis[J]. Seminars in Cell & Developmental Biology, 2017, 72: 19-32. |
| [16] |
郑琪, 睢梦华, 凌英会. 骨骼肌卫星细胞增殖与成肌分化过程中关键信号通路的作用[J]. 畜牧兽医学报, 2017, 48(11): 2005-2014. |
| [17] |
LAVALLE S, VALERIO M R, MASIELLO E, et al. Unveil-ing the intricate dance: How cancer orchestrates muscle wasting and sarcopenia[J]. In Vivo, 2024, 38(4): 1520-1529. DOI:10.21873/invivo.13602 |
| [18] |
LI X, WANG Q, LIU L, et al. The therapeutic potential of four main compounds of Zanthoxylum nitidum (Roxb.) DC: A comprehensive study on biological processes, anti-in-flammatory effects, and myocardial toxicity[J]. Pharmaceu-ticals, 2024, 17(4): 524. DOI:10.3390/ph17040524 |
| [19] |
JUNTTILA M R, LI S P, WESTERMARCK J. Phosphatase-mediated crosstalk between MAPK signaling pathways in the regulation of cell survival[J]. The FASEB Journal, 2008, 22(4): 954-965. |
| [20] |
JIANG N, DAI Q, SU X, et al. Role of PI3K/AKT pathway in cancer: The framework of malignant behavior[J]. Molecu-lar Biology Reports, 2020, 47(6): 4587-4629. |
| [21] |
CABANE C, COLDEFY A S, YEOW K, et al. The p38 pathway regulates Akt both at the protein and transcriptional activation levels during myogenesis[J]. Cellular Signalling, 2004, 16(12): 1405-1415. DOI:10.1016/j.cellsig.2004.05.003 |
| [22] |
KNIGHT J D R, KOTHARY R. The myogenic kinome: Pro-tein kinases critical to mammalian skeletal myogenesis[J]. Skeletal Muscle, 2011, 1(1): 1-18. DOI:10.1186/2044-5040-1-1 |
| [23] |
YUAN R, LUO X, LIANG Z, et al. UBE2C promotes myo-blast differentiation and skeletal muscle regeneration through the Akt signaling pathway: UBE2C regulates myo-genesis through the Akt signaling pathway[J]. Acta Biochi-mica et Biophysica Sinica, 2024, 56(7): 1065-1078. |
| [24] |
BLAU H M, COSGROVE B D, HO A T V. The central role of muscle stem cells in regenerative failure with aging[J]. Nature Medicine, 2015, 21(8): 854-862. |