 2026, Vol. 45
文章信息
- 康意, 靳茜, 王雪柘, 金鑫燕, 李梓荣, 周梦琪, 李晓文, 王耀献, 吕杰
- KANG Yi, JIN Qian, WANG Xuezhe, JIN Xinyan, LI Zirong, ZHOU Mengqi, LI Xiaowen, WANG Yaoxian, LYU Jie
- 肾纤维化特征基因筛选及靶向中药预测
- Identification of key genes in renal fibrosis and prediction of targeted traditional Chinese medicine
- 天津中医药大学学报, 2026, 45(5): 561-577
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(5): 561-577
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.05.08
-
文章历史
收稿日期: 2026-01-25


2. 北京中医药大学, 北京 100029;
3. 北京市普仁医院, 北京 100062
2. Beijing University of Chinese Medicine, Beijing 100029, China;
3. Beijing Puren Hospital, Beijing 100062, China
慢性肾脏疾病(chronic kidney disease,CKD)作为全球重大公共卫生问题,已累及全球约10%的人口[1]。最新流行病学数据显示,中国成年CKD患者占亚洲患者总数的36.8%,位居首位[2]。然而,我国CKD公众认知率仅约10%[3],系统性防治体系亟待完善。肾纤维化(renal fibrosis,RF)作为CKD向终末期肾病进展的核心病理过程,其特征性病理改变包括驻留及浸润性炎症细胞活化、成纤维细胞/肌成纤维细胞异常增殖、细胞外基质(extracellular matrix,ECM)病理性沉积与重构,伴随肾小管上皮-间充质转化、微血管内皮损伤、局部缺氧微环境形成及毒性代谢产物蓄积,最终导致肾小球硬化及间质纤维化进展[4]。目前抗纤维化治疗面临双重困境:虽然RF驱动机制研究已阐明TGF-β/Smad、Wnt/β-catenin等关键信号通路在肾小管损伤、ECM重构及炎症级联反应中的调控作用,但该机制的高度复杂性导致靶向治疗研发受阻;更值得关注的是,靶向单一病理表型的干预策略可能引发多通路共存的生物学效应失衡[5]。
近年来随着生物信息学技术的发展,基因表达数据的高通量分析为揭示疾病的分子机制提供了新的思路。基因表达谱数据,结合加权共表达网络分析(weighted gene co-expression network,WGCNA)和机器学习等方法,已成为研究疾病机制和筛选潜在标志物的常见手段,为系统解析RF核心调控模块、开发兼顾ECM重构及炎症微环境等协同治疗策略提供了新的科学依据。
肾纤维化属于中医“水肿”“虚劳”“癥瘕”等范畴,病位在肾,病程中“虚”和“瘀”为两大核心病机,痰湿、浊毒交织,终致肾络癥瘕形成[6-7]。中药在抗纤维化治疗中极具潜力,有大量研究证实,中药复方及其活性成分等通过多靶点、多机制发挥抗肾纤维化的作用[8-11]。本研究通过生物信息学及机器学习算法与中医药相结合,逆向筛选靶向RF特征基因的中药及有效成分,系统阐释RF的分子机制及潜在治疗靶点,以期为RF生物标志物的发现、发病机制解析、现代化中医药防治及靶向中药提供科学依据。
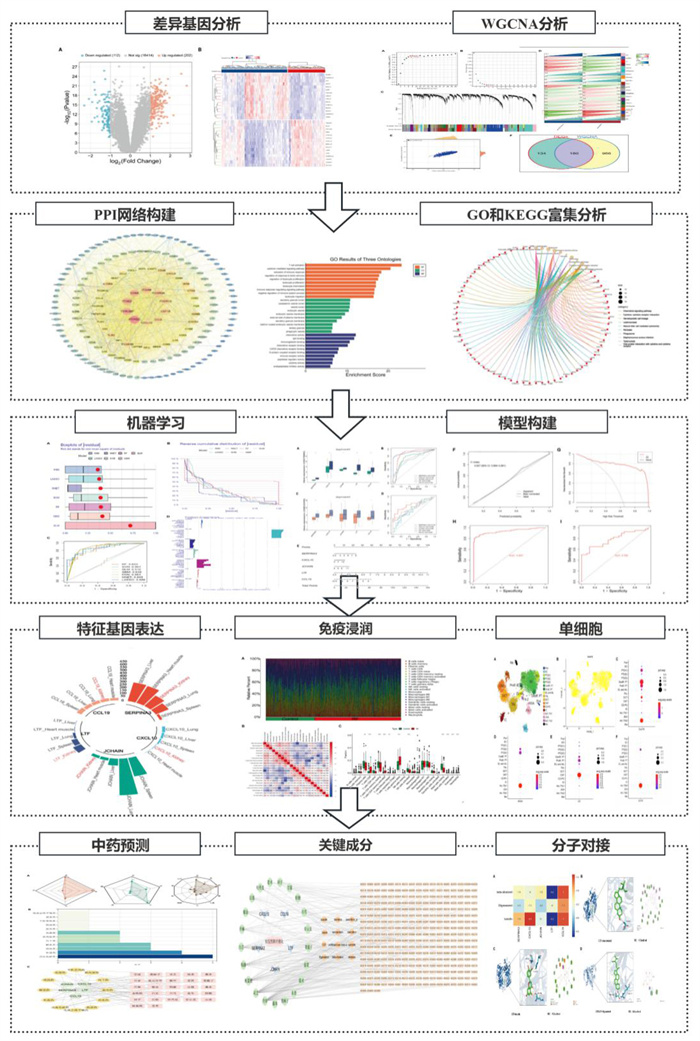
1 方法 1.1 数据来源从基因表达综合数据库(gene expression omnibus,GEO)[12](http://www.ncbi.nlm.nih.gov/geo)下载RF基因表达数据集。GSE76882数据集(GPL13158)作为训练集,包括274个肾脏样本(175个RF样本和99个健康对照样本);GSE22459数据集(GPL570)作为验证集,包括65个肾脏样本(40个RF样本和25个健康对照样本)。技术路线流程如图 1所示。
|
| 图 1 研究流程图 |
使用limma包[13]对GSE76882进行差异表达基因分析,差异表达基因(differentially expressed genes,DEGs)筛选标准为|logFC|>1且adj.P < 0.05。通过ggplot2包和pheatmat包分别绘制火山图和热图以展示DEGs的表达情况。WGCNA是一种用于分析基因表达数据的强大工具,旨在通过构建基因共表达网络来识别基因模块。分别计算每个基因的中位数绝对偏差(median absolute deviation,MAD),剔除了MAD最小的前50%的基因,利用WGCNA包[14]的goodSamplesGenes方法去除了离群的基因和样本,使用WGCNA构建无尺度共表达网络。选择来自显示相关性最强和P < 0.05的模块基因作为关键模块基因。
1.3 PPI网络和富集分析将DEGs和模块基因取交集获得交集基因,将交集基因导入STRING数据库[15](https://string-db.org/)中绘制蛋白质-蛋白质相互作用(protein-protein interaction,PPI)网络。使用clusterProfiler包[16]对筛选出的交集基因进行基因本体(gene ontology,GO)和京都基因与基因组百科全书(kyoto encyclopedia of genes and genomes,KEGG)富集分析。
1.4 机器学习使用caret、randomForest、kernlab、xgboost包构建随机森林(random forest,RF)、支持向量机(support vector machine,SVM)、广义线性模型(generalized linear model,GLM)、梯度提升机(gradient boosting machine,GBM)、K最近邻(K-nearest neighbors,KNN)、神经网络(neural network,NNET)和LASSO回归(least absolute shrinkage and selection operator,LASSO)共7种机器学习模型。在建模前,利用limma等工具对数据进行了质量控制、缺失值剔除、批次效应校正,并通过基因中位绝对偏差(MAD)过滤剔除变异度最低的50%基因。将数据集按7:3比例随机划分为训练集和测试集,采用5折交叉验证训练模型。各模型设置如下:RF:ntree=500',mtry由caret自动调优;SVM:使用径向基函数核,核参数σ(sigma)和惩罚系数C值由caret自动调优;GLM:构建二分类逻辑回归模型,“family=‘binomial’”;GBM:使用提升决策树方法,超参数由caret自动调优;KNN:邻居数k由caret自动调优;NNET:构建单隐含层前馈神经网络,隐含层神经元个数及权重衰减系数由交叉验证自动调优,‘linout=FALSE’,‘skip=FALSE’;LASSO:通过‘α=1’实现LASSO回归,正则化参数λ由glmnet自动选择。最后,使用DALEX包分析残差分布及基因重要性并可视化,利用pROC包绘制ROC曲线筛选RF的特征基因。
1.5 列线图的构建和验证从最佳机器学习模型中提取5个特征基因的表达量,利用rms和rmsa包构建列线图(Nomogram)。通过对每个特征基因的表达水平进行评分,计算出每个样本的综合评分。基于这些综合评分,评估了患者患病的概率。此外,通过校准曲线和决策曲线对模型的性能进行了全面评估,并利用独立验证集数据对模型进行了进一步验证,以确保其稳定性和泛化能力。为了更深入地了解特征基因的生物学意义,利用人类蛋白质图谱(human protein atlas,HPA)数据库[17](https://www.proteinatlas.org/)查询特征基因在人体主要器官中的分布情况。
1.6 免疫浸润分析CIBERSORT算法用于分析试验集中RF样本和正常样本之间的免疫细胞浸润水平,“PERM”参数设置为100,P的临界值为0.05。此外,使用条形图计算和展示样本中每种免疫细胞类型的比例。pheatmap包用于创建22种免疫细胞的热图,vioplot包用于显示的丰度。采用Spearman相关性分析方法,深入探究特征基因与免疫细胞浸润之间的相关性,并借助Lollipop Plot进行可视化。
1.7 单细胞分析基于肾脏整合转录组学(K.I.T.)数据库(http://humphreyslab.com/SingleCell/)中单侧输尿管梗阻(unilateral ureteral obstruction,UUO)小鼠的单细胞测序数据进行分析[18],基于该数据库挖掘特征基因的单细胞测序数据,并将结果进行可视化。
1.8 靶向中药预测将特征基因输入Coremine Medical数据库(https://www.coremine.com/)进行检索,筛选出P < 0.05的中药。《中国药典》2020年版对筛选出的中药名称进行规范化处理,未被收录的中药则不纳入统计。在此基础上,进一步分析这些中药的四气、五味和归经等属性,以深入探究其中药特性。同时,利用Cytoscape 3.9.1软件构建“基因-类别-中药”网络图,可视化特征基因与中药之间的关联关系。结合中医理论中RF病机,进一步构建“基因-病机-治疗”网络图,以揭示基因、中药与中医病机之间的潜在联系。
1.9 基因-中药-成分网络构建及分子对接通过中药系统药理学数据库(TCMSP)检索目标中药的化学成分信息,筛选出生物利用度(oral bioavailability,OB)≥30%和类药性(drug-likeness,DL)≥0.18的潜在活性成分。基于Cytoscape 3.9.1构建基因-中药-成分网络图,揭示基因与中药成分之间的关联关系。通过PubChem数据库获取小分子配体的2D结构,并利用ChemOffice软件生成其3D结构。通过RCSB PDB数据库筛选蛋白靶点且分辨率较高的晶体结构作为分子对接受体,利用PyMOL软件对蛋白质进行去水、去磷酸根等操作,保存为PDB文件。采用AutoDock Vina1.5.6软件进行分子对接,利用Discovery Studio 2019软件进行可视化。
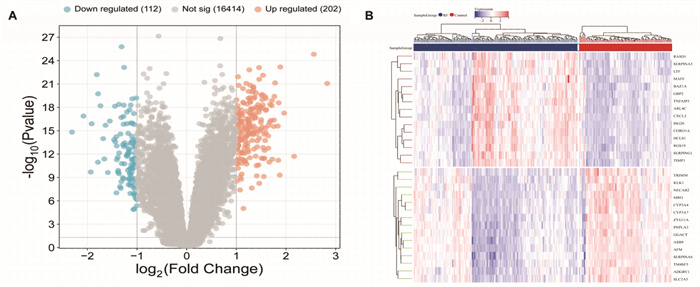
2 结果 2.1 DEGs筛选GSE76882数据集共筛选出314个DEGs作为RF疾病的潜在靶点。其中,202个基因表达上调,112个基因表达下调。火山图展示了差异基因在正常组与RF组之间的表达差异(图 2A),热图则进一步揭示了差异基因的聚类特征(图 2B)。
|
| 图 2 差异基因分析A:火山图;B:热图 |
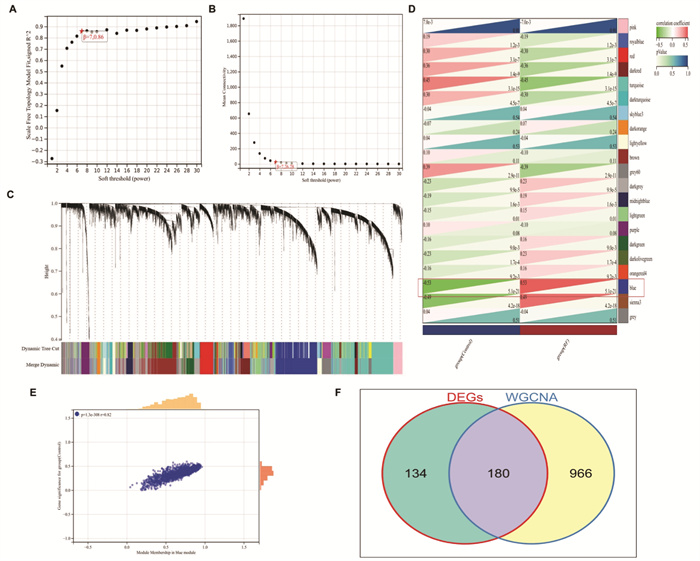
采用WGCNA进一步对GSE76882数据集进行分析,寻找协同表达的基因模块,并探索基因网络与RF之间的关联关系以及网络中的核心基因。通过R2统计量和平均连接度准则确定最优软阈值功率为7,确保基因网络中的无标度拓扑(图 3A-B)。分层聚类分析将GSE76882数据集中的基因表达谱划分为21个共表达模块(图 3C),其中与RF最相关的为blue模块,blue模块与RF呈正相关(r=0.82,P < 0.01)(图 3D-E)。将DEGs与blue模块基因取交集获得180个交集基因(图 3F)。
|
| 注:图A,无标度拓扑拟合指数;图B,平均连接度;图C,WGCNA树状图;图D,共表达模块与RF特征热图;图E,blue模块相关性图;图F,DEGs和模块基因韦恩图。 图 3 WGCNA分析 |
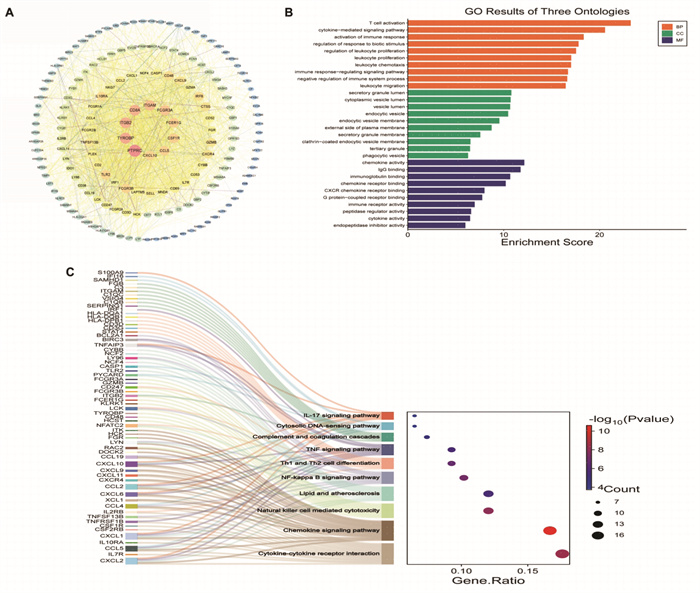
将180个交集基因导入STRING数据库以构建PPI网络,并分析这些基因之间的相互作用关系(图 4A)。在该网络中,degree值越大,圆圈颜色越深,面积越大。为明确基因的功能,进一步进行GO和KEGG富集分析。GO功能富集分析结果显示,在生物学过程(biological process,BP)方面,基因主要富集于T细胞激活、细胞因子介导的信号通路和免疫反应的激活等过程。在细胞成分(cellular component,CC)层面,基因主要富集于分泌颗粒腔、细胞质囊泡腔和囊泡腔等结构。在分子功能(molecular function,MF)方面,基因与趋化因子活性、IgG结合以及趋化因子受体结合等功能密切相关(图 4B)。KEGG通路分析揭示交集基因显著富集于趋化因子信号通路、自然杀伤细胞介导的细胞毒性、NF- κB信号通路、Th1和Th2细胞分化等通路,进一步表明炎症、免疫等生物过程可能在RF的发生和发展中起重要作用(图 4C)。
|
| 注:图A,PPI网络图;图B,GO富集分析;图C,KEGG富集分析。 图 4 PPI网络和富集分析 |
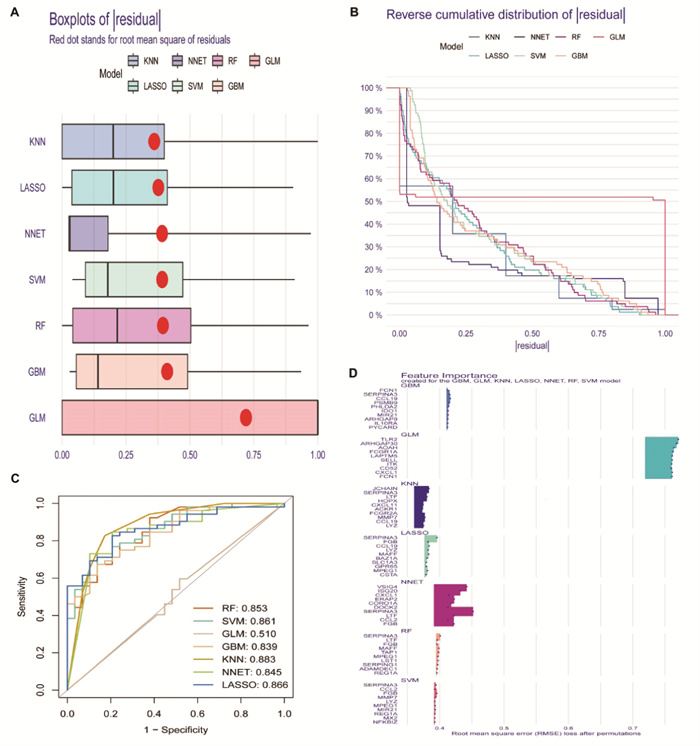
为了筛选出具有高诊断价值的特征基因,本研究构建了7种机器学习模型。残差箱线图(图 5A)和残差反向累积分布图(图 5B)均显示,KNN模型的残差较小,表明这KNN模型对数据的拟合效果较好。ROC曲线分析(图 5C)进一步验证了KNN模型的预测性能,其曲线下面积(AUC)达到0.883,这表明KNN模型在预测RF方面具有较高的准确性。为了进一步筛选特征基因,选取KNN模型的前5位基因:SERPINA3、CXCL10、JCHAIN、LTF和CCL19作为特征基因(图 5D-E),这些特征基因可能在RF的诊断中发挥重要作用。
|
| 注:图A,残差箱线图;图B,残差反向累积分布图;图C,ROC曲线;图D,重要特征基因。 图 5 机器学习筛选特征基因 |
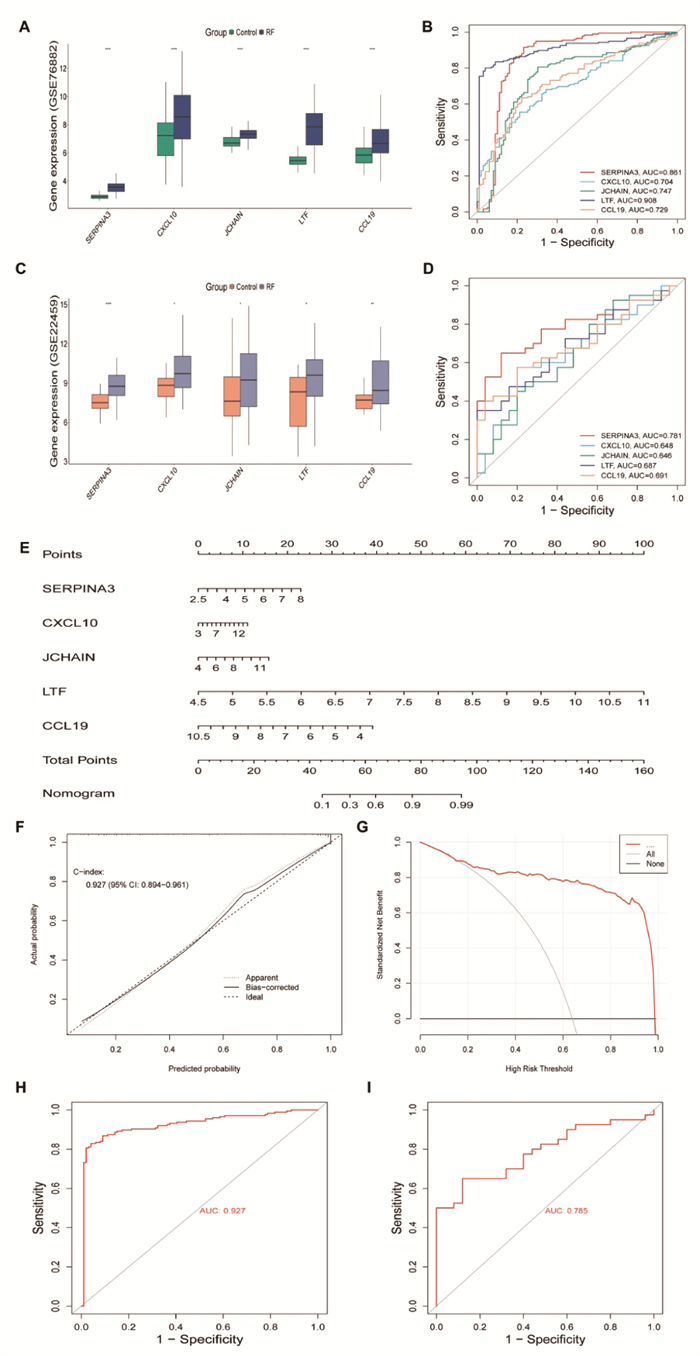
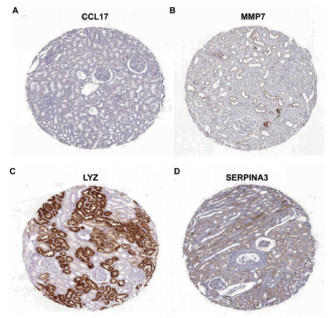
对筛选出的特征基因进行进一步验证,SERPINA3、CXCL10、JCHAIN、LTF和CCL19在测试集中的表达水平均显著升高(图 6A)。此外,AUC值均大于0.7(图 6B),表明特征基因在区分正常组与RF组方面具有较高的效能。在独立测试集中,观察到了与训练集相似的趋势(图 6C),且AUC值均大于0.64(图 6D),进一步证实了特征基因的区分能力。因此基于5个特征基因的表达构建列线图模型(图 6E)以评估特征基因的效能。校准曲线(C-index=0.927)和决策曲线显示模型预测概率与实际概率之间具有较高的一致性(图 6F-G)。此外,基于构建的列线图对样本进行评分,获得Nomogram评分。在训练集和测试集的AUC值分别为0.927和0.785(图 6H-6I),进一步验证了模型的稳定性和预测效能。利用HPA数据库对特征基因在人体五脏中的表达情况进行分析。结果显示,LTF肾脏中的表达水平显著高于其他组织。SERPINA3、CXCL10和CCL19这3个基因在肾脏中的表达水平则处于中等范围。相比之下,JCHAIN在肾脏中的表达则明显低于其他组织(见图 7)。
|
| 注:图A,GSE76882数据集箱图;图B,GSE76882数据集ROC曲线;图C,GSE22459数据集箱图;图D,GSE22459数据集ROC曲线;图E,列线图模型;图F,校准曲线;图G,决策曲线;图H,GSE76882数据集Nomogram评分ROC曲线;图I,GSE22459数据集Nomogram评分ROC曲线。 图 6 列线图模型的构建 |
|
| 图 7 特征基因在组织中的表达情况(表达量单位:nTPM) |
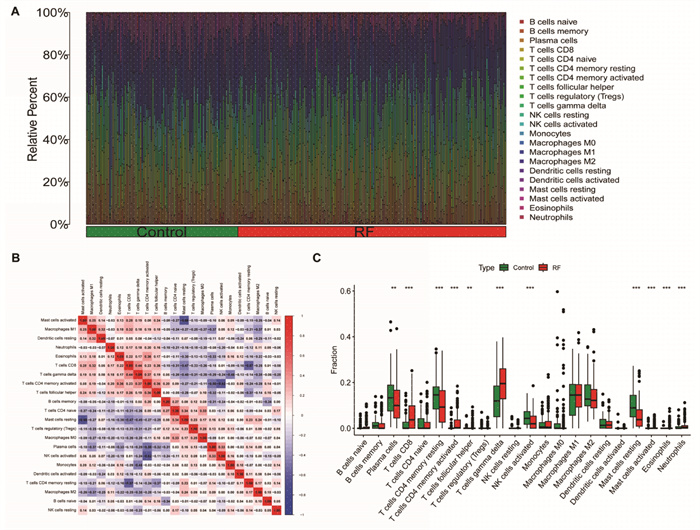
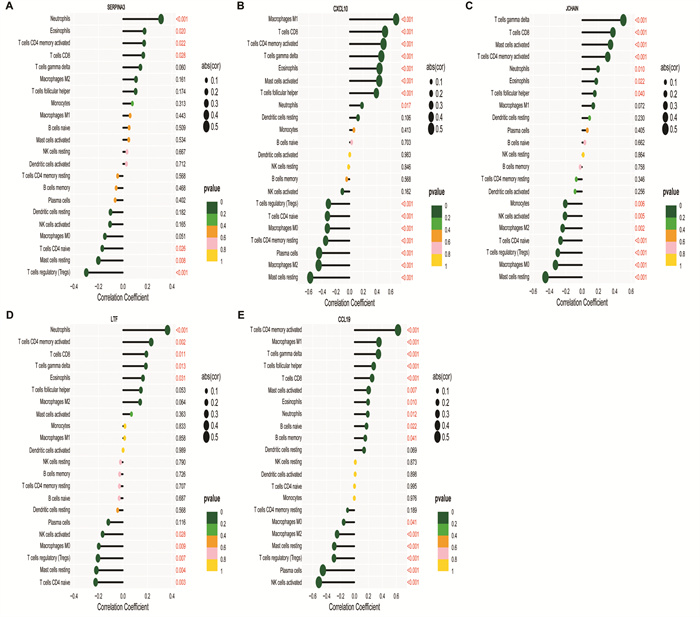
为探究RF的免疫微环境,采用CIBERSORT算法比较RF组与正常对照组的免疫细胞浸润水平。图 8A显示了不同免疫细胞类型在对照组和RF组中的相对百分比,RF组中免疫细胞类型的比例与对照组相比有所差异。图 8B进一步展示了不同免疫细胞之间的相关性。与对照组相比,RF组在CD8+ T细胞、γδ T细胞等免疫细胞亚群中的浸润水平显著升高,在浆细胞、静息肥大细胞等免疫细胞亚群中显著降低,提示这些细胞在RF的发病机制中可能扮演关键角色(图 8C)。进一步探讨特征基因与免疫细胞之间的相关性,分析结果显示SERPINA3与中性粒细胞正相关最强,与初始调节性T细胞负相关最强(图 9A)。CXCL10与M1型巨噬细胞正相关性最强,与静息肥大细胞负相关性最强(图 9B)。JCHAIN与γδ T细胞正相关性最强,与静息肥大细胞负相关性最强(图 9C)。LTF与中性粒细胞正相关最强,与初始CD4+ T细胞负相关性最强(图 9D)。CCL19与活化CD4+记忆T细胞正相关最强,与活化NK细胞负相关最强(图 9E),提示特征基因可能通过调节肾组织的免疫细胞浸润程度影响RF的发生发展。
|
| 注:图A,22个免疫细胞的相对百分比;图B,22个免疫细胞之间的相关性;图C,正常组和RF组的免疫细胞箱图(*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001)。 图 8 免疫浸润分析 |
|
| 注:图A:SERPINA3;图B,CXCL10;图C,JCHAIN;图D,LTF;图E,CCL19。 图 9 特征基因与免疫细胞的相关性 |
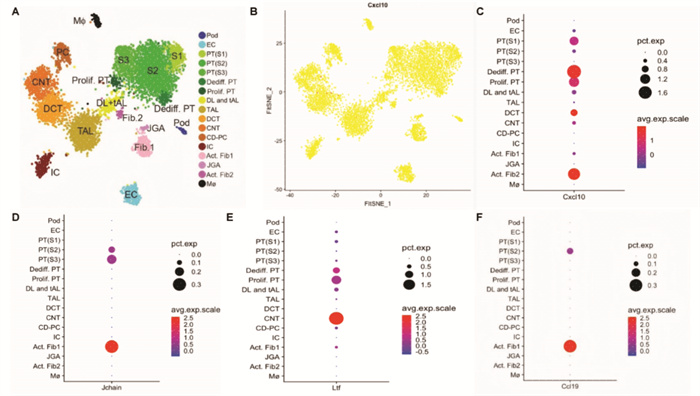
进一步基于KIT数据库进行单细胞分析,图 10A为UUO小鼠肾脏单细胞测序分析的T-SNE图,图中显示了其中发现的代表 17种细胞类型的细胞团,包括足细胞(Pod)、内皮细胞(EC)、近曲小管细胞(PT)等。数据库中未检索到serpina3,Cxcl10主要分布在活化状态的成纤维细胞(Act.Fib2)和PT(图 10B-C);Jchain主要富集在活化状态的成纤维细胞(Act. Fib1)和PT(图 10D);Ltf主要富集在连接小管(CNT)和PT(图 10E);Ccl19主要集中于活化状态的成纤维细胞(Act. Fib1)和PT(图 10F)。
|
| 注:图A,单细胞测序tSNE分布图;图B,Cxcl10表达tSNE分布图;图C,表达气泡图;图D,Jchain表达气泡图;图E,Ltf表达气泡图;图F,Ccl19表达气泡图。 图 10 单细胞测序表达特征分析 |
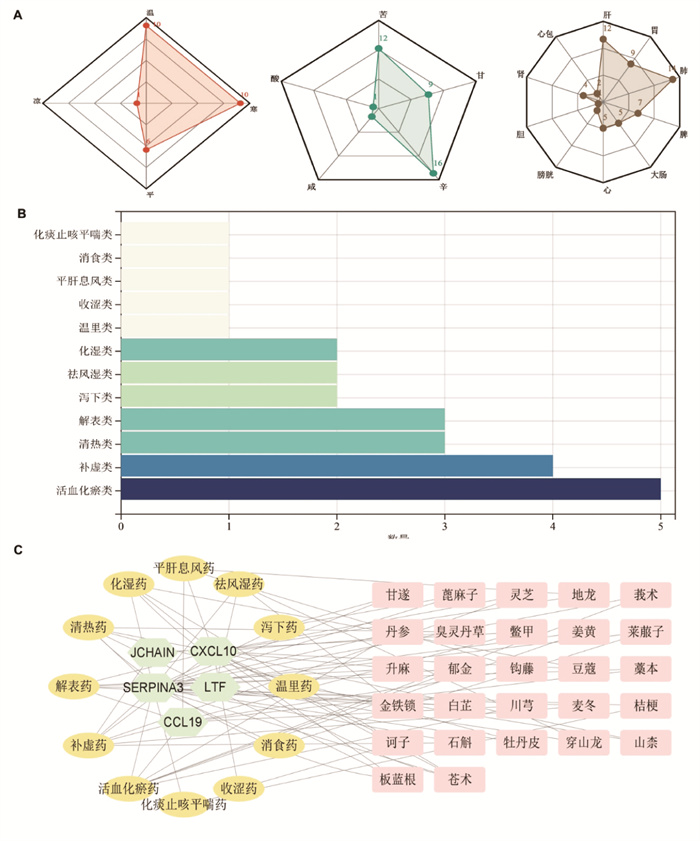
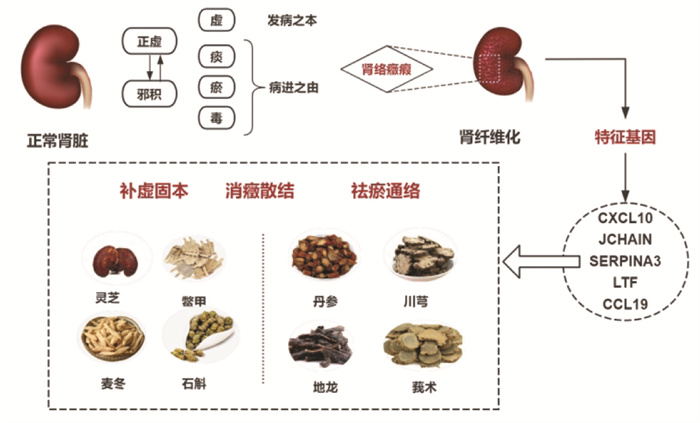
经筛选后5个基因共获得27味中药,这些中药四气以寒、温为主,五味以辛、苦、甘为主,归经最多的是肝、肺、胃经(图 11A)。功效以活血化瘀和补虚为主(图 11B)。靶点-分类-中药网络见图 11C,SERPINA3预测到中药最多(14味),其中苍术被SERPINA3和CXCL10同时预测到。在中医理论中,正虚邪积为RF基本病机,正虚邪实并存,病情缠绵,难以速愈,扶正祛瘀为主要治法。预测到中药中,化瘀通络类包括丹参、莪术、地龙和川芎,奏攻逐瘀血以通肾络之效;补虚固本类包括鳖甲、麦冬、石斛、灵芝,达培补肾气以扶正祛邪之功,鳖甲亦可软坚散结,补虚(图 12)。
|
| 注:图A,四气、五味和归经雷达图;图B,中药类别条形图;图C,基因-类别-药物网络图:绿色椭圆为特征基因,橘色椭圆为中药类别,粉色长方形为预测中药 图 11 RF靶向中药预测 |
|
| 图 12 基因-病机-治疗图 |
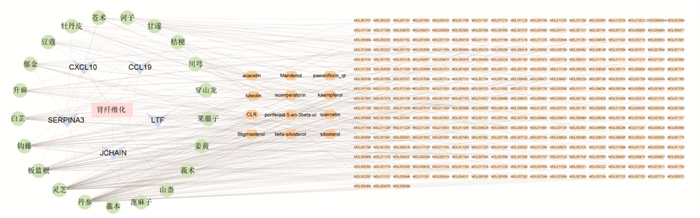
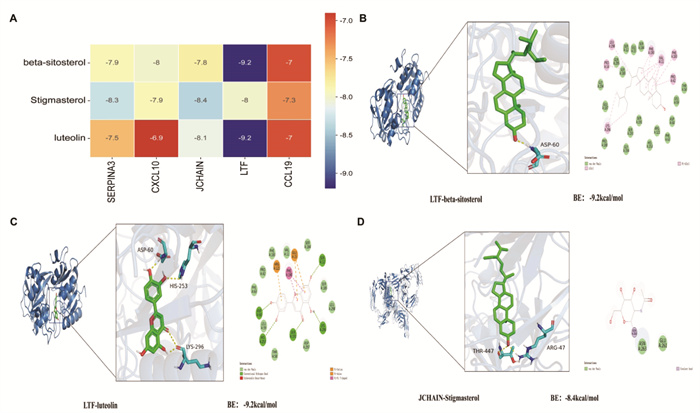
27味药中21味中药能预测到相关的活性成分,采用Cytoscape 3.9.1构建基因-中药-成分网络图,该网络图包括337个点和336条边(图 13)。以网络的度值由大到小排列,前3名成分被视为核心活性成分,分别是β-谷甾醇(beta-sitosterol)、豆甾醇(Stigmasterol)和木犀草素(luteolin)。将关键成分与筛选出的特征基因SERPINA3(1as4)、CXCL10(1o7z)、JCHAIN(6ue7)、LTF(1h45)和CCL19(7sta)进行分子对接发现,关键成分与特征基因均表现出良好的结合活性(图 14A),结合能较高的为:1)β-谷甾醇-LTF(-9.2 kcal/mol):LTF受体上的LEU298、PRO14、LYS296、PHE190、VAL11、PHE183、PRO42残基与β-谷甾醇形成疏水相互作用力(图 14B)。2)木犀草素-LTF(-9.2 kcal/mol):LTF受体上的ASP60、HIS253、SER191、LYS296、SER12残基与木犀草素形成氢键相互作用(图 14C)。3)豆甾醇-JCHAIN(-8.4 kcal/mol):JCHAIN受体上的ASN263残基与Stigmasterol形成Covalent bond,JCHAIN受体上的ASN263、GLU261残基与豆甾醇形成van der Waals(图 14D)。
|
| 注:蓝色倒三角为特征基因,绿色圆圈为中药,橘色菱形为被多种中药预测到的成分,橘色长方形为被一种中药预测到的成分。 图 13 基因-中药-成分网络图 |
|
| 注:图A,分子对接热图;图B,LTF-beta-sitosterol;图C,LTF-Stigmasterol;图D,JCHAIN-Stigmasterol。 图 14 分子对接结果展示 |
RF是不同病因(高血压、高血糖等)驱动的CKD走向肾功能衰竭的关键环节,其特异性治疗策略仍属临床难点,西医治疗主要针对原发病,虽通过肾素-血管紧张素系统抑制剂、钠-葡萄糖协同转运蛋白2抑制剂、非甾体盐皮质激素受体拮抗剂等多途径干预可延缓CKD病程,但当疾病进展至终末期,肾脏替代(透析/移植)治疗成为唯一选择,这极大降低了患者的生活质量[19]。本研究综合应用生物信息学与机器学习方法筛选RF特征基因,并预测其调控中药及活性成分,通过解析基因功能及药理靶点,旨在揭示RF分子机制,促进中药精准化应用,发挥中医药在治疗RF中的优势、提高患者生存质量及降低医疗负担中的潜在优势。
本研究整合差异表达分析和WGCNA共表达网络分析获得80个交集基因,富集分析显示交集基因与炎症、免疫等通路密切相关。为了筛选具有高诊断价值的特征基因,综合使用了7种具有代表性且在医学预测和生物信息学特征筛选中广泛应用的机器学习算法[20-22]。RF、GBM擅长处理非线性关系且抗过拟合;SVM适合高维小样本;GLM解释性强;KNN无需参数假设,适合非线性分类边界;NNET可建模复杂非线性关系;LASSO可实现特征降维与选择),不同模型互补性增强了筛选的稳健性。通过7种机器学习模型,系统筛选出CXCL10、CCL19、JCHAIN、SERPINA3和LTF共5个RF特征基因。RF涉及4个主要病理过程[23]:肾损伤触发的炎症激活和免疫细胞浸润;生长因子、趋化因子和细胞因子等促纤维化介质的释放;ECM合成与降解不平衡,肌成纤维细胞活化和肾小管间质中ECM过度积累;肾脏结构和功能的损害,肾小管萎缩和微血管减少。5个特征基因作用于RF的不同阶段。
趋化因子是炎性免疫反应过程中细胞间通讯的中枢介质,主要通过将白细胞募集并激活到炎症部位来控制炎症,然而,它们也促进血管生成和组织修复[24-25]。CXC趋化因子配体10(CXCL10)不仅通过吸引Th1细胞、自然杀伤细胞和单核细胞来引起肾脏炎症,而且还可以直接促进系膜细胞增殖和迁移、足细胞功能的维持、肾小管上皮细胞增殖[26]。CXCL10-CXCR3轴可在炎症和非炎症状态下差异调节巨噬细胞M1/M2极化[27],改变RF炎症微环境。研究发现,CXCL10与肝脏、肺脏纤维化进展呈现正相关,并可直接激活成纤维细胞的增殖,加速肾脏纤维化[28]。在UUO肾纤维化模型中,Cxcl10敲除可通过调节肾小管上皮细胞的上皮间质转化过程来减轻肾功能不全、抑制肾纤维化[29]。CXCL10被证明参与系膜增生性肾小球肾炎、快速进展性肾炎、膜增生性肾炎、狼疮性肾炎等多种人类肾脏疾病的病理过程,可能是肾脏疾病的新型治疗靶点和潜在生物标志物[26, 30]。
CCL19属于CC类趋化因子,又称MIP-3β,通过结合CCR7受体调控炎性免疫细胞的定向迁移,其功能可能受ECM微环境的间接影响[24, 31-32]。肥大细胞是重要的组织驻留免疫细胞,其激活可释放多种细胞因子和趋化因子,可能在慢性炎症间质纤维化中发挥作用[33]。肥大细胞活化可能会增加组织中趋化因子,尤其是CCL19的表达,从而诱导大量成纤维细胞迁移到特定组织[34]。CCL19促进了高糖诱导的人肾小管上皮细胞凋亡、炎症和纤维化[35]。CCL19通过抑制M2型巨噬细胞的极化,同时促进M1型巨噬细胞的极化[36],来参与纤维化进程。在糖尿病肾脏病模型中CCL19高表达,靶向抑制CCL19表达可遏制肾脏炎症和纤维化[37]。间充质干细胞也通过靶向抑制CCL19等炎症因子表达,阻断炎症细胞招募及促纤维化信号传导,从而显著延缓肾脏纤维化进程[38]。
JCHAIN是CXCL趋化因子家族新的一员[39],JCHAIN通过促进聚合物的形成来增强IgA和IgM的免疫作用,维持免疫平衡和炎症防御[40]。IgA肾病患者系膜细胞中JCHAIN表达量显著增加,这可能有助于IgA的聚合和运输,从而导致IgA在肾小球系膜中的沉积,加剧肾脏的炎症损伤[41]。JCHAIN与纤维化标志物FN1之间存在正相关关系,是糖尿病肾脏病进展的危险因素[42]。在Mincle缺陷相关肾纤维化中JCHAIN显著上调,可能通过促进慢性炎症驱动纤维化进展[43]。
纤维化的程度取决于由活化的成纤维细胞沉积的ECM与主要由炎症细胞分泌的蛋白酶分解新生瘢痕组织之间的平衡[44]。SERPINA3是丝氨酸蛋白酶抑制剂家族的重要成员,参与调节血管生成、细胞凋亡、氧化应激和炎症反应,以及保持促纤维化和抗纤维化因子的平衡[45],与本研究结果一致,与各种原发性和继发性肾小球肾炎的正常肾组织相比,活检近端肾小管染色中发现SerpinA3增加[46],在人类肾纤维化组织中,SERPINA3的表达相较于正常组织明显增加,并且其表达量与巨噬细胞、中性粒细胞等推动纤维化致病过程的核心免疫细胞群体高度相关[47]。尿SerpinA3水平与肾纤维化呈正相关,尿SerpinA3有望成为肾纤维化和炎症的有用标志物[48]。
LTF是编码乳铁蛋白的基因,属于转铁蛋白家族,可通过调节炎症、氧化应激以及ECM的合成和降解来预防纤维化[49],LTF通过抑制TGF-β1信号通路(下调PAI-1、CTGF、胶原蛋白-I表达)和激活AMPK/mTOR通路增强自噬,从而显著抑制肾纤维化的关键进程[50]。在急/慢性肾脏疾病患者的肾组织中LTF的mRNA水平显著上调,并可通过激活AMPK和抑制Akt/mTOR途径,从而抑制氧化应激引起的细胞凋亡和肾纤维化[51],乳铁蛋白修饰的氧化铈纳米颗粒也遏制了UUO模型的肾纤维化[52]。以上研究提示CXCL10、CCL19、JCHAIN、SERPINA3和LTF在RF过程中发挥重要作用,其分子机制涉及炎性细胞趋化、ECM调节等重要生物学过程。针对上述基因的靶向干预策略,可能通过调节炎症反应、ECM沉积与降解的病理平衡,为优化RF治疗范式提供新的分子靶点。
除RF的特征性基因外,GO与KEGG富集分析结果也靶向了纤维化过程中炎症、免疫等关键过程。富集分析结果提示RF发生可能与趋化因子信号通路、自然杀伤细胞(NK细胞)介导的细胞毒性、NF-κB信号通路、Th1和Th2细胞分化等通路相关。趋化因子受体参与了肾组织炎性免疫细胞的浸润、分化和存活,可加速导致纤维化发展[53]。研究表明,正常肾脏以及不同类型肾脏疾病患者的肾脏中含有大量CD56+ NK细胞,通过表达大量IFN-γ来调节RF[54]。NF-κB信号通路参与炎症反应、免疫细胞激活、细胞因子产生以及氧化应激等过程,抑制NF-κB信号传导被认为是治疗RF的潜在方法[55]。免疫浸润分析进一步证实,RF组中CD8+ T细胞、γδ T细胞浸润水平显著升高,而静息肥大细胞比例降低,提示Th1型免疫应答和细胞毒性T细胞激活可能是RF的重要驱动因素,与既往研究一致[56]。γδT细胞是在慢性炎症过程中被认为是关键的效应淋巴细胞,在人类肾纤维化组织中γδ T细胞显著增殖,表现出细胞毒性和IL-17A介导的促炎功能,定位于肾小管间质并与纤维化程度密切相关[57]。特征基因与免疫细胞的相关性分析显示,CXCL10与M1型巨噬细胞呈正相关,新的研究也发现肾小管周围巨噬细胞焦亡导致CXCL10的释放,可激活肾内成纤维细胞,加速肾脏纤维化[28]。单细胞测序结果则从空间分辨率层面揭示了特征基因的细胞异质性,Cxcl10、Jchain、Ltf、Ccl19在肾小管细胞、活化的成纤维细胞中特异性表达,损伤的肾小管上皮细胞释放炎症因子、趋化因子,是加重肾纤维化的重要成因。肾小管上皮细胞不仅被认为是损伤的部位,还被认为是促进急性肾病进展为慢性肾病的关键促炎细胞和纤维化细胞[58-59],活化的成纤维细胞则是ECM的主要来源,这些特征基因在单细胞水平上的差异表达,为靶向干预措施的开发提供了潜在作用靶点。
本研究在深入探索RF发病机制和特征基因的基础上,进一步预测了可能靶向RF特征基因的中药。RF病性总属虚实夹杂,“虚、瘀、痰、毒”历来被认为是病变过程中的核心要素[60-61],正气亏虚是RF发病的根本,痰瘀浊毒蓄积是病进之因,正虚邪积为其基本病机,病变过程中“正虚→邪积→正虚”恶性循环而逐渐加重,治疗多以固本补虚、活血化瘀、祛痰泄浊同施[62-65]。王耀献教授继承国医大师吕仁和教授提出的糖尿病肾病“肾络微型癥瘕”病机理论,将其从理论到临床不断完善,指出“肾络癥瘕”(肾纤维化)是慢性肾脏病的共通病机[66],肾络癥瘕治疗和一般活血化瘀、攻积除坚之不同,注重运用消癥散结法在RF中的运用[67],并汲取《临证指南医案》:“考仲景于劳伤血痹诸法,其通络方法,每取虫蚁迅速飞走诸灵,俾飞者升,走者降血无凝着,气可宣通,与攻积除坚,徒入脏腑者有间”之法,治疗中多用虫类搜剔、辛香通络之品[68-69],进一步丰富了RF的治疗思路。本研究预测的中药五味以辛、苦、甘为主,辛以行散、苦以燥泄、甘以补益,恰如《医碥》所载:“结者散之,客者除之,留者行之,坚者削之,咸以软之,苦以泄之,辛以开之。凡磨积之药,必用补正之药兼服,积消及半即止,过则伤正。”丹参、莪术、川芎以化瘀之功见著,亦兼消癥之效。丹参,味苦、微寒,《本草崇原》载其“主心腹邪气……寒热积聚,破癥除瘕”;莪术破血消癥,《本草便读》载其“辛苦入肝脾,破气行瘀磨积聚,温香疏脏腑,除痰散滞逐寒凝”。川芎辛温,为血中之气药,《本草备药》载:“芎、归辛温为阳,故四物取其相济以行血药之滞耳”。鳖甲、麦冬、石斛、灵芝以补虚固本为长,鳖甲可益阴、除热而散结,咸寒软坚,《神农本草经》载其“主心腹癥瘕坚积”。地龙为通络之佳品,“此物蛰于土,且所食者亦土,善窜穴下行”(《本草便读》),皆与肾络微型癥瘕的治疗之旨相符。回顾既往中药调节肾纤维化的数据挖掘[70]及CiteSpace可视化分析[71]、文献综述[6]等研究,丹参、莪术、川芎、地龙等均为治疗RF的常用药物,此外,近年来研究发现,灵芝[72]、麦冬[73]、金钗石斛[74]、鳖甲[75]也可通过多途径改善RF,与本文研究结果相契合。
本研究还根据潜在中药预测了药物的活性成分,β-谷甾醇、豆甾醇和木犀草素为排名前三的成分。植物甾醇是各种植物性食物中的类似胆固醇的生物活性化合物,具有抗氧化和抗炎作用。实验研究表明豆甾醇和β-谷甾醇的膳食补充剂可通过PINK1/Parkin通路激活线粒体自噬并调节肠道菌群,从而减轻RF[76]。木犀草素是一种天然存在于多种植物中的类黄酮,因其抗炎、抗损伤和神经保护作用而得到认可,动物实验表明木犀草素显著减轻了草酸钙诱导的肾损伤和肾纤维化,抑制脂质过氧化和线粒体损伤,肾功能得以改善[77]。木犀草素也可以通过AMPK/NLRP3/TGF-β信号通路减轻糖尿病肾病肾纤维化[78]。由此可见,β-谷甾醇、豆甾醇和木犀草素可发挥延缓肾纤维化的作用,其机制涉及炎症、线粒体、自噬、肠道菌群等,在研发成为RF的治疗药物方面具有极大的潜力。此外,本研究还对中药活性成分与特征基因进行了分子对接,结果提示这些成分与特征基因的结合能均低于-5 kcal/mol,提示其具有稳定的靶向结合潜力,其中以β-谷甾醇-LTF和木犀草素-LTF结合能最佳。这提示了中药活性成分可能自发结合RF特征基因的蛋白结构,从而发挥治疗RF的作用,为后续药理验证奠定了基础。
然而,本研究仍存在一定局限性:首先,GEO数据集缺乏临床分期信息,限制了其临床适用性,未来需整合多中心、更大样本量且包含临床分期及预后信息的病例数据进行外部验证;其次,中药预测目前仅基于数据库与分子对接,需通过动物实验验证药效及分子靶向作用;此外,特征基因的上下游调控网络及其表观遗传修饰机制仍有待深入解析。
4 结论本研究借助生物信息学方法,筛选出SERPINA3、CXCL10、JCHAIN、LTF和CCL19 5个RF特征基因,并据此构建了具有临床应用价值的列线图模型。预测的中药以活血化瘀类和补虚类居多,契合中医“虚瘀互结”病机理论,进一步预测了活性成分(例如β-谷甾醇、木犀草素等)与特征基因具有较好的结合能力,这些中药及成分能够通过多靶点机制调控免疫-纤维化网络,从而发挥治疗RF的作用。本研究不仅为RF的生物标志物筛选提供了科学依据,同时为相关新药开发开辟了新的思路与方向。
| [1] |
CHEN T K, HOENIG M P, NITSCH D, et al. Advances in the management of chronic kidney disease[J]. BMJ (Clinical Research Edition), 2023, 383: e74216. |
| [2] |
LIYANAGE T, TOYAMA T, HOCKHAM C, et al. Preva-lence of chronic kidney disease in Asia: A systematic review and analysis[J]. BMJ Global Health, 2022, 7(1): e007525. DOI:10.1136/bmjgh-2021-007525 |
| [3] |
WANG L, XU X, ZHANG M, et al. Prevalence of chronic kidney disease in China: Results from the sixth China chronic disease and risk factor surveillance[J]. JAMA Internal Medicine, 2023, 183(4): 298-310. DOI:10.1001/jamainternmed.2022.6817 |
| [4] |
LI L, FU H, LIU Y. The fibrogenic niche in kidney fibrosis: Components and mechanisms[J]. Nature Reviews Nephrology, 2022, 18(9): 545-557. DOI:10.1038/s41581-022-00590-z |
| [5] |
HUANG R, FU P, MA L. Kidney fibrosis: From mecha-nisms to therapeutic medicines[J]. Signal Transduction and Targeted Therapy, 2023, 8(1): 129. DOI:10.1038/s41392-023-01379-7 |
| [6] |
李旭萍, 马鸿斌, 马海兰. 中医药抗肾脏纤维化的研究进展[J]. 中成药, 2023, 45(12): 4036-4041. |
| [7] |
王杰, 何立群. "肾络癥瘕"理论指导下的肾纤维化治疗思路辨析[J]. 中外医学研究, 2017, 15(26): 157-159. |
| [8] |
SONG L, ZHANG W, TANG S Y, et al. Natural products in traditional Chinese medicine: Molecular mechanisms and therapeutic targets of renal fibrosis and state-of-the-art drug delivery systems[J]. Signal Transduction and Targeted Therapy, 2024, 170: 116039. |
| [9] |
LIANG L, MI Y, ZHOU S, et al. Advances in the study of key cells and signaling pathways in renal fibrosis and the interventional role of Chinese medicines[J]. Frontiers in Pharmacology, 2024, 15: 1403227. DOI:10.3389/fphar.2024.1403227 |
| [10] |
曾聪聪, 俞文秀, 王成功, 等. 新肾病1号方调控miR-199b-5p抑制肾小管上皮间充质转化改善肾纤维化的作用研究[J]. 中草药, 2024, 55(5): 1600-1608. |
| [11] |
张明慧, 冀蒙, 高静东, 等. 中药多糖抗纤维化作用机制研究进展[J]. 中草药, 2024, 55(4): 1063-1074. |
| [12] |
CLOUGH E, BARRETT T, WILHITE S E, et al. NCBI GEO: Archive for gene expression and epigenomics data sets: 23-year update[J]. Nucleic Acids Research, 2024, 52(D1): D138-D144. DOI:10.1093/nar/gkad965 |
| [13] |
RITCHIE M E, PHIPSON B, WU D, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies[J]. Nucleic Acids Research, 2015, 43(7): e47. DOI:10.1093/nar/gkv007 |
| [14] |
LANGFELDER P, HORVATH S. WGCNA: An R package for weighted correlation network analysis[J]. BMC Bioinfor-matics, 2008, 9: 559. DOI:10.1186/1471-2105-9-559 |
| [15] |
SZKLARCZYK D, GABLE A L, LYON D, et al. STRING v11:Protein-protein association networks with increased coverage, supporting functional discovery in genome -wide experimental datasets[J]. Nucleic Acids Research, 2019, 47(D1): D607-D613. DOI:10.1093/nar/gky1131 |
| [16] |
WU T, HU E, XU S, et al. clusterProfiler 4.0:A universal enrichment tool for interpreting omics data[J]. Innovation (Cambridge), 2021, 2(3): 100141. |
| [17] |
UHLÉN M, FAGERBERG L, HALLSTRÖM B M, et al. Proteomics. Tissue-based map of the human proteome[J]. Science, 2015, 347(6220): 1260419. DOI:10.1126/science.1260419 |
| [18] |
WU H, KIRITA Y, DONNELLY E L, et al. Advantages of single-nucleus over single-cell RNA sequencing of adult kidney: Rare cell types and novel cell states revealed in fibrosis[J]. Journal of the American Society of Nephrology, 2019, 30(1): 23-32. DOI:10.1681/ASN.2018090912 |
| [19] |
KLINKHAMMER B M, BOOR P. Kidney fibrosis: Emerg-ing diagnostic and therapeutic strategies[J]. Molecular As-pects of Medicine, 2023, 93: 101206. DOI:10.1016/j.mam.2023.101206 |
| [20] |
高松林, 韦柳婷, 管晓, 等. 基于生物信息学分析非酒精性脂肪性肝病的线粒体自噬相关基因及防治中药筛选[J]. 中草药, 2024, 55(19): 6655-6665. |
| [21] |
高松林, 覃雁, 张鹏, 等. 基于生物信息学分析活动期溃疡性结肠炎铜死亡相关基因及调控中药预测[J]. 中草药, 2024, 55(5): 1627-1640. |
| [22] |
康意, 靳茜, 王雪柘, 等. 基于生物信息学分析糖尿病肾病胞葬相关基因及靶向中药筛选[J]. 中国中药杂志, 2025, 50(14): 4037-4052. |
| [23] |
YAN H, XU J, XU Z, et al. Defining therapeutic targets for renal fibrosis: Exploiting the biology of pathogenesis[J]. Biomedicine & Pharmacotherapy, 2021, 143: 112115. |
| [24] |
LEI W, JIA L, WANG Z, et al. CC chemokines family in fibrosis and aging: From mechanisms to therapy[J]. Ageing Research Reviews, 2023, 87: 101900. DOI:10.1016/j.arr.2023.101900 |
| [25] |
RUSSO R C, QUESNIAUX V, RYFFEL B. Homeostatic chemokines as putative therapeutic targets in idiopathic pulmonary fibrosis[J]. Trends in Immunology, 2023, 44(12): 1014-1030. DOI:10.1016/j.it.2023.10.003 |
| [26] |
GAO J, WU L, WANG S, et al. Role of chemokine (C-X-C motif) ligand 10(CXCL10) in renal diseases[J]. Mediators of Inflammation, 2020, 2020: 6194864. |
| [27] |
GAO J, WU L, ZHAO Y, et al. Cxcl10 deficiency attenu-ates renal interstitial fibrosis through regulating epithelial-to-mesenchymal transition[J]. Experimental Cell Research, 2022, 410(2): 112965. DOI:10.1016/j.yexcr.2021.112965 |
| [28] |
XU H, WANG M, LI Y, et al. Blocking connexin 43 and its promotion of ATP release from renal tubular epithelial cells ameliorates renal fibrosis[J]. Cell Death Discovery, 2022, 13(5): 511. DOI:10.1038/s41419-022-04910-w |
| [29] |
YE Y, LI L, KANG H, et al. LAMP1 controls CXCL10-CXCR3 axis mediated inflammatory regulation of macrophage po-larization during inflammatory stimulation[J]. International Immunopharmacology, 2024, 132: 111929. DOI:10.1016/j.intimp.2024.111929 |
| [30] |
GAO J, WU L, WANG Y, et al. Knockdown of Cxcl10 in-hibits mesangial cell proliferation in murine Habu nephri-tis via ERK signaling[J]. Cellular Physiology and Biochem-istry, 2017, 42(5): 2118-2129. DOI:10.1159/000479914 |
| [31] |
LI P, LIU F, SUN L, et al. Chemokine receptor 7 promotes cell migration and adhesion in metastatic squamous cell carcinoma of the head and neck by activating integrin αvβ3[J]. International Journal of Molecular Medicine, 2011, 27(5): 679-687. |
| [32] |
毛亦佳, 范军, 赵亚, 等. 国医大师张大宁治疗糖尿病肾脏疾病经验[J]. 天津中医药大学学报, 2025, 44(12): 1057-1061. DOI:10.11656/j.issn.1673-9043.2025.12.01 |
| [33] |
CONTI P, CARAFFA A, MASTRANGELO F, et al. Critical role of inflammatory mast cell in fibrosis: Potential thera-peutic effect of IL-37[J]. Cell Proliferation, 2018, 51(5): e12475. DOI:10.1111/cpr.12475 |
| [34] |
ZHANG X, ZHAO J, LIU B, et al. Health prevention inter-vention for chronic tissue fibrosis: Based on the specific expression of CCL19/21+ mast cell[J]. Preventive Medicine, 2023, 173: 107577. DOI:10.1016/j.ypmed.2023.107577 |
| [35] |
ZHANG D, CHEN X, ZHENG D. A novel MIR503HG/miR-497-5p/CCL19 axis regulates high glucose-induced cell apoptosis, inflammation, and fibrosis in human HK-2 cells[J]. Applied Biochemistry and Biotechnology, 2022, 194(5): 2061-2076. DOI:10.1007/s12010-021-03776-6 |
| [36] |
HE Y, WANG M, LI X, et al. Targeted MIP-3β plasmid nanoparticles induce dendritic cell maturation and inhibit M2 macrophage polarisation to suppress cancer growth[J]. Biomaterials, 2020, 249: 120046. DOI:10.1016/j.biomaterials.2020.120046 |
| [37] |
SUN J, WANG J, LU W, et al. MiR-325-3p inhibits renal inflammation and fibrosis by targeting CCL19 in diabetic nephropathy[J]. Clinical and Experimental Pharmacology and Physiology, 2020, 47(11): 1850-1860. DOI:10.1111/1440-1681.13371 |
| [38] |
KIM H S, LEE J S, LEE H K, et al. Mesenchymal stem cells ameliorate renal inflammation in adriamycin-induced nephropathy[J]. Immune Network, 2019, 19(5): e36. DOI:10.4110/in.2019.19.e36 |
| [39] |
KAWASAKI K, OHTA Y, CASTRO C D, et al. The immu-noglobulin J chain is an evolutionarily co-opted chemo-kine[J]. Proceedings of the National Academy of Sciences of the United States of America, 2024, 121(3): e1975972175. |
| [40] |
SHENG J, QIANG F, HE Q, et al. IGJ depletion suppresses proliferation, inflammation, and motility of rheumatoid arthritis fibroblast-like synoviocytes via targeting NF-κB pathway[J]. International Journal of Rheumatic Diseases, 2024, 27(8): e15282. DOI:10.1111/1756-185X.15282 |
| [41] |
ZHENG Y, LU P, DENG Y, et al. Single-cell transcrip-tomics reveal immune mechanisms of the onset and pro-gression of IgA nephropathy[J]. Cell Reports, 2020, 33(12): 108525. DOI:10.1016/j.celrep.2020.108525 |
| [42] |
ZHANG Y, MENG X, LI M. Association of chaperone-me-diated autophagy with the mechanisms of vascular calcifi-cation in diabetic nephropathy[J]. Renal Failure, 2025, 47(1): 2542530. DOI:10.1080/0886022X.2025.2542530 |
| [43] |
WANG C, LV L, LIU B, et al. MO441:Dynamic role of macrophage-inducible C-type lectin in the process of AKI-to-CKD transition[J]. Nephrology Dialysis Transplantation, 2022, 37(Supplement_3): gfac55-gfac70. |
| [44] |
SUN Q, CHEN W, WU R, et al. Serine protease inhibitor, SerpinA3n, regulates cardiac remodelling after myocardial infarction[J]. Cardiovascular Research, 2024, 120(8): 943-953. DOI:10.1093/cvr/cvae075 |
| [45] |
SÁNCHEZ-NAVARRO A, GONZÁLEZ-SORIA I, CALDIÑO-BOHN R, et al. An integrative view of serpins in health and disease: The contribution of SerpinA3[J]. American Journal of Physiology-Cell Physiology, 2021, 320(1): C106-C118. |
| [46] |
CONZ P, BEVILACQUA P A, RONCO C, et al. Alpha-1-antichymotrypsin in renal biopsies[J]. Nephron, 1990, 56(4): 387-390. |
| [47] |
SUN Y C, QIU Z Z, WEN F L, et al. Revealing potential diagnostic gene biomarkers associated with immune infiltration in patients with renal fibrosis based on machine learning analysis[J]. Journal of Immunology Research, 2022, 2022: 3027200. |
| [48] |
SÁNCHEZ-NAVARRO A, MEJÍA-VILET J M, PÉREZ-VILLALVA R, et al. SerpinA3 in the early recognition of acute kidney injury to chronic kidney disease (CKD) transi-tion in the rat and its potentiality in the recognition of pa-tients with CKD[J]. Scientific Reports, 2019, 9(1): 10350. DOI:10.1038/s41598-019-46601-1 |
| [49] |
YU Y, FANG J, LI Y, et al. The novel effect and potential mechanism of lactoferrin on organ fibrosis prevention[J]. Nutrients, 2025, 17(1): 197. DOI:10.3390/nu17010197 |
| [50] |
ZAHAN M S, AHMED K A, MONI A, et al. Kidney protective potential of lactoferrin: Pharmacological insights and therapeutic advances[J]. Korean Journal of Physiology and Pharmacology, 2022, 26(1): 1-13. DOI:10.4196/kjpp.2022.26.1.1 |
| [51] |
HSU Y H, CHIU I J, LIN Y F, et al. Lactoferrin contrib-utes a renoprotective effect in acute kidney injury and early renal fibrosis[J]. Pharmaceutics, 2020, 12(5): 434. DOI:10.3390/pharmaceutics12050434 |
| [52] |
ASLAM S M, HIRAWAT R, GODUGU C. Lactoferrin-decorated cerium oxide nanoparticles prevent renal injury and fibrosis[J]. Biological Trace Element Research, 2023, 201(4): 1837-1845. DOI:10.1007/s12011-022-03284-6 |
| [53] |
WU F, SUN C, LU J. The role of chemokine receptors in renal fibrosis[J]. Reviews of Physiology, Biochemistry and Pharmacology, 2020, 177: 1-24. |
| [54] |
UCHIDA T, ITO S, KUMAGAI H, et al. Roles of natural killer T cells and natural killer cells in kidney injury[J]. International Journal of Molecular Sciences, 2019, 20(10): 2487. DOI:10.3390/ijms20102487 |
| [55] |
REN N, WANG W F, ZOU L, et al. The nuclear factor kappa B signaling pathway is a master regulator of renal fibrosis[J]. Frontiers in Pharmacology, 2023, 14: 1335094. |
| [56] |
NASTASE M V, ZENG-BROUWERS J, BECKMANN J, et al. Biglycan, a novel trigger of Th1 and Th17 cell recruit-ment into the kidney[J]. Matrix Biology, 2018, 68-69: 293-317. DOI:10.1016/j.matbio.2017.12.002 |
| [57] |
LAW B M, WILKINSON R, WANG X, et al. Effector γδ T cells in human renal fibrosis and chronic kidney disease[J]. Nephrology, Dialysis and Transplantation, 2019, 34(1): 40-48. DOI:10.1093/ndt/gfy098 |
| [58] |
LIU B C, TANG T T, LV L L. How tubular epithelial cell injury contributes to renal fibrosis[J]. Advances in Experi-mental Medicine and Biology, 2019, 1165: 233-252. |
| [59] |
QI R, YANG C. Renal tubular epithelial cells: The neglect-ed mediator of tubulointerstitial fibrosis after injury[J]. Cell Death & Disease, 2018, 9(11): 1126. |
| [60] |
郭小雷, 陈敏, 王怡. 肾间质纤维化的中医阐述与探微[J]. 辽宁中医药大学学报, 2010, 12(4): 243-245. |
| [61] |
王彩红, 高碧峰. 中医药治疗慢性肾脏病肾纤维化的机制研究进展[J]. 中医药信息, 2024, 41(11): 79-83. |
| [62] |
杨晓萍, 张冯佐, 张翼, 等. 何立群运用"扶正祛邪"理论防治肾纤维化的经验拾萃[J]. 中国民间疗法, 2022, 30(17): 23-26. |
| [63] |
石若玉, 张琳琪, 王希茜. 基于"先攻其邪, 因证施补"理论探讨攻邪扶正法治疗肾间质纤维化[J]. 中华中医药杂志, 2024, 39(4): 1723-1726. |
| [64] |
赵华. 从正虚浊伏论治肾纤维化[J]. 广州中医药大学学报, 2019, 36(7): 1098-1101. |
| [65] |
黄诗棋, 陶钰, 周柯, 等. 基于信号通路探讨活血化瘀方药治疗肾纤维化的研究进展[J]. 实用中医内科杂志, 2024, 38(2): 1-5. |
| [66] |
王耀献. 辨机论治慢性肾脏病[J]. 中国中西医结合肾病杂志, 2016, 17(10): 847-849. |
| [67] |
刘尚建, 王翚, 王耀献, 等. 肾络微型癥瘕"理论初探[J]. 中国中医基础医学杂志, 2009, 15(9): 649-650. |
| [68] |
姚宁顺, 王庆胜, 米盼盼, 等. 基于"久病在络, 气血皆塞"理论论治慢性肾脏病肾间质纤维化[J]. 中国中医基础医学杂志, 2023, 29(4): 652-655. |
| [69] |
丁海波, 吴兆东, 傅奕, 等. 浅述虫类中药在治疗肾纤维化中运用[J]. 江西中医药, 2018, 49(1): 75-77. |
| [70] |
庄晓岩, 吕静. 中药介导肾纤维化相关信号通路的研究进展及数据挖掘分析[J]. 中成药, 2025, 47(6): 1922-1931. |
| [71] |
赵盈坤, 刘兰英, 赵宗江, 等. 基于CiteSpace的中医药治疗肾纤维化作用机制的可视化分析[J]. 中国医药导报, 2023, 20(19): 139-142. |
| [72] |
张洛宁, 钱蕊, 王侨蓝, 等. 白肉灵芝调节Keap1/Nrf2/HO-1信号通路改善肾纤维化研究[J]. 现代中药研究与实践, 2024, 38(5): 14-20. |
| [73] |
江铭倩, 王利, 彭文, 等. 黄芪汤抗肾纤维化机制探讨[J]. 吉林中医药, 2016, 36(7): 733-736. |
| [74] |
樊小宝, 吴雅岚, 王晶, 等. 金钗石斛多糖对多柔比星肾病大鼠肾纤维化及PI3K/Akt/HIF-1α通路的影响[J]. 中国药师, 2019, 22(10): 1835-1840. |
| [75] |
莫欣宇, 王贤良, 侯雅竹, 等. 鳖甲及其复方制剂抗脏器纤维化研究进展[J]. 中成药, 2018, 40(1): 158-162. |
| [76] |
YANG F, GAO Y, XIE S, et al. Dietary phytosterol supple-mentation mitigates renal fibrosis via activating mitophagy and modulating the gut microbiota[J]. Food & Function, 2025, 16(6): 2316-2334. |
| [77] |
YE Z, YANG S, CHEN L, et al. Luteolin alleviated calci-um oxalate crystal induced kidney injury by inhibiting Nr4a1-mediated ferroptosis[J]. Phytomedicine, 2025, 136: 156302. DOI:10.1016/j.phymed.2024.156302 |
| [78] |
HUANG R, ZENG J, YU X, et al. Luteolin alleviates dia-betic nephropathy fibrosis involving AMPK/NLRP3/TGF-β pathway[J]. Diabetes, Metabolic Syndrome and Obesity: Targets and Therapy, 2024, 17: 2855-2867. |