 2026, Vol. 45
文章信息
- 罗子娟, 李舒宁, 王昊宇, 常惠琳, 王萌, 袁庆, 王怡, 柴丽娟
- LUO Zijuan, LI Shuning, WANG Haoyu, CHANG Huilin, WANG Meng, YUAN Qing, WANG Yi, CHAI Lijuan
- 不同剂量环磷酰胺联合复方地芬诺酯诱导血虚型便秘大鼠模型的优化研究
- Optimization of a rat model of blood-deficiency constipation induced by cyclophosphamide combined with compound diphenoxylate at different Doses
- 天津中医药大学学报, 2026, 45(5): 578-589
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(5): 578-589
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.05.09
-
文章历史
收稿日期: 2026-01-06


2. 天津中医药大学组分中药国家重点实验室, 天津 301617;
3. 方剂学教育部重点实验室, 天津 301617
2. State Key Laboratory of Component-based Chinese Medicine, Tianjin University of Traditional Chinese Medicine, Tianjin 301617, China;
3. Key Laboratory of Pharmacology of Traditional Chinese Medical Formulae, Ministry of Education, Tianjin University of Traditional Chinese Medicine, Tianjin 301617, China
便秘是一种常见的临床疾病,主要表现为排便次数减少(每周少于3次)、粪便干结及排便困难,或排便时出现显著的费力感[1]。根据中医理论,便秘的发生受到多种因素的影响,如不当饮食、情志不畅、年老体虚、瘀血阻滞及外邪侵袭等[1]。尽管便秘的主要病位为大肠,但其与脾、肝、肺、肾等脏腑功能失调密切相关[1-2]。便秘在临床上可分为热积秘、寒积秘、气滞秘、气虚秘、血虚秘、阴虚秘及阳虚秘七种证型[1]。与西医治疗方法相比,中医依据证型进行辩证治疗,常能取得显著疗效。
血虚型便秘是一种符合中医证候的便秘类型,其核心发病机制在于血液亏虚导致肠道失于濡润,进而引发传导功能障碍[3]。该证型常见于久病体虚、产后、失血或慢性消耗性疾病患者,临床表现为排便困难、粪便干结,并伴有面色苍白、唇甲色淡、头晕乏力、失眠多梦、皮肤干燥等血虚症状,舌质淡,脉细弱[3]。现代中医研究通过动物实验(如剪尾法叠加便秘药[4-5]、化学诱导法[6])和临床观察(常用方剂如养血润肠方[7]、四物汤[8])对血虚型便秘进行了探索。然而,现有动物模型在造模方法(繁杂、重复性差)和证候评价(依赖主观症状、特异性低)方面仍存在显著争议与不足。因此,建立符合中医临床证候、稳定可靠的血虚型便秘动物模型,对于深入揭示其病理基础及开发有效治疗药物至关重要。
研究表明,现有血虚型便秘动物模型通常采用复合造模策略,即联合使用便秘诱导药物[如复方地芬诺酯或洛哌丁胺(LOP)]与血虚证诱导剂[如乙酰苯肼(APH)或环磷酰胺(CTX)]。复方地芬诺酯通过抑制肠道蠕动、促进水分重吸收和减少分泌,从而引发便秘。APH对红细胞有缓慢的进行性损伤,可引起红细胞数量明显减少;而CTX则通过抑制骨髓造血功能,减少造血细胞的生成,诱发血虚状态。杜丽东等[6]课题组采用LOP联合APH和CTX建立血虚型便秘模型。该方法虽可模拟相应病证,但因较强的免疫抑制,课题组前期预实验表明动物死亡率较高,限制了该模型的广泛应用。为此,本研究优化了造模方法,采用单一血虚诱导剂CTX联合复方地芬诺酯复制血虚便秘大鼠模型,并对CTX的给药剂量进行优化。以期为建立稳定可靠的血虚型便秘动物模型提供实验依据。
值得关注的是,现代研究已揭示多种分子在肠道功能调控中扮演重要角色,如干细胞因子(SCF)通过影响肠道间充质干细胞调控肠动力[9];胆碱乙酰转移酶(ChAT)介导胆碱能神经传递,其缺失可致肠蠕动减弱[10];神经元型一氧化氮合酶(nNOS)通过合成一氧化氮(NO)影响肠道平滑肌舒缩,其失衡会导致肠蠕动缓慢[11];水通道蛋白3(AQP3)则负责肠道水分重吸收,其功能异常可致粪便干燥加重便秘[12]。这些因子(SCF,ChAT,nNOS,AQP3)的功能紊乱被认为是导致肠道动力障碍和水分代谢失调、最终引发便秘的关键环节。利用所建立的模型对这些核心分子靶点进行深入探讨,将有助于从现代生物学角度阐明血虚型便秘“血虚肠燥”的中医病机内涵。
1 材料与方法 1.1 实验动物SPF级SD雄性大鼠44只,体质量200~220 g,购自北京华阜康生物科技有限公司,合格证号:SCXK(京)2024-0003。所有大鼠饲养于天津中医药大学医学实验动物中心,温度22~25 ℃,湿度40%~50%,适应性饲养一周后进行实验。实验动物福利伦理委员批准号:TCM-LAEC2025037Z1517。
1.2 主要试剂及仪器复方地芬诺酯(国药准字H41023169,河南鼎昌药业有限公司);CTX(山西普德药业有限公司);活性炭粉(大连美伦生物有限公司);胭脂红(上海麦克林生化有限公司);4%多聚甲醛(兰杰柯科技有限公司);0.9%生理盐水(国药准字H37022337,辰欣药业股份有限公司);羧甲基纤维素钠(CMC-Na)(北京索莱宝科技有限公司);RIPA裂解液(碧云天生物技术研究所);磷酸酶抑制剂(美国MedChemExpress生物科技公司);PMSF、BCA蛋白定量试剂盒、20×TBST缓冲液、5×Tris-甘氨酸电泳缓冲液、苏木素伊红(HE)染液试剂盒、AB-PAS染液试剂盒(北京索莱宝科技有限公司);脱脂奶粉(美国BD公司);Marker、ECL化学发光底物试剂盒(翌圣生物科技上海股份有限公司);AQP3抗体(武汉爱博泰克生物科技公司);SCF抗体(Santa Cruz Biotechnology,Inc);GAPDH抗体、无蛋白快速封闭液(北京博奥森生物科技有限公司);ChAT抗体、nNOS抗体(Selleck);辣根酶标记山羊抗兔IgG(H+L)(北京中杉金桥生物技术有限公司)。
电热恒温干燥箱(天津市泰斯特仪器有限公司);全自动动物血液分析仪(Shinova Medical Co.,Ltd.);光学显微镜(Nikon);手持匀浆机(OMNI Internnational);超声波破碎仪(宁波新芝生物科技股份有限公司);高速冷冻离心机(Thermo Fisher SCIENTIFIC);快速转膜仪(金斯瑞生物科技有限公司);凝胶成像系统(GE AI 680)。
1.3 实验方法 1.3.1 药物配制1.0 mg/mL复方地芬诺酯溶液配制:参考文献[13-15]即10 mg/kg/d为实验剂量,取20片复方地芬诺酯片(规格:2.5 mg/片)于研钵中研磨成粉末,以适量0.5% CMC-Na溶液充分溶解后,定容至50 mL。
4.0 mg/mL CTX溶液配制:取CTX粉末0.2 g,溶于50 mL 0.9%生理盐水。
1.3.2 分组及模型建立24只SD雄性大鼠适应性喂养1周后,依照参照文献[6]略加修改,采用随机分组法将大鼠分为正常组(Con)、高剂量组、中剂量组、低剂量组,每组6只。除正常组外,高、中、低剂量组灌胃10 mg/kg复方地芬诺酯混悬液14 d,在此基础上,其中高剂量组在造模第2~5天腹腔注射20 mg/kg CTX,给药共4次,合计总剂量为80 mg/kg;中剂量组在造模第2~5天分别腹腔注射20、20、20、10 mg/kg,合计总剂量为70 mg/kg;低剂量组在造模第2~4天腹腔注射20 mg/kg CTX,共3次,合计总剂量为60 mg/kg,第45天注射等体积的生理盐水;正常组在造模第2~5天腹腔注射等体积的生理盐水以及灌胃等体积的0.5% CMC-Na溶液14 d,所有动物饲养期间自由饮水进食。
1.3.3 大鼠一般情况在实验过程中,每天观察并记录各组大鼠的精神状态、存活率、体质量、摄食量以及排便情况。
1.3.4 大鼠6 h、24 h粪便颗粒数、粪便湿重、粪便含水率测定每天测量并记录各组大鼠的粪便颗粒数、粪便湿质量及粪便含水率。具体操作如下,每日在大鼠笼子下方的垫料盘上放置一张白色的滤纸以收集大鼠粪便颗粒,每日收集灌胃给药后6 h内、24 h内粪便,计数总颗粒数、总湿质量,而后将粪便于恒温干燥箱中以90 ℃干燥3 h,称量粪便干质量,依据以下公式计算粪便含水率:粪便含水率(%)=(湿质量-干质量)/(湿质量)×100%。
1.3.5 大鼠粪便Bristol评分测定根据粪便形状与硬度,采用Bristol粪便评分量表对大鼠粪便性状进行评分。依据标准见表 1。
| 分 | 性状 | 健康情况 |
| 1分 | 坚果状粪便:硬邦邦的小块状,像兔子的粪便 | 非常便秘 |
| 2分 | 干硬状粪便:质地较硬,多个小块黏在一起 | 轻微便秘 |
| 3分 | 有褶皱的粪便:表面布满裂纹,呈香蕉状 | 正常 |
| 4分 | 香蕉状粪便:质地较软,表明光滑 | 正常 |
| 5分 | 软粪便:质地柔软半固体,小块的边缘呈不平滑状 | 正常 |
| 6分 | 略有形状的粪便:无固定外形的粥状 | 轻微腹泻 |
| 7分 | 水状的粪便:水状,完全不含固态物的液体 | 非常腹泻 |
参考相关文献[16],方法略做调整。收集造模最后1次24 h内粪便后,大鼠禁食不禁水12 h,灌胃1 mL 6%胭脂红溶液(3 g胭脂红溶解于50 ml超纯水),而后将大鼠置于铺有空白滤纸的新笼中喂食,同时,记录灌胃开始时间。每隔30 min观察1次是否出现红色粪便,并记录12 h内首次红色粪便排出的时间。首粒红便排出时间为从灌胃开始到大鼠首粒红便排出的总时间。
1.3.7 小肠推进率小肠推进率测定的实验流程如下[9]:首粒红便排出时间实验结束后,大鼠禁食不禁水12 h,随后灌胃给予2 mL浓度为10%的活性炭水悬浮液(5 g活性炭粉末加入50 mL纯水)。待灌胃30 min后,迅速将大鼠麻醉,腹主动脉取血,处死后完整取出胃至盲肠段的小肠,轻柔捋直并测量从幽门到盲肠的总长度、炭末从幽门开始至小肠内完全消失位置的推进距离。计算小肠推进率,计算公式如下:小肠推进率(%)=(活性炭在小肠中的推进距离/小肠总长度)×100%。
1.3.8 血常规检测大鼠腹主动脉取血样1 mL,在全自动血液分析仪中检测白细胞(WBC)、红细胞(RBC)、血红蛋白(HGB)、红细胞压积(HCT)。
1.3.9 HE染色观察大鼠结肠组织变化将结肠组织用4%多聚甲醛固定24 h,修剪后经梯度乙醇脱水、二甲苯透明处理并石蜡包埋,而后切成5 μm的组织切片贴于载玻片上,60 ℃下烘干脱蜡。脱蜡后进行梯度复水,采用苏木素染色细胞核5 min,伊红染色细胞质2 min,再脱水透明并封片。在显微镜,随机选取5个视野,观察大鼠结肠切片并拍照,ImageJ软件测量黏膜层、肌层厚度及隐窝深度。
1.3.10 AB-PAS染色观察大鼠结肠组织变化将结肠组织用4%多聚甲醛进行固定24 h,修剪组织样本后采用梯度乙醇脱水、二甲苯透明化并进行石蜡包埋,切片厚度为5 μm,通过水浴展平并贴于载玻片,随后在60 ℃下烘干。接下来,进行脱蜡复水处理,使用阿利新蓝染色液染色15 min,纯水洗涤3次,每次2 min,滴加氧化剂并氧化5 min,洗涤2次,每次2 min。接着,使用Schiff染色液染色15 min,洗涤2次,每次5 min,然后滴加酸性分化液进行分化2~3 s,并用纯水浸洗。最后用Scott蓝化液返蓝3 min,洗涤3 min,完成脱水透明化处理,使用中性树胶封固。通过光学显微镜观察,并使用Image J软件测量杯状细胞的数量,计算其平均值。
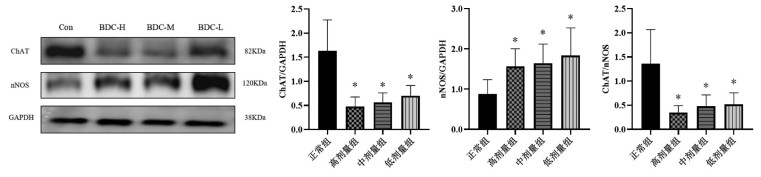
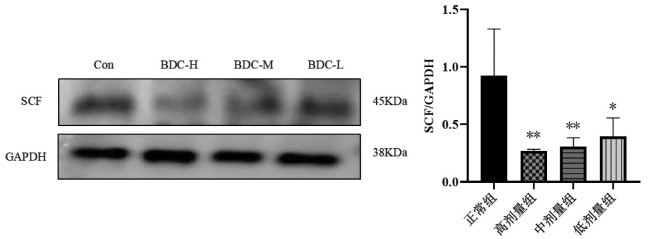
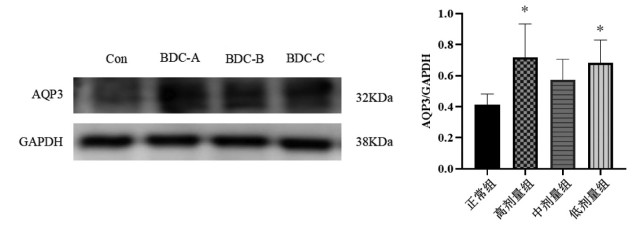
1.3.11 蛋白免疫印迹(Western Blot,WB)检测结肠组织SCF、AQP3、ChAT、nNOS的表达取各组大鼠结肠组织50 mg,PBS冲洗后,加入裂解液(PMSF+RIPA+蛋白酶抑制剂),研磨、超声匀浆结肠组织,4 ℃、12 000 r/min离心10 min,取上清液,BCA蛋白定量试剂盒检测蛋白浓度。取10 μg蛋白加入5×上样缓冲液,100 ℃煮沸10 min,制备蛋白样品,采用12%聚丙烯酰胺凝胶电泳150 V电压分离蛋白50 min,将转膜仪25 V电流转膜10 min将蛋白转移至PVDF膜,采用无蛋白快速封闭液封闭20 min,TBST洗膜3次×10 min,加SCF、AQP3、ChAT、nNOS一抗(1∶1 000),4 ℃冰箱孵育过夜,TBST洗膜3次,加山羊抗兔IgG(1∶10 000),室温摇床孵育1 h,洗膜,化学发光液显色,多功能成像分析系统成像,使用Image J软件对条带进行分析,以GAPDH为内参,计算目的蛋白相对表达。
1.3.12 模型稳定性验证基于上述实验结果,筛选出最佳造模剂量(60 mg/kg),并验证该方案的稳定性和可重复性。实验另选20只SD雄性大鼠适应性喂养一周后,采用随机分组法将大鼠分为正常组、低剂量组两组。正常组在造模第2~5天腹腔注射等体积的生理盐水以及灌胃等体积的0.5% CMC-Na溶液14 d,低剂量组灌胃10 mg/kg复方地芬诺酯混悬液14天,在造模第2~4天腹腔注射20 mg/kg CTX,合计总剂量为60 mg/kg,具体方法同上。造模成功后观察7 d,通过评估大鼠的存活率、小肠推进率和血常规等指标,验证模型的稳定性。
1.4 统计学分析采用SPSS 26.0统计软件。计量资料以均数±标准差(x±s)表示,单因素方差分析(one-way ANOVA),方差齐时组间比较采用LSD检验,并采用Bonferroni法校正多重比较,方差不齐时采用Dunnett T3检验;计数资料以n(%)表示,组间比较采用Fisher确切概率法,以P < 0.05表示差异具有统计学意义。
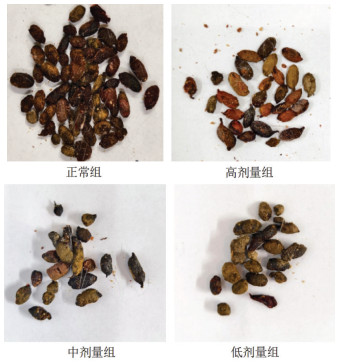
2 结果 2.1 大鼠一般状态及粪便形态的影响在建立血虚便秘模型的过程中,正常组大鼠表现出良好的精神状态,反应敏捷,被毛柔顺且光泽,食欲正常,体型健壮;血虚便秘高、中、低剂量组大鼠均出现不同程度的精神倦怠、反应迟缓,被毛稀疏且枯黄,食欲减退,口、鼻、耳、爪子苍白无血色。正常组大鼠的粪便量多且较大,质地软且光滑,而血虚便秘高、中、低剂量组粪便量少且较小,呈球状,质地干燥、坚硬并出现裂纹(见图 1)。
|
| 图 1 血虚便秘大鼠造模14 d后粪便表观图 |
| 例(%) | |||||||||||||||||||||||||||||
| 组别 | 动物数 | 存活 | |||||||||||||||||||||||||||
| 正常组 | 6 | 6(100.0) | |||||||||||||||||||||||||||
| 高剂量组 | 6 | 4(67.0) | |||||||||||||||||||||||||||
| 中剂量组 | 6 | 5(84.0) | |||||||||||||||||||||||||||
| 低剂量组 | 6 | 6(100.0) | |||||||||||||||||||||||||||
| P值 | 0.089 | ||||||||||||||||||||||||||||
在建立血虚便秘模型的过程中,正常组精神状态良好,而血虚便秘高剂量组个别大鼠在造模第12天开始出现精神萎靡、眼内眦出血、口鼻肿胀等症状,并相继在第14~15天2只死亡,存活率为67%;同样中剂量组的大鼠在第13天也出现类似症状,并在第15天1只死亡,存活率84%;低剂量组大鼠相较于高、中剂量组精神状态较好,虽与正常组相比仍表现出一定虚弱,但无死亡现象。各组大鼠死亡率之间无显著性差异(P=0.089)见表 2所示。
通过预实验初步观察,低剂量组的大鼠存活率较高且模型效果好。为了进一步验证该方法的稳定性,后续将对低剂量组(n=10)进行重复实验,并在造模14 d后继续观察大鼠的存活率,观察期为7 d。结果显示,正常组大鼠健康状况良好,存活率为100 %;血虚便秘低剂量组大鼠表现虚弱,无死亡情况,存活率同样为100 %,各组大鼠存活率之间无显著性差异(P>0.05)。见表 3所示。
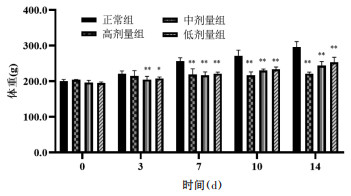
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组均在造模14 d内体质量显著下降(P < 0.05或P < 0.01),其中高剂量组在造模第7、10、14天体质量显著下降(P < 0.01),中、低剂量组在造模第3、7、10、14天体质量显著下降(P < 0.05或P < 0.01)。见图 2所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01。 图 2 血虚便秘大鼠造模对体质量的影响 |
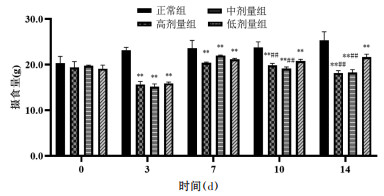
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组均在造模14 d内摄食量显著下降(P < 0.01);与低剂量组相比,高、中剂量组在造模第10、14天的摄食量显著低于低剂量组(P < 0.01)。见图 3所示。
|
| 注:与正常组比较,**P < 0.01;与低剂量组比较,##P < 0.01。 图 3 血虚便秘大鼠造模对摄食量的影响 |
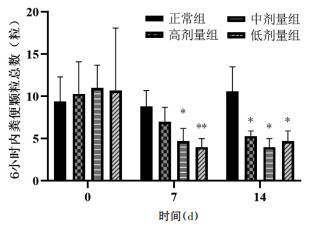
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组均在造模第7、14天的6 h粪便颗粒总数显著下降(P < 0.05或P < 0.01),其中高剂量组在造模14 d显著下降(P < 0.05),中、低剂量组的6 h内粪便颗粒数在造模第7、14天显著下降(P < 0.05或P < 0.01),以低剂量组为优。见图 4所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01。 图 4 血虚便秘大鼠造模对6 h内粪便颗粒数的影响 |
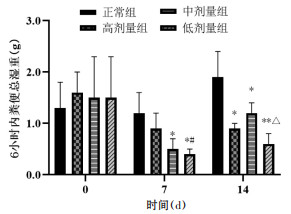
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组均在造模第7、14天的6 h粪便总湿质量均显著下降(P < 0.05或P < 0.01),其中高剂量组在造模14 d显著下降(P < 0.05),中、低剂量组的6 h内粪便总湿质量在造模第7、14天显著下降(P < 0.05或P < 0.01),以低剂量组为优;与高、中剂量组相比,低剂量组在造模第7、14天6 h粪便总湿质量显著低于高、中剂量组(P < 0.05)。见图 5所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01;与高剂量组比较,#P < 0.05;与中剂量组比较,△P < 0.05。 图 5 血虚便秘大鼠造模对6 h内粪便总湿质量的影响 |
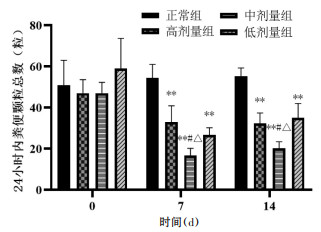
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组在造模第7、14天的24 h粪便颗粒总数均显著下降(P < 0.01),以中剂量组为优;与高、低剂量组相比,中剂量组在造模第7、14天24 h内粪便颗粒总数显著低于高、低剂量组(P < 0.05)。见图 6所示。
|
| 注:与正常组比较,**P < 0.01;与高剂量组比较,#P < 0.05;与低剂量组比较,△P < 0.05。 图 6 血虚便秘大鼠造模对24 h内粪便颗粒总数的影响 |
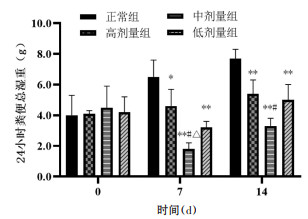
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组在造模第7、14天的24 h内粪便总湿质量均明显著下降(P < 0.05或P < 0.01),以中剂量为优;与高剂量组相比,中剂量组在造模第7、14天24 h内粪便总湿质量显著低于高剂量组(P < 0.05);与低剂量组相比,中剂量组在造模第7天24 h内粪便总湿质量显著低于低剂量组(P < 0.05)。见图 7所示。
|
| 注:与正常组比较,**P < 0.01;与高剂量组比较,#P < 0.05;与低剂量组比较,△P < 0.05。 图 7 血虚便秘大鼠造模对24 h内粪便湿质量(g)的影响 |
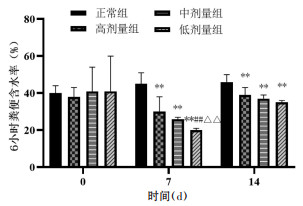
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组在造模第7、14天的6 h粪便含水率均明显下降(P < 0.05或P < 0.01),以低剂量组为优;与高、中剂量组相比,低剂量组在造模第7天的6 h粪便含水率显著低于高、中剂量组(P < 0.01)。见图 8所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01;与高剂量组比较,##P < 0.01;与中剂量组比较,△△P < 0.01。 图 8 血虚便秘大鼠造模对6 h粪便含水量的影响 |
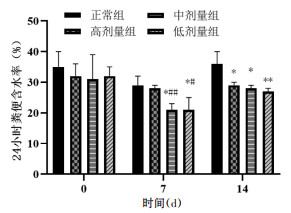
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组24 h粪便含水率显著下降(P < 0.05或P < 0.01),以低剂量为优;与高剂量组相比,中、低剂量组在造模第7天要显著低于高剂量组(P < 0.05或P < 0.01)。见图 9所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01;与高剂量组比较,#P < 0.05,##P < 0.01。 图 9 血虚便秘大鼠造模对24 h粪便含水量的影响 |
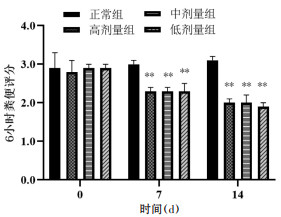
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组6 h粪便评分显著下降(P < 0.05或P < 0.01),以低剂量为优。见图 10所示。
|
| 注:与正常组比较,**P < 0.01。 图 10 血虚便秘大鼠造模对6 h粪便评分的影响 |
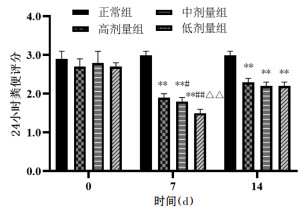
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组24 h粪便评分显著下降(P < 0.01),以低剂量为优;与高剂量组相比,中剂量组在造模第7天显著低于高剂量组(P < 0.05);与高、中剂量组相比,低剂量组在造模第7天要显著低于高、中剂量组(P < 0.01)。见图 11所示。
|
| 注:与正常组比较,**P < 0.01;与高剂量组比较,#P < 0.05,##P < 0.01;与中剂量组比较,△△P < 0.01。 图 11 血虚便秘大鼠造模对24 h粪便评分的影响 |
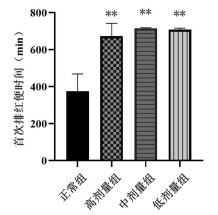
复方地芬诺酯联合CTX造模14 d后,与正常组相比,血虚便秘高、中、低组的首次排红便时间均显著延长(P < 0.01),提示血虚便秘高、中、低3组大鼠的全肠道转运功能均显著降低。见图 12所示。
|
| 注:与正常组比较,**P < 0.01。 图 12 血虚便秘大鼠造模对首次排红便时间的影响 |
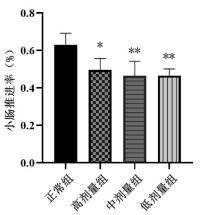
复方地芬诺酯联合CTX造模14 d后,与正常组相比,血虚便秘高、中、低3组大鼠的小肠推进率均显著降低(P < 0.05或P < 0.01)。提示,高、中、低剂量组大鼠小肠运动功能均显著降低。见图 13所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01。 图 13 血虚便秘大鼠造模对小肠推进率的影响 |
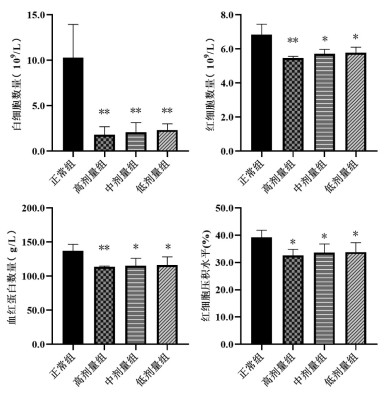
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低3组大鼠WBC、RBC、HGB及HCT均显著下降(P < 0.05或P < 0.01)。进一步对高、中、低剂量组进行比较,结果显示,随着CTX剂量的增加,大鼠WBC、RBC、HGB及HCT呈现逐步下降趋势,但组间无显著差异。见图 14所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01。 图 14 血虚便秘大鼠造模对血常规的影响 |
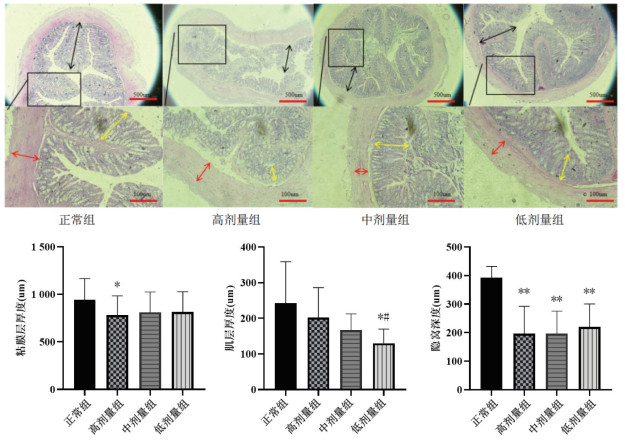
正常组大鼠结肠未见炎性细胞浸润,肌层和黏膜层结构完整,隐窝排列整齐且均匀,结构正常。血虚便秘高、中、低组结肠肌层变薄,黏膜层分离,隐窝萎缩且排列紊乱,明显变浅。与高剂量组相比,低剂量组的结肠肌层厚度显著降低(P < 0.05)。见图 15所示。
|
| 注:黑箭头,Mucosal layer thickness黏膜层厚度,红箭头,Muscle layer thickness肌层厚度,黄箭头,Crypt depth隐窝深度。与正常组比较,*P < 0.05,**P < 0.01;与高剂量组比较,#P < 0.05。 图 15 血虚便秘造模对大鼠结肠组织病理结构的影响(HE染色,×10) |
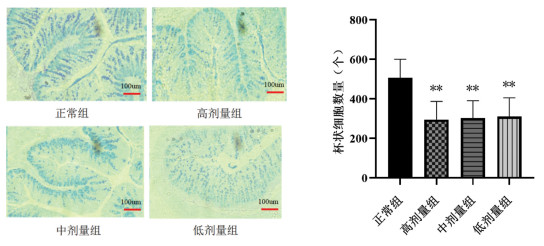
杯状细胞呈空泡状胞质内和大肠腺腺腔内酸性黏液显蓝色,中性黏液显红色。正常大鼠结肠黏膜层上皮细胞和杯状细胞形态饱满、圆润,黏液分泌丰富;血虚便秘高、中、低组的杯状细胞萎缩,数量减少,3组之间比较无显著差异。如图 16所示。
|
| 注:与正常组比较,**P < 0.01。 图 16 血虚便秘造模对大鼠结肠杯状细胞的影响(AB-PAS染色,×10) |
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低剂量组的ChAT蛋白显著下降(P < 0.05),nNOS蛋白表达显著上升(P < 0.05),同时ChAT/nNOS比值均显著降低(P < 0.05)。见图 17所示。
|
| 注:与正常组比较,*P < 0.05。 图 17 血虚便秘造模对大鼠结肠ChAT、nNOS蛋白表达的影响 |
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、中、低剂量组的SCF蛋白显著下降(P < 0.05或P < 0.01)。见图 18所示。
|
| 注:与正常组比较,*P < 0.05,**P < 0.01。 图 18 血虚便秘造模对大鼠结肠SCF蛋白表达的影响 |
复方地芬诺酯联合CTX造模后,与正常组相比,血虚便秘高、低剂量组的AQP3蛋白均显著上升(P < 0.05)。见图 19所示。
|
| 注:与正常组比较,*P < 0.05。 图 19 血虚便秘造模对大鼠结肠AQP3蛋白表达的影响 |
中医理论认为,血液不仅是滋养全身的重要物质,还具有滋润肠道的功能。血虚则肠道失于濡润,气虚则大肠传导推动乏力。两者共同作用,使肠道动力不足,排便功能受抑,从而形成便秘。血虚型便秘是中医中一种常见的便秘类型,其主要临床表现包括大便干结、排便次数减少、面色苍白、乏力、头晕眼花、心悸失眠等,舌质淡、脉细为典型体征。现有文献报道了几种常用的血虚便秘动物模型,包括盐酸吗啡联合剪尾放血模型[4]、LOP联合剪尾放血模型[5]以及LOP+APH+CTX[6]联合造模方法。血虚便秘模型的判定标准通常依据动物出现的血虚表现,如精神萎靡、倦卧少动、嗜睡、毛发枯黄无光泽、眼睛淡白无神、鼻唇色淡、活动减少;血常规检测显示WBC、RBC、HGB、HCT明显下降[6];此外,还会出现粪便数量减少、便秘症状明显,如便干、肠道传输时间延长等。放血法作为血虚便秘模型的经典手段[17],能够模拟“血的持久过度损耗,滋润和营养减弱”的病理机制。然而,该方法存在诸如大鼠尾部血管难以精确控制血量、尾部血管结构变化以及部分动物恢复过快等问题,难以稳定产生血虚症状。相比之下,化学诱导法,如APH[18]、CTX[19]均能够通过抑制骨髓造血功能,显著减少血细胞数量,从而更准确地模拟出血虚症状。复方地芬诺酯联合APH和CTX造模虽然可显著抑制骨髓造血、快速降低血细胞数量并增强血虚症状,但因其强烈的免疫抑制作用及细胞毒性也伴随严重副作用,可能导致大鼠出现精神萎靡、食欲不振、口鼻出血、呼吸道肿胀、腹泻、尿血等情况,甚至导致高死亡率,严重影响模型稳定性与动物福利。因此,本研究在参考文献[6]方法的基础上进行了优化与改良,采用单一化学诱导剂CTX联合复方地芬诺酯复制血虚便秘模型。根据体表面积等效剂量换算原则,将原有文献的小鼠CTX剂量(160 mg/kg)转换为大鼠等效剂量(80 mg/kg),并以此作为本研究的基础给药剂量。为进一步平衡模型成功率与动物福利,降低毒性干扰,本研究设置了80、70及60 mg/kg 3个剂量梯度进行实验筛选,以系统评价不同剂量CTX对血虚及便秘核心指标的影响,从而确定最优造模剂量。该方案在有效维持“血虚”与“便秘”核心病证表征的同时,显著提高了动物存活率,增强了模型的稳定性与可重复性。所建立的造模方法操作简便、表型清晰、动物耐受性良好,为血虚型便秘的病理机制探索及相关药物干预研究提供了可靠的实验基础。
实验结果显示,高、中、低剂量血虚便秘模型组大鼠在连续造模14 d后,粪便颗粒数、湿重、含水率以及便秘评分均显著降低,首次排便时间显著延长,小肠推进率明显下降。结肠组织病理学检查可见黏膜层、肌层和隐窝结构萎缩,杯状细胞数量减少,外周血常规指标(WBC、RBC、HGB、HTC)也均显著下降。杜丽东等[17]的研究同样报道,血虚便秘模型大鼠出现粪便参数下降、肠推进减缓、结肠组织萎缩及血液学指标降低等表现;刘五州等[20]采用LOP联合短尾放血法建立的血虚便秘小鼠模型也发现肠推进功能减弱及RBC、HGB显著降低,这些结果均与本研究的发现一致。
然而,杜丽东等文献中均未提及造模过程中的动物死亡情况。本研究观察到,随着CTX剂量的增加,高剂量组(80 mg/kg)和中剂量组(70 mg/kg)部分大鼠出现虚弱、食欲减退和口鼻肿胀等反应,并发生死亡影响了样本量。平丽鑫[21]曾以146 mg/kg CTX成功建立大鼠血虚模型,且未报道出现高死亡率;杨秀娟等[22]、张波[23]分别采用小鼠160、200 mg/kg CTX复制小鼠血虚模型(相当于大鼠80、100 mg/kg),且未报道出现死亡率。因此,认为本实验中高剂量组死亡率高并非单纯由CTX毒性引起,而是复方地芬诺酯与CTX协同作用所致,表现为“重度血虚证”及便秘状态的急剧恶化。该现象与血虚型便秘模型的核心特征——外周血全血细胞减少(WBC、RBC、HGB、HCT显著降低)密切相关,是模型发展至终末阶段的直接体现。尽管高剂量组样本量较小,但其存活动物的血液学指标(WBC、RBC、HGB、HCT)和便秘相关指标(如肠道推进率)与中、低剂量组变化一致,且血液学指标呈现剂量依赖性。中、低剂量组(70与60 mg/kg)在保证模型成功率的同时显著提高存活率,数据统计效力充分,为核心结论提供了主要依据,而高剂量组结果则为造模效应的上限提供了参考。
肠神经系统中的胆碱能神经元广泛分布,ChAT合成乙酰胆碱,促进胃肠动力[24]。胆碱能神经元数量及ChAT表达与肠道动力密切相关[25],减少时肠道神经肌肉传递和促肠动力激素释放不足,导致肠动力下降[10]。nNOS通过合成NO抑制肠道平滑肌收缩,导致蠕动减慢[11]。Cajal间质细胞(ICCs)在胃肠道平滑肌中起搏肠道动力[26-28],SCF作为c-kit受体的配体,其信号通路对肠道ICCs的存活、增殖及功能维持至关重要[29-30],ICC减少肠道动力降低导致便秘[31]。AQP3调节结肠水分吸收[32],AQP3表达增加可导致水分重吸收过多,引起便秘。中医“气血互根”理论来看,上述微观改变可获得阐释:血为气之母,血虚则气失载附而随之虚衰,形成“气血两虚”之态。气虚状态下,肠道动力相关因子发生网络性紊乱——SCF下调导致ICC网络完整性破坏,起搏电流减弱[31];胆碱能神经元受损,ChAT表达下降使兴奋性递质不足[25];同时抑制性神经元nNOS表达增强,从而产生过量的NO进一步抑制平滑肌收缩[11]。三者共同导致肠道推进率显著下降,表现为“气虚传导无力”。血虚致津伤,肠道失于濡润:血属阴,血虚则津液化生无源。结肠AQP3过度表达[32],使水分重吸收亢进,肠腔粪便含水量降低,形成“津亏肠燥”之态。血不养神,肠道神经-间质网络失衡:血虚不能濡养肠腑之神(即肠神经系统),导致兴奋性(ChAT)与抑制性(nNOS)神经元功能失衡,同时ICC赖以生存的SCF微环境恶化,最终使肠道运动从神经支配到间质起搏全环节出现障碍。由此可见,血虚便秘的发生本质是“血虚”为起始因素,“气虚”与“津伤”为核心病机,共同导致肠失濡润、传导无力。
本研究实验结果显示,血虚型便秘大鼠结肠组织中SCF与ChAT表达降低,而nNOS与AQP3表达显著升高。上述变化表明,兴奋性胆碱能神经功能减弱,同时抑制性神经递质生成增多,共同导致肠道平滑肌收缩力下降。结肠组织ICCs降低和AQP3过表达对肠道水分重吸收导致大鼠血虚型便秘。本研究结果与已有文献报道一致:钟峰等[33]则证实慢传输型便秘大鼠结肠SCF、c-kit蛋白表达显著降低。王小茹[34]发现便秘小鼠结肠中AQP3表达上升,而下调AQP3可缓解便秘症状。LOP诱导的便秘模型中也观察到ChAT下调与nNOS上调的现象[35]。这些结果与本研究一致,共同支持肠神经系统、ICC及水通道蛋白调控在血虚型便秘中发生紊乱的结论。
综上所述,本研究通过优化造模条件,证实10 mg/kg复方地芬诺酯联合60 mg/kg CTX可成功建立稳定的血虚型便秘大鼠模型。然而,尸检观察虽发现肝、脾等器官病变与血虚证病机吻合,却未深入探讨骨髓造血衰竭及多器官缺血缺氧等关键病理变化,限制了机制阐释的深度;同时,因未设置CTX单药对照组,难以明确其在复合模型中的独立作用及肠道效应,影响了对造模因素贡献的准确解析。今后需加强组织病理学分析并增设单药对照组,以深化机制理解并提供更充分的实验依据。
| [1] |
沈洪, 张露, 叶柏. 便秘中医诊疗专家共识意见(2017)[J]. 北京中医药, 2017, 36(9): 771-776, 784. |
| [2] |
鞠庆波. 李德新治疗便秘临床经验[J]. 世界中医药, 2010, 5(6): 400-401. |
| [3] |
吴勉华, 王新月. 中医内科学[M]. 9版. 北京: 中国中医药出版社, 2012: 237-240.
|
| [4] |
李国峰. 养血活血方治疗血虚型便秘临床研究及对便秘模型小鼠结肠ICC的影响[D]. 北京: 中国中医科学院, 2008.
|
| [5] |
罗雯鹏, 王真权, 周佳敏, 等. 生血通便颗粒对血虚肠燥型慢传输型便秘大鼠结肠肌电及Ca2+/CaM/MLCK信号通路的影响[J/OL]. 中国中医药信息杂志, 1-7[2023-12-12].
|
| [6] |
杜丽东, 任远, 吴国泰, 等. 当归对实验性血虚便秘模型小鼠结肠组织形态和黏液分泌的影响[J]. 中国应用生理学杂志, 2018, 34(4): 367-370, 378. |
| [7] |
邱剑锋, 李国栋, 袁亮, 等. 养血润肠方治疗血虚型慢性功能性便秘100例[J]. 江西中医药, 2006(11): 39-40. |
| [8] |
都万卿, 贾艳萍. 参芪四物汤治疗产后便秘83例[J]. 河南中医, 2012, 32(2): 202-203. |
| [9] |
王娜. 胃肠安丸及其提取物对慢传输型便秘的影响及机制研究[D]. 天津: 天津中医药大学, 2023.
|
| [10] |
WATTCHOW D, BROOKES S, MURPHY E, et al. Region-al variation in the neurochemical coding of the myenteric plexus of the human colon and changes in patients with slow transit constipation[J]. Neurogastroenterology and Mo-tility, 2008, 20(12): 1298-1305. DOI:10.1111/j.1365-2982.2008.01165.x |
| [11] |
SANDERS K M. Enteric inhibitory neurotransmission: starting down under[J]. Advances in Experimental Medi-cine and Biology, 2016, 891: 21-29. |
| [12] |
ZHAI X, LIN D, ZHAO Y, et al. Bacterial cellulose relieves diphenoxylate-induced constipation in rats[J]. Journal of Agricultural and Food Chemistry, 2018, 66(16): 4106-4117. DOI:10.1021/acs.jafc.8b00385 |
| [13] |
马雪巍, 唐学贵. 基于AQP3、AQP4、AQP9探讨白术对慢传输型便秘大鼠的作用机制[J]. 中华中医药学刊, 2025, 43(6): 79-84, 273-276. |
| [14] |
孙光军, 张晓雨, 林爱珍. 基于"大肠主津"探讨缩泉润肠方对老年便秘的通便效应及AQP1、AQP4的影响[J]. 时珍国医国药, 2024, 35(1): 81-83. |
| [15] |
LIU S, SUI D, FU W, et al. Laxative effects of Yangyin Tongmi Capsule on a model of diphenoxylate-induced con-stipation in mice[J]. Evidence-Based Complementary and Alternative Medicine, 2020, 2020: 1471824. DOI:10.1155/2020/1471824 |
| [16] |
ZHU X, SHEN W, WANG Y, et al. Nicotinamide adenine dinucleotide replenishment rescues colon degeneration in aged mice[J]. Signal Transduction and Targeted Therapy, 2017, 2(1): 17017. DOI:10.1038/sigtrans.2017.17 |
| [17] |
杜丽东, 牛亭惠, 吴国泰, 等. 符合中医体征的血虚便秘小鼠模型的建立与评价[J]. 中医研究, 2017, 30(3): 75-78. |
| [18] |
钱宏梁, 潘志强, 王晓敏, 等. 乙酰苯肼致血虚证模型小鼠的证候物质基础初探[J]. 中国中西医结合杂志, 2018, 38(12): 1490-1495. |
| [19] |
宋雁, 贾旭东, 崔文明, 等. 不同途径和剂量环磷酰胺建立小鼠免疫抑制模型的对比研究[J]. 中国食品卫生杂志, 2013, 25(3): 218-225. |
| [20] |
刘五州, 妥海燕, 杜丽东, 等. 当归对血虚便秘模型小鼠的治疗作用及机制研究[J]. 甘肃中医药大学学报, 2016, 33(2): 1-4. |
| [21] |
平丽鑫. 助卵汤对环磷酰胺诱导的POI大鼠性激素与LC3蛋白表达的影响[D]. 长沙: 湖南中医药大学, 2023.
|
| [22] |
杨秀娟, 杨志军, 李硕, 等. 红芪、黄芪及配伍当归对环磷酰胺所致血虚模型小鼠的干预作用[J]. 中国应用生理学杂志, 2018, 34(6): 550-554. |
| [23] |
张波. 鸡血藤黄酮对环磷酰胺所致小鼠免疫抑制的调节作用[D]. 南宁: 广西大学, 2019.
|
| [24] |
MAUTNER H G. Choline acetyltransferase[J]. CRC Criti-cal Reviews in Biochemistry, 1977, 4(4): 341-370. DOI:10.3109/10409237709105460 |
| [25] |
于清泉, 李桐, 张知云, 等. 电针敏化穴位激活迷走神经运动背核胆碱能神经元改善大鼠结肠炎性损伤[J]. 中国针灸, 2021, 41(1): 45-51. |
| [26] |
KOMURO T. Structure and organization of interstitial cells of Cajal in the gastrointestinal tract[J]. The Journal of Phys-iology, 2006, 576(Pt 3): 653-658. |
| [27] |
KIM M G, JO K, CHANG Y B, et al. Changes in the gut mi-crobiome after galacto-oligosaccharide administration in loperamide-induced constipation[J]. Journal of Personal-ized Medicine, 2020, 10(4): 161. DOI:10.3390/jpm10040161 |
| [28] |
POWLEY T L, PHILLIPS R J. Vagal intramuscular array afferents form complexes with interstitial cells of Cajal in gastrointestinal smooth muscle: Analogues of muscle spin-dle organs[J]. Neuroscience, 2011, 186: 188-200. DOI:10.1016/j.neuroscience.2011.04.036 |
| [29] |
SUNG R, KIM Y C, YUN H Y, et al. Interstitial cells of Cajal (ICC)-like c-Kit positive cells are involved in gastritis and carcinogenesis in human stomach[J]. Oncology Re-ports, 2011, 26(1): 33-40. |
| [30] |
张佩源, 唐学贵. 中医药干预慢传输型便秘鼠SCF/c-Kit及其级联信号通路研究进展[J]. 中国中医药信息杂志, 2024, 31(6): 187-192. |
| [31] |
WEDEL T, SPIEGLER J, SOELLNER S, et al. Enteric nerves and interstitial cells of Cajal are altered in patients with slow-transit constipation and megacolon[J]. Gastroen-terology, 2002, 123(5): 1459-1467. DOI:10.1053/gast.2002.36600 |
| [32] |
蒋峰, 周锦勇, 刘明浩, 等. 养阴润肠方对便秘小鼠结肠水通道蛋白3/9的影响[J]. 中国实验方剂学杂志, 2018, 24(5): 114-120. |
| [33] |
钟峰, 匡泓俊, 文钱, 等. 电针天枢、大肠俞对慢传输型便秘大鼠结肠组织ChAT、SCF和c-Kit表达的影响[J]. 中国中医药信息杂志, 2022, 29(9): 90-94. |
| [34] |
王小茹. 聚谷氨酸(γ-PGA)对小鼠慢传输型便秘的作用及机制研究[D]. 济南: 齐鲁工业大学, 2025.
|
| [35] |
WANG L Y, GHARIBANI P, et al. Regulation of enteric nervous system via sacral nerve stimulation in opioid-in-duced constipated rats[J]. Frontiers in Neuroscience, 2023, 17: 1146883. DOI:10.3389/fnins.2023.1146883 |