 2026, Vol. 45
文章信息
- 王凤仙, 李珊珊, 杜洋洋, 胡国敏, 高福顺
- WANG Fengxian, LI Shanshan, DU Yangyang, HU Guomin, GAO Fushun
- 三黄扶元汤治疗脾肾阳虚型慢性肾衰竭大鼠的分子机制
- Molecular mechanisms of Sanhuang Fuyuan Decoction in the treatment of chronic renal failure rats with spleen-kidney yang deficiency pattern based on ferroptosis
- 天津中医药大学学报, 2026, 45(5): 598-604
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(5): 598-604
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.05.11
-
文章历史
收稿日期: 2026-01-05


2. 衡水市中医医院重症医学科, 衡水 053000;
3. 衡水市桃城区疾病预防控制中心, 衡水 053000;
4. 衡水市中医医院肾病科, 衡水 053000
2. Department of Intensive Care Medicine, Hengshui Traditional Chinese Medicine Hospital, Hengshui 053000, China;
3. Taocheng District Disease Prevention and Control Center, Hengshui 053000, China;
4. Nephrology Department of Hengshui Traditional Chinese Medicine Hospital, Hengshui 053000, China
慢性肾衰竭(CRF)病理特征为肾脏功能进行性减退,最终导致代谢产物潴留、水盐及酸碱平衡失调、内分泌功能异常等。尽管现代医学已发展出血液透析、腹膜透析和肾移植等替代疗法,但这些方法存在费用昂贵、并发症多、供体短缺等问题,且无法从根本上阻止肾功能的进行性恶化[1-2]。因此,探索更有效、安全且经济的CRF治疗策略,仍然是当前医学研究的热点和难点。中医在肾脏病防治方面历史悠久,经验丰富。CRF可归为中医“关格”“癃闭”“虚劳”“水肿”等范畴,病机为本虚标实,以脾肾阳虚为本,湿浊、瘀血、毒邪为标[3]。三黄扶元汤是本课题组在临床实践中总结出的经验方,由黄连、黄芩、黄柏、熟地黄、山茱萸等中药组成,具有温补脾肾、泻浊排毒的功效。铁死亡是一种依赖铁催化的脂质过氧化反应导致细胞膜破坏的细胞死亡形式,区别于凋亡、坏死和自噬。研究表明,铁死亡与神经系统、心血管、肿瘤及肾脏等多种疾病的发生发展密切相关[4]。在肾脏疾病中,铁超载和脂质过氧化被认为是导致肾小管上皮细胞铁死亡的重要因素,进而促进肾间质纤维化,加速肾功能恶化[5]。基于以上背景,本研究拟建立脾肾阳虚型CRF大鼠模型,观察三黄扶元汤对脾肾阳虚型CRF大鼠肾功能、病理形态学及氧化应激指标的影响,并重点从铁死亡的角度,探讨三黄扶元汤治疗CRF的可能机制。
1 材料与方法 1.1 材料 1.1.1 实验动物48只SPF级雄性SD大鼠由北京维通利华公司提供,体质量为(220±20)g,动物生产许可证编号为SCXK京2023-0041。大鼠饲养于动物房,环境温度17~25 ℃、相对湿度(50±10)%,12 h循环光照,自由饲养,本研究经本院动物中心伦理委员会审核批准(审批号:2022LS03)。
1.1.2 主要药品与试剂基于现有资料,三黄扶元汤由经典方金匮肾气丸化裁而来,方药组成:黄连6 g,黄芩10 g,黄柏10 g,熟地黄15 g,山茱萸10 g,山药15 g,茯苓10 g,泽泻10 g,牡丹皮10 g。药材以7倍质量之蒸馏水浸渍30 min,待其吸水饱和。白附片先行煎煮1 h(武火煮沸,小火续煎1 h),而后纳入其余药材,武火煮沸后转文火煎煮1 h,无菌纱布滤过,收集滤液。药渣再以约7倍量水煎煮40 min,滤过。合并两次滤液,武火浓缩至原生药浓度达1.0 g/mL,储存于4 ℃冰箱备用。
腺嘌呤购自上海源叶公司;Fe2+含量检测试剂盒购自上海酶联生物公司;HE、Masson染色液购自北京索莱宝公司;兔抗长链脂肪酸辅酶A连接酶4(ACSL4)、溶质载体家族7成员11(SLC7A11)、谷胱甘肽过氧化物酶4(GPX4)、GAPDH抗体购自Abcam公司。
1.1.3 仪器ECLIPSE型显微镜购自日本Nikon公司;Western blot成像系统购自Bio-Rad公司;FQ-8A型实时荧光定量PCR仪购自杭州博日科技公司;S60数字全景扫描仪购自日本光子;M200 PRO型多功能酶标仪购自瑞士帝肯公司。
1.2 方法 1.2.1 造模分组及给药将48只大鼠分为4组,每组12只,分别为对照组、模型组、三黄扶元汤组、三黄扶元汤+铁死亡诱导剂(Erastin)组。大鼠适应性饲养一周,除了对照组外,其余组建立脾肾阳虚型CRF模型:对照组给予等量生理盐水,其余组按200 mg/(kg·d)剂量给予腺嘌呤(溶于0.9%NaCl),连续3周;大鼠出现精神萎靡、活动减少、弓背蜷缩、毛发无光泽、耳趾苍白发凉、尿频便溏等症状,表明脾肾阳虚型CRF模型构建成功[6]。实验期间,40只造模大鼠剔除死亡及造模失败4只,造模率为90%,最终各组有效样本量均为12只。模型构建成功后,大鼠三黄扶元汤灌胃剂量按体表面积[7]折算为14.0 g/kg;Erastin剂量参考文献[8]为20 mg/kg;即三黄扶元汤、三黄扶元汤+Erastin组均灌胃三黄扶元汤14.0 g/kg,三黄扶元汤+Erastin组再腹腔注射Erastin 20 mg/kg,对照组和模型组等同操作替换为生理盐水,每日1次,持续8周。
1.2.2 肾损伤指标检测给药干预结束后,代谢笼中饲养大鼠24 h,不禁食水,收集其24 h尿液,并用尿液分析仪测定尿蛋白含量;大鼠腹主动脉取血,离心(3 500 r/min,离心半径20 cm)10 min后取上清,血清肌酐(Scr)和血尿素氮(BUN)水平经生化分析仪测定。
1.2.3 HE和Masson染色各组随机选取6只大鼠处死,取肾组织,4%多聚甲醛固定,脱水后制备5 μm厚石蜡切片,随后按常规程序进行HE和Masson染色处理,HE染色观察大鼠肾脏组织病理变化;Masson染色观察大鼠肾脏纤维化程度,利用Image J软件对蓝色(胶原纤维化)面积半定量分析。
1.2.4 Fe2+及GSH含量测定各组剩余6只大鼠处死,取部分肾组织-80 ℃保存,称取部分组织进行低温研磨匀浆,低温离心(3 000 r/min,离心半径20 cm)15 min后取上清液,依照检测试剂盒指南,测定肾组织中Fe2+、GSH水平。
1.2.5 透射电镜测定取大鼠新鲜肾组织,修整至1 mm3,经电镜固定液及锇酸固定、漂洗、室温脱水,渗透包埋,切70 nm薄片,醋酸铀染,透射电镜观察线粒体结构。
1.2.6 RT-qPCR检测-80 ℃保存的肾组织mRNA被提取后,用TRIzol试剂保持其完整性,并评估其纯度和浓度。以cDNA为模板进行RT-qPCR检测。基因表达差异通过2-ΔΔCt方法确定,所用引物序列见表 1。
| 基因 | 引物序列(5'-3') | 产物长度(bp) |
| 铁调节蛋白1(IRP1) | F:GTAGGCATGTTTCGAGACTTGAG | 149 |
| R:AGTCCCTTTTCATCTCAGACACAG | ||
| 转运铁蛋白受体1(TFR1) | F:CGCGTCAAGAGCAATAACGAA | 98 |
| R:AGTGCAGGGTCCGAGGTATT | ||
| 膜铁转运蛋白(FPN) | F:TTGCTGTTCTTTGCCTTAGTTGT | 148 |
| R:CCCTTGTTTGTTCGGATGCT | ||
| GAPDH | F:CTCTCTGCTCCTCCCTGTTC | 90 |
| R:TCACACCGACCTTCACCATC |
取大鼠肾组织石蜡切片,经柠檬酸钠溶液微波炉加热沸腾10 min,室温下3%过氧化氢孵育10 min,5% BSA阻断1 h;4 ℃一抗ACSL4、SLC7A11、GPX4过夜,室温二抗2 h、DAB显色,苏木精复染,光镜观察并拍照,利用Image J软件对ACSL4、SLC7A11、GPX4阳性面积半定量分析。
1.3 统计学方法利用GraphPad Prism 8.0软件进行数据分析。数据以x±s形式展示。多组数据比较采用单因素方差分析,组间多重比较采用Tukey检验。P<0.05视为统计学显著。
2 结果 2.1 三黄扶元汤对脾肾阳虚型CRF大鼠肾功能指标的影响与对照组比较,模型组24 h尿蛋白、Scr、BUN水平升高(P<0.05);与模型组比较,三黄扶元汤组24 h尿蛋白、Scr、BUN水平降低(P<0.05);与三黄扶元汤组比较,三黄扶元汤+Erastin组24 h尿蛋白、Scr、BUN水平升高(P<0.05),见表 2。
| 组别 | 动物数 | 24 h尿蛋白(μg) | SCR (μmol/L) | BUN (mmol/L) |
| 对照组 | 12 | 55.30±5.13 | 11.89±0.78 | 9.53±1.14 |
| 模型组 | 12 | 144.07±15.09* | 48.21±3.76* | 28.53±2.38* |
| 三黄扶元汤组 | 12 | 97.24±11.85# | 19.55±1.76# | 13.44±1.05# |
| 三黄扶元汤+Erastin组 | 12 | 119.29±14.31△ | 31.19±2.59△ | 20.16±1.46△ |
| 注:与对照组比较,*P<0.05;与模型组比较,#P<0.05;与三黄扶元汤组比较,△P<0.05。 | ||||
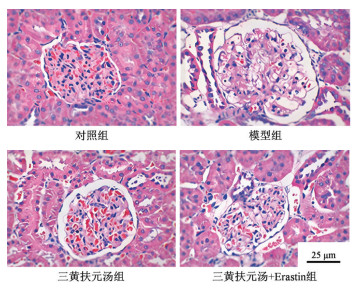
对照组肾小球结构完整,基底膜清晰,肾小管排列整齐,细胞形态正常,没有明显的炎症或损伤迹象;模型组肾小球和肾小管出现明显病变,包括肾小球肿胀、基底膜增厚、肾小管上皮细胞脱落;三黄扶元汤组肾组织的病理学损伤有所减轻;而三黄扶元汤+Erastin组的肾组织较三黄扶元汤组损伤程度进一步增加,见图 1。
|
| 图 1 各组脾肾阳虚型CRF大鼠肾组织HE染色情况(×400) |
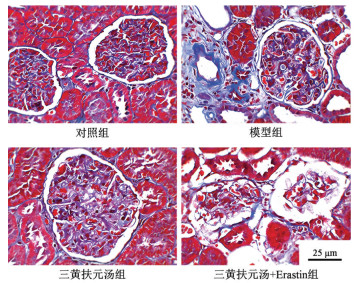
与对照组比较,模型组肾组织胶原纤维占比升高(P<0.05);与模型组比较,三黄扶元汤组肾组织胶原纤维占比降低(P<0.05);与三黄扶元汤组比较,三黄扶元汤+Erastin组肾组织胶原纤维占比升高(P<0.05),见图 2、表 3。
|
| 图 2 各组脾肾阳虚型CRF大鼠肾组织Masson染色情况(×400) |
| 组别 | 动物数 | 胶原纤维占比(%) |
| 对照组 | 6 | 7.38±1.21 |
| 模型组 | 6 | 46.62±4.66* |
| 三黄扶元汤组 | 6 | 10.98±0.89# |
| 三黄扶元汤+Erastin组 | 6 | 21.66±5.14△ |
| 注:与对照组比较,*P<0.05;与模型组比较,#P<0.05;与三黄扶元汤组比较,△P<0.05。 | ||
与对照组比较,模型组肾组织中Fe2+、MDA含量升高,GSH、SOD含量降低(P<0.05);与模型组比较,三黄扶元汤组肾组织Fe2+、MDA含量降低,GSH、SOD含量升高(P<0.05);与三黄扶元汤组比较,三黄扶元汤+Erastin组肾组织Fe2+、MDA升高,GSH、SOD含量降低(P<0.05),见表 4。
| 组别 | 动物数 | Fe2+ (nmol/mg) | GSH (μg/mg) | MDA (nmol/g) | SOD (U/g) |
| 对照组 | 6 | 0.45±0.06 | 32.93±2.58 | 1.14±0.12 | 77.57±9.85 |
| 模型组 | 6 | 1.26±0.12* | 10.28±0.45* | 2.35±0.15* | 38.48±3.67* |
| 三黄扶元汤组 | 6 | 0.50±0.06# | 27.46±1.91# | 1.52±0.09# | 61.57±6.93# |
| 三黄扶元汤+Erastin组 | 6 | 0.72±0.11△ | 18.93±1.80△ | 1.96±0.25△ | 43.29±5.68△ |
| 注:与对照组比较,*P<0.05;与模型组比较,#P<0.05;与三黄扶元汤组比较,△P<0.05。 | |||||
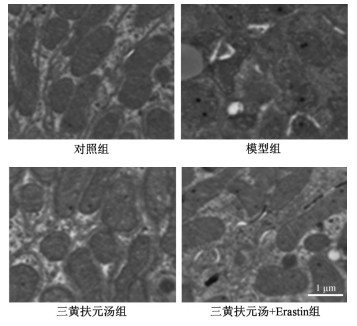
对照组肾组织中线粒体呈椭圆形,嵴结构清晰且密集,基质均匀;模型组肾组织显示出线粒体肿胀、嵴结构稀疏或断裂,基质密度增加,呈现典型铁死亡特征;三黄扶元汤组肾组织线粒体超微结构最为接近对照组,嵴结构密集且排列有序,基质均匀;而三黄扶元汤+Erastin组的肾组织较三黄扶元汤组修复效果减少,见图 3。
|
| 图 3 各组脾肾阳虚型CRF大鼠肾组织线粒体超微结构(×8 000) |
与对照组比较,模型组肾组织中IRP1、FPN mRNA水平降低,TFR1 mRNA水平升高(P<0.05);与模型组比较,三黄扶元汤组肾组织中IRP1、FPN mRNA水平升高,TFR1 mRNA水平降低(P<0.05);与三黄扶元汤组比较,三黄扶元汤+Erastin组肾组织中IRP1、FPN mRNA水平降低,TFR1 mRNA水平升高(P<0.05),见表 5。
| 组别 | 动物数 | IRP1 | TFR1 | FPN |
| 对照组 | 6 | 1.45±0.22 | 0.56±0.06 | 1.00±0.10 |
| 模型组 | 6 | 0.72±0.06* | 0.89±0.09* | 0.52±0.05* |
| 三黄扶元汤组 | 6 | 1.20±0.09# | 0.50±0.06# | 0.96±0.08# |
| 三黄扶元汤+Erastin组 | 6 | 0.96±0.12△ | 0.71±0.07△ | 0.80±0.06△ |
| 注:与对照组比较,*P<0.05;与模型组比较,#P<0.05;与三黄扶元汤组比较,△P<0.05。 | ||||
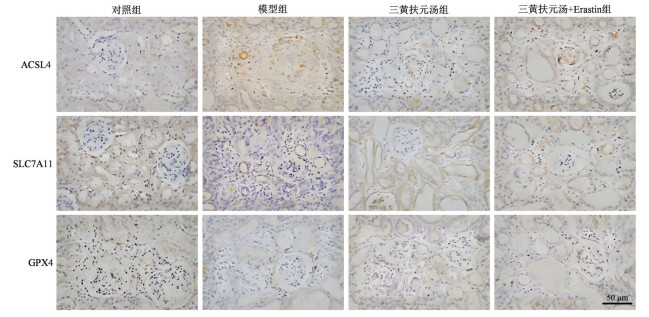
与对照组比较,模型组肾组织中ACSL4蛋白表达水平升高,SLC7A11、GPX4蛋白水平降低(P<0.05);与模型组比较,三黄扶元汤组肾组织中ACSL4蛋白表达水平降低,SLC7A11、GPX4蛋白水平升高(P<0.05);与三黄扶元汤组比较,三黄扶元汤+Erastin组肾组织中ACSL4蛋白表达水平升高,SLC7A11、GPX4蛋白水平降低(P<0.05),见图 4、表 6。
|
| 图 4 组脾肾阳虚型CRF大鼠肾组织ACSL4、SLC7A11、GPX4免疫组化染色情况(×400) |
| % | |||||||||||||||||||||||||||||
| 组别 | 动物数 | ACSL4 | SLC7A11 | GPX4 | |||||||||||||||||||||||||
| 对照组 | 6 | 15.43±2.53 | 57.99±10.54 | 45.43±5.09 | |||||||||||||||||||||||||
| 模型组 | 6 | 66.47±5.85* | 8.01±1.35* | 5.28±0.41* | |||||||||||||||||||||||||
| 三黄扶元汤组 | 6 | 10.99±0.91# | 37.80±7.63# | 37.76±4.58# | |||||||||||||||||||||||||
| 三黄扶元汤+Erastin组 | 6 | 32.16±6.84△ | 22.79±3.12△ | 24.45±4.04△ | |||||||||||||||||||||||||
| 注:与对照组比较,*P<0.05;与模型组比较,#P<0.05;与三黄扶元汤组比较,△P<0.05。 | |||||||||||||||||||||||||||||
CRF在中医里对应“虚劳”“关格”“癃闭”“水肿”“溺毒”等,《金匮要略》中所述:“虚劳病,脉大者,劳损也”,指出了脏腑亏虚是CRF的重要病机基础。病因病机方面,中医强调正虚邪实,早期脾肾虚损见神疲乏力、腰膝酸软、食欲不振、夜尿频多;后期湿浊瘀毒见浮肿、恶心、瘙痒、尿少尿闭、胸憋,甚至昏迷[3]。治疗上,中医注重辨证论治,早期扶正固本,健脾益肾;中晚期扶正祛邪并重,化湿泄浊、活血化瘀、解毒降逆等。三黄扶元汤是治疗CRF的经验方,方中黄连、黄芩、黄柏清热燥湿、泻火解毒为君;熟地黄、山茱萸、山药滋阴补肾为臣;茯苓、泽泻、丹皮利湿活血为佐使。全方以三黄清热泻火,以六味地黄丸滋补肝肾,攻补兼施,扶正祛邪,共奏清热利湿、扶正固本之效。
本研究采用腺嘌呤灌胃法,成功诱导了脾肾阳虚型CRF大鼠模型。模型组大鼠肾组织病理学损伤严重,呈现出肾小球硬化、肾小管萎缩、间质纤维化和线粒体超微结构受损,提示细胞能量代谢障碍。同时,24 h尿蛋白、Scr和BUN水平显著升高,表明肾功能受损。三黄扶元汤治疗后,这些指标均显著降低,肾组织病理损害显著减轻,胶原纤维积聚减少,表明三黄扶元汤能够有效改善CRF大鼠的肾功能,抑制肾间质纤维化,保护肾组织结构。这与既往中医方剂研究结果一致,如彭斌等[9]发现,益肾排毒方对CRF大鼠肾间质纤维化的抑制作用可能涉及其对TGF-β1/smads通路的阻断。
铁死亡作为一种依赖铁的脂质过氧化程序性细胞死亡,现已被证实与多种肾脏疾病的发病机制相关[10]。铁死亡的发生涉及铁、氨基酸及脂质代谢等多方面机制[11]。IRP1作为铁感应蛋白,通过增强TFR1表达促进铁摄取,同时抑制FPN介导的铁外排,导致铁蓄积[12]。TFR1是介导铁离子进入细胞的关键受体,其表达上调可显著增加细胞内铁离子内流;而FPN作为铁外排的主要转运蛋白,其表达下调则进一步阻碍铁离子的细胞外释放,共同加剧铁超载[13]。同时,GSH的耗竭使抗氧化系统失衡,促进铁死亡[14]。在本研究中,模型组肾组织Fe2+、MDA水平升高,GSH、SOD水平降低,线粒体超微结构受损,同时铁代谢相关蛋白IRP1、TFR1、FPN的表达也发生异常变化,提示肾组织Fe2+水平升高与IRP1、TFR1 mRNA上调及FPN mRNA下调密切相关。经三黄扶元汤治疗后,上述基因表达趋势及指标均逆转,表明该汤剂能通过调控IRP1-TFR1/FPN轴改善铁代谢紊乱,抑制CRF大鼠肾组织铁超载诱导的铁死亡。这与之前的研究相符,三黄扶元汤中的黄连、黄芩、黄柏因其抗氧化和清除自由基的特性[15-17],可能通过调节铁代谢,减少脂质过氧化,从而抑制铁死亡的发生。
在铁死亡过程中,ACSL4、SLC7A11和GPX4发挥着关键作用。ACSL4能够催化花生四烯酸生成花生四烯酸酯,促进脂质过氧化[18];SLC7A11通过转运胱氨酸和谷氨酸来影响谷胱甘肽的合成[19];GPX4是谷胱甘肽过氧化物酶,能够减少脂质过氧化物的积累[20]。本研究结果显示,CRF大鼠肾组织ACSL4表达上调,SLC7A11和GPX4表达下调,提示铁死亡通路被激活。而三黄扶元汤治疗后,ACSL4表达下调,SLC7A11和GPX4表达上调,表明三黄扶元汤能够调控ACSL4/SLC7A11/GPX4通路,抑制铁死亡的发生。这与三黄扶元汤的抗氧化、调节铁代谢的作用相一致,进一步证实了其抑制铁死亡的机制。为了进一步验证铁死亡在CRF发病机制中的作用,本研究使用了铁死亡诱导剂Erastin。结果显示,Erastin能够减轻三黄扶元汤的治疗效果,表现为肾组织病理损伤加重,肾功能指标恶化,铁死亡相关指标异常变化。这进一步证实了铁死亡参与了CRF的发病机制,同时也表明三黄扶元汤的治疗作用至少部分是通过抑制铁死亡实现的。
然而,本研究也存在一定的局限性。首先,本研究仅在动物模型中进行,其结果是否适用于临床患者尚需进一步验证。其次,本研究仅探讨了三黄扶元汤对铁死亡相关指标的影响,其对其他细胞死亡方式(如凋亡、坏死等)的作用机制尚不清楚。此外,本研究未深入探讨三黄扶元汤中各成分的具体作用及相互作用关系,具体药效的物质基础还有待深入研究。最后,本研究仅通过终点观察探讨了三黄扶元汤对铁死亡的抑制作用,未能动态揭示铁死亡抑制与肾功能改善之间的时序关系,因此尚无法明确两者间的因果联系。
综上所述,本研究基于铁死亡探讨了三黄扶元汤治疗脾肾阳虚型CRF大鼠的机制,发现三黄扶元汤可有效提高肾功能,抑制肾组织病理损伤及铁死亡,其作用机制可能与改善肾组织铁代谢及调控ACSL4/SLC7A11/GPX4通路相关。总之,三黄扶元汤的配伍体现了中医“标本兼治”的智慧。慢性肾衰竭虽以脾肾阳虚为本,但阳虚日久,浊毒内蕴,易郁而化热,形成本虚标实之证。因此,方中“扶元”之药温补脾肾以治其本,而“三黄”则清热泻火以解其标。此寒热并用、攻补兼施的配伍,既避免了单纯温补助邪之弊,又通过清除浊毒为肾脏修复创造了有利条件,这可能是其有效抑制铁死亡、改善肾功能的方剂学基础。
| [1] |
辛家东, 杨可新, 张法荣, 等. 胰岛素生长因子-1与慢性肾衰竭的发病机制与治疗进展[J]. 中国中西医结合肾病杂志, 2022, 23(5): 459-461. |
| [2] |
徐炜翔, 王中亮, 李阳, 等. 上海市静安区区级医院慢性肾衰竭患者住院总费用负担评价[J]. 中国卫生资源, 2023, 26(6): 693-697. |
| [3] |
陶钰, 黄诗棋, 林钶尧, 等. 中医药内服治疗慢性肾衰竭机制研究进展[J]. 辽宁中医药大学学报, 2023, 25(7): 69-72. |
| [4] |
JIANG X, STOCKWELL B R, CONRAD M. Ferroptosis: Mechanisms, biology and role in disease[J]. Nature Reviews Molecular Cell Biology, 2021, 22(4): 266-282. |
| [5] |
LI S, HAN Q, LIU C, et al. Role of ferroptosis in chronic kidney disease[J]. Cell Communication and Signaling, 2024, 22(1): 113. DOI:10.1186/s12964-023-01422-8 |
| [6] |
刘晓, 李悦, 李静茹, 等. 不同剂量腺嘌呤建立脾肾阳虚型慢性肾衰竭大鼠模型的实验研究[J]. 新疆医科大学学报, 2024, 47(2): 197-202. |
| [7] |
黄继汉, 黄晓晖, 陈志扬, 等. 药理试验中动物间和动物与人体间的等效剂量换算[J]. 中国临床药理学与治疗学, 2004, 9(9): 1069-1072. |
| [8] |
马涛, 黄玮玮, 李志华, 等. Nrf2/GPX4介导的铁死亡在脓毒症肠道损伤中的作用[J]. 中华危重病急救医学, 2023, 35(11): 1188-1194. |
| [9] |
彭斌, 冯雪, 冯立, 等. 益肾排毒方调节TGF-β1/smads信号通路对慢性肾衰竭大鼠肾间质纤维化的影响[J]. 中国老年学杂志, 2025, 45(9): 2196-2201. |
| [10] |
WANG H, LIU D, ZHENG B, et al. Emerging role of fer-roptosis in diabetic kidney disease: Molecular mechanisms and therapeutic opportunities[J]. International Journal of Biological Sciences, 2023, 19(9): 2678-2694. DOI:10.7150/ijbs.81892 |
| [11] |
TANG D, CHEN X, KANG R, et al. Ferroptosis: molecular mechanisms and health implications[J]. Cell Research, 2021, 31(2): 107-125. DOI:10.1038/s41422-020-00441-1 |
| [12] |
REQUENA-IBÁÑEZ J A, SANTOS-GALLEGO C G, RO-DRIGUEZ-CORDERO A, et al. Prolyl hydroxylase inhibi-tors: A new opportunity in renal and myocardial protec-tion[J]. Cardiovascular Drugs and Therapy, 2022, 36(6): 1187-1196. DOI:10.1007/s10557-021-07257-0 |
| [13] |
JIAYI H, ZIYUAN T, TIANHUA X, et al. Copper homeo-stasis in chronic kidney disease and its crosstalk with fer-roptosis[J]. Pharmacological Research, 2024, 202: 107139. DOI:10.1016/j.phrs.2024.107139 |
| [14] |
SU L, ZHANG J, GOMEZ H, et al. Mitochondria ROS and mitophagy in acute kidney injury[J]. Autophagy, 2023, 19(2): 401-414. DOI:10.1080/15548627.2022.2084862 |
| [15] |
梁圆圆, 杨彬, 于亚东, 等. 黄连素通过Nrf2/HO-1通路对过氧化氢诱导的人晶状体上皮细胞-B3损伤的影响[J]. 郑州大学学报(医学版), 2025, 60(2): 153-158. |
| [16] |
郗有丽, 王敏, 周杰. 黄芩苷调控氧化应激治疗糖尿病肾病[J]. 生物加工过程, 2024, 22(4): 419-425. |
| [17] |
杜威, 王栗莉, 李曼. 黄柏碱通过调控Semaphorin3A抑制脂多糖诱导的肾小管上皮细胞氧化应激和凋亡[J]. 中国中西医结合肾病杂志, 2022, 23(7): 613-616. |
| [18] |
ZHANG H L, HU B X, LI Z L, et al. PKCβⅡ phosphory-lates ACSL4 to amplify lipid peroxidation to induce ferrop-tosis[J]. Nature Cell Biology, 2022, 24(1): 88-98. DOI:10.1038/s41556-021-00818-3 |
| [19] |
YE Y, CHEN A, LI L, et al. Repression of the antiporter SLC7A11/glutathione/glutathione peroxidase 4 axis drives ferroptosis of vascular smooth muscle cells to facilitate vascular calcification[J]. Kidney International, 2022, 102(6): 1259-1275. |
| [20] |
XU C, SUN S, JOHNSON T, et al. The glutathione peroxi-dase GPX4 prevents lipid peroxidation and ferroptosis to sustain Treg cell activation and suppression of antitumor immunity[J]. Cell Reports, 2021, 35(11): 109235. DOI:10.1016/j.celrep.2021.109235 |