 2026, Vol. 45
文章信息
- 林阳, 石悦暄, 王继达, 王莹, 武岳, 李梦琪, 樊泽至, 李星萍, 边育红
- LIN Yang, SHI Yuexuan, WANG Jida, WANG Ying, WU Yue, LI Mengqi, FAN Zezhi, LI Xingping, BIAN Yuhong
- 中医药通过多维调控干细胞发挥抗抑郁效应的研究进展
- Multidimensional regulatory mechanisms of traditional Chinese medicine in stem cell modulation for antidepressant efficacy: research progress
- 天津中医药大学学报, 2026, 45(5): 621-629
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(5): 621-629
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.05.14
-
文章历史
收稿日期: 2025-12-20


2. 潍坊市人民医院, 潍坊 261000;
3. 山东第二医科大学, 潍坊 261000
2. Weifang People's Hospital, Weifang 261000, China;
3. Shandong Second Medical University, Weifang 261000, China
精神健康日益成为不可忽视的公共卫生问题,抑郁症是其影响全球健康问题的主要原因之一[1]。抑郁症的主要症状包括持续性的情绪低落、兴趣丧失、睡眠障碍、食欲不振和自杀倾向等,它严重限制着患者的心理健康、社会功能活动,并降低生活质量[2]。根据世卫组织报道,全球约有2.8亿人患有抑郁症,其发病率为3.8%,其中女性发病率比男性高约50%,半数以上抑郁症患者可能面临疾病复发[3]。此外,社会对抑郁症的认知不足、对精神疾病的污名化以及医疗资源的不均衡分布,是导致实际发病率可能被低估的重要原因,许多患者未能及时获得准确的诊断和治疗。随着生活节奏加快,伴随着各类压力因素的增加,抑郁症的发病几率正逐年递增,权威研究数据[4]显示,1990—2021年间,中国抑郁症病例数从3 440万增至5 310万,增幅达惊人的54%。
西医常采用抗抑郁药物治疗,如选择性5-羟色胺再摄取抑制剂(SSRI)与去甲肾上腺素再摄取抑制剂(SNRI),但抗抑郁药物需要长期使用,且部分人群对药物有依赖性,停药后难以戒断。目前一线抗抑郁药物(如SSRI、SNRI)虽可短期缓解症状,但长期应用可能抑制成骨细胞活性[5],增加骨质流失风险[6]。传统中医通过复方汤剂、针灸、五音疗法等方式对本病予辨证论治,虽不良反应较少,但作用机制尚未完全阐明,疗效稳定性不足[7]。因此,安全、有效的抗抑郁方案亟待解决。
目前的主流观点认为本病发病机制与神经炎症、单胺类神经递质失调、神经营养因子缺乏、突触可塑性变化及下丘脑-垂体-肾上腺(HPA)轴紊乱等因素有关[8]。干细胞能够促神经功能恢复[9],调节神经递质水平[10],发挥抗炎作用[11],在抗抑郁领域具有显著潜力。本文将对干细胞抗抑郁的相关研究进行综述,分析其抗抑郁的作用机制,并探讨中医药调控干细胞抗抑郁的可行性。
1 干细胞的定义、特性干细胞是一类具有自我更新能力、多向分化潜能和低免疫原性的特殊细胞群,是细胞疗法的理想选择。依据不同发育阶段,可分为胚胎干细胞、成体干细胞;基于分化潜能,可分为全能干细胞、多能干细胞及专能干细胞等。现代分离技术已相对成熟,能够实现从胎盘[12]、脐带[13]、骨髓[14]、脂肪[15]、血液[16]等人体多种组织中提取干细胞。
干细胞的核心价值在于动态维持组织稳态及修复损伤[17]。研究[18]指出成熟神经干细胞不仅参与神经生成,还能化生血管;Ivanovska等[19]提出骨髓间充质干细胞(BMSCs)能分化为脂肪细胞和成骨细胞,通过动态平衡“成骨-成脂”,以维持骨稳态;Wang等[20]发现造血干细胞(HSCs)中的特定亚群参与淋巴细胞的分化,能协助参与免疫稳态的调节。
不仅如此,干细胞还具有归巢特性,可趋向性迁移至受损组织和器官,通过分泌相关因子或自身分化为补充细胞,修复受损区域。Weng等[21]通过体外注射间充质干细胞(MSCs),有效改善了慢性移植物抗宿主病;Shahror等[22]将MSCs注射到创伤性脑损伤小鼠的脑中,增强了细胞的归巢能力并促进海马神经发生;Huang团队[23]将基因编辑技术与干细胞疗法结合,通过在MSCs中过表达CCR2,增强了其向缺血性脑组织的趋向性迁移,显著提高疗效。
除细胞本身发挥的作用外,干细胞亦能通过旁分泌效应发挥作用。Lai等[24]发现间充质干细胞外泌体(MSCs-exo)能够抑制Th17细胞并改善Treg表型,帮助缓解病理损伤;Nakazaki团队[25]通过给脊髓损伤大鼠静脉注射间充质干细胞外囊泡(MSCs-EVs),发现大鼠的身体机能显著改善,认为可能与MSCs-EVs参与调控肿瘤坏死因子(TNF)-α、白细胞介素(IL)-6等通路相关;Li等[26]证实了来源于骨髓的MSC-EVs能通过抑制caveolin-1/CD147/VEGFR2/MMP通路,维持血脑屏障完整性,从而缓解卒中后脑神经功能的进一步恶化。
2 抑郁症的病理机制解析抑郁症的病理机制是多维度交互的,核心环节在于神经发生抑制、单胺类神经递质紊乱及神经炎症。相关研究认为HPA轴异常[27]、大脑结构和功能变化[28]及环境因素(如童年创伤)介导的表观遗传改变[29]等,均可能通过介导上述环节,推动疾病进程。
2.1 抑制神经发生哺乳动物成熟神经发生的过程始于神经干细胞(NSCs),这些细胞存在于神经系统中,能够分化为神经元、血管、胶质细胞等多种细胞类型[30]。新的神经元主要在大脑的两个区域产生:海马体齿状回(DG)和侧脑室室下区(SVZ)。NSCs在这些区域被激活后,将进入细胞周期,逐渐分化为新的神经元或神经支持细胞[31-32]。
抑郁症的病理进展与大脑神经元功能或结构的异常有关。研究[33]发现,抑郁大鼠血清中存在着小胶质细胞外泌体,它能够阻碍NSCs的增殖以及成年海马神经发生(AHN),最终导致大脑中新神经元发生的数量减少。AHN是维持大脑认知功能的关键环节,NSCs数量和活性的变化,将对脑功能和信号传导产生影响[34]。抑郁状态下,NSCs的活性降低,AHN受阻,不仅延长了神经细胞的增殖周期,降低其更新效率,还将进一步影响大脑的正常活动,使情感、记忆、认知等功能出现异常。最终,抑郁症患者的专注能力和社会效率进一步下降,异常的思维和行为模式也将对其生活和工作再度造成困扰,加重精神负担,形成恶性闭环,这也是抑郁症难以治愈且复发率高的原因之一。
2.2 神经递质紊乱单胺类神经递质系统失衡与抑郁症的发展密切相关。5-羟色胺(5-HT)、多巴胺(DA)及去甲肾上腺素(NE)等代谢或释放异常,可通过影响突触传递效率、受体信号转导及神经环路动态平衡等机制,共同介导抑郁症的病理进程[35]。
5-HT在神经发育及突触可塑性中起关键作用,其合成不足或能效降低与抑郁症高度相关。IL-1和TNF-α已被证明可通过激活p38丝裂原活化蛋白激酶(MAPK),显著增加大鼠脑突触体中5-羟色胺的再摄取,导致突触间隙中的5-HT含量降低[36]。SSRI通过阻断突触前膜5-HT转运体的再摄取以增加突触间隙5-HT浓度,是指南推荐的一线抗抑郁药物[37]。Liu等[38]证实NE能够激活海马体的前体细胞群,促进神经发生,但NE与神经发生之间并不是简单的线性关系,二者的平衡还存在着复杂的调节机制。慢性应激的环境下,富含NE能神经元的蓝斑核(LC)将异常活跃,引起NE的过度释放,这会反过来作用于LC,形成自我增强的正反馈环路,进一步引起神经递质失衡及诱发神经炎症损伤[39-40]。此外,多巴胺能通路异常也与抑郁症密切相关,抑郁症患者D2受体和多巴胺转运蛋白(DAT)表达同时增加,可能进一步抑制DA的释放[41]。DA能够促进海马神经元中的蛋白合成[42],应用多巴胺受体激动剂[43]或深部脑刺激[44],均能通过上调多巴胺能神经元活性的方式,起到改善抑郁症状的作用。
2.3 神经炎症炎症介导着包括神经、精神类疾病在内的诸多疾病进程。相关研究[45]指出炎症因子是诱发抑郁症的主导性因素,影响着高达27%的重度抑郁症患者。神经炎症能够诱发抑郁症状,抑郁症本身也会加剧神经炎症,两者相互影响,恶性循环[46]。慢性社会压力是神经炎症和抑郁症两者共同的风险因素,压力状态将引起HPA轴的异常活化[47],导致人体内的皮质醇、糖皮质激素升高,进而诱发体内炎症反应,使得脑内犬尿氨酸含量增高、5-HT减少、神经营养支持减少及神经胶质元素流失[48-49]。促炎因子也将进一步使HPA轴敏感化,引起过度的应激反应,导致大脑中与情绪调节相关的结构和功能发生变化,出现如海马体萎缩[50]、锥体树突回缩[51]、神经元异常自噬和凋亡[52]等情况,并影响脑源性神经营养因子(BDNF)水平,阻碍NSCs增殖分化,抑制AHN,最终加重抑郁症状。不仅中枢炎症与抑郁症存在相互影响的关系,外周炎症亦能通过破坏血脑屏障、诱导免疫细胞及激活神经胶质细胞等多种途径介导炎症和抑郁的交互网络[45]。当机体长期处于慢性应激状态下,其免疫系统功能水平降低,外周炎症细胞和炎性因子将持续影响中枢神经系统,导致抑郁症的疾病周期延长。因此,消除神经炎症对遏制抑郁症的进展具有重大意义。
3 干细胞抗抑郁的多维机制研究干细胞具有强大的再生分化潜力,能参与受损组织修复,其多靶点调控机制,在抗抑郁领域有着独特的优势。
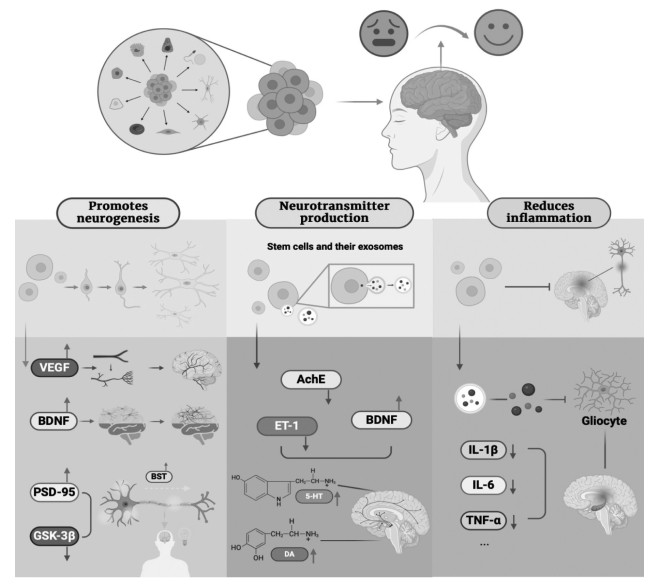
3.1 促进神经发生干细胞拥有神经元分化潜能,可通过转化为神经元或神经支持细胞促进大脑区域的修复和再生,这一过程将有可能改善抑郁症状。研究[53]发现,移植NSCs可修复中风后大脑中损伤的神经回路并帮助恢复神经功能,彰显了干细胞修复神经的潜力。丁亚兵等[9]通过脑室移植NSCs,增加了试验鼠脑内的血管内皮生长因子(VEGF)及BDNF等神经营养因子的表达,帮助脑神经损伤恢复;蔡黎黎[54]通过脑立体定位向海马区注射来源于脐带的MSCs-exo以改善抑郁状态,注射组的神经元轴突长度出现了显著的延长,且海马神经元的凋亡数量大幅减少;Dehghanian等[55]发现MSCs可促进保护性神经营养因子、细胞生长因子及抗凋亡因子等表达;干细胞通过旁分泌效应还能够上调突触后致密蛋白(PSD)-95表达并下调糖原合成酶激酶(GSK)-3β,从而改善基础突触传递(BST)情况,帮助受体恢复认知、记忆功能[56]。
综合以上,合理应用干细胞进行干预,能够促发新神经元并修复已受损神经元,这对抑郁症患者大脑内受损神经功能的重建及恢复具有积极意义。
3.2 恢复神经递质稳态抑郁症的发生与单胺类神经递质系统失衡密切相关,尤其是5-HT、DA和NE在中枢神经系统的水平异常[39]。干细胞及其外泌体可通过旁分泌途径调控单胺类递质合成与释放。潘成利等[57]发现海马干细胞来源的外泌体能够明显降低真性胆碱酯酶(AchE)、内皮素(ET)-1,促进脑组织、血管的生成,显著升高5-HT水平,并诱导神经元分化,帮助突触发育及行使传递功能[10];安治国等[58]亦观察到BMSCs外泌体能通过促进BDNF表达,以帮助5-HT、DA的合成与分泌;此外,MSCs分泌物可诱导多巴胺能神经元增殖、分化,提示其作为多巴胺能系统调节剂的潜力[59]。
干细胞及其介导的旁分泌在调节神经递质合成、释放和再摄取等方面均能发挥良好作用,但目前仍需要深入探究其相关机制,明确通路,从而制定抑郁症新治疗方案及辅助策略。
3.3 免疫微环境重塑与炎症抑制干细胞及其分泌物因具备抗炎、营养神经及促神经发生等功效,是抑郁症治疗研究的焦点。Liu等[11]向小鼠侧脑室注射BMSCs外泌体,注射组结果显示小鼠海马体中异常的胶质细胞的活性受到了抑制,且炎症因子IL-1β、IL-6等表达逐渐降低,认知能力得到了显著改善,推测可能与神经炎症水平的降低及BDNF的上调相关;Hardy等[60]发现BMSCs中的mRNA-146a能够降低核因子κB(NF-κB)水平,进而抑制由胶质细胞引发的神经炎症;另有研究[61]发现,通过尾静脉输注MSCs,能够改善小鼠外周血液和中枢神经的炎症状况,有趣的是,在实验过程中小鼠的肠道菌群及胆汁酸表达水平也得到了改善,研究者认为其结果可能受益于与脑-肠轴相关机制;Huang等[62]指出MSCs能通过细胞间接触和旁分泌作用,利用细胞因子、趋化因子、信号分子和生长因子等生物活性物质,调控T细胞[63]、B细胞[64]、巨噬细胞[65]等免疫细胞,从而实现免疫调节,抑制炎症反应。
综上所述,干细胞及其旁分泌效应在抗氧化应激、抑制炎症因子释放、调节免疫细胞活性等方面展现出积极效应,能够有效减轻神经炎症,对抑郁症的治疗具有重要意义。干细胞抗抑郁的相关机制通路可参考图 1。
|
| 图 1 干细胞治疗抑郁症的研究进展 |
肾精分先天与后天两部分,《灵枢·经脉》言:“人始生,先成精,精成而脑髓生”,先天肾精是脑髓生成之源。后天肾精为经肾受纳的“五脏六腑之精”,系生命源物质,可补充先天,充养脑髓,系肾主藏精之体现[66]。现代研究[67]证实,干细胞具有稳态维持机制,平时以静息态存在,在神经发生过程中,这一特性能帮助延缓细胞消耗,起到保护NSCs的作用,是肾精“封藏固守”特性在细胞层面的映射。肾精作为生命活动的物质基础,还具有化生脑髓、荣养元神的核心功能,与机体生长发育息息相关,其“化生滋养”功能体现于细胞层面,便与干细胞再生修复及多向分化潜能的功能相耦合。
相关研究[68]基于近十五年文献的系统分析,对抑郁症的中医证候进行总结归纳,认为本病的主要病位与肾、肝、心、脾相关,揭示“肾”为抑郁症的关键病位之一。中医认为肾主骨,可藏精生髓,髓通于脑,脑为元神之府,司精神活动,故脑髓充盈则神机受养,神清志明。“五神脏”理论中亦提出“肾主藏志”,认为肾气强弱与个体情志活动存在联系。肾精亏虚将导致“髓海不足”,而抑郁患者大脑海马区的神经发生障碍、神经干细胞活性降低等表现,正是此病机的直观体现。
干细胞疗法具有多维度抗抑郁效应,其“系统修复”的特性与中医“整体调控”“多靶点干预”理念高度契合。中医药调控干细胞抗抑郁的本质是“补肾填精,充养髓海”,通过激活干细胞进行内源性修复,以逆转抑郁症的病理进程。同时,现有的研究表明,中医药在“赋能”干细胞的同时,还能作用于抑郁症相关的神经内分泌-免疫网络,通过发挥抗炎、营养等效应,改善内部微环境,创造有利于干细胞激活、归巢、增殖、分化的条件。传统中医药观念与干细胞抗抑郁理论互补协同,构成了独特的抗抑郁新思路。
4.2 中药单体的协同调控 4.2.1 补肾填精,促发神经国医大师阮士怡教授治病求本,提出“抑郁之源”在于肾的核心病机理论,强调滋肾阴、益肾气、养精血,方能直击抑郁根源[69]。这一观点与抑郁症脑结构性损伤的修复机制高度契合,NSCs的增殖与分化,是重建大脑受损神经环路的关键。基于中医“肾-精-髓-脑”理论,补肾益精,可为NSCs的活化提供物质基础。人参是大补元气之要药,有益肾补虚、健脑益智之效,其活性成分人参皂苷可激活磷脂酰肌醇-3-激酶(PI3K)-蛋白激酶B(Akt)信号级联反应,促进神经干细胞增殖及单胺类神经递质生成,在改善抑郁症状的同时,增加机体活力[70-71];蛇床子能温肾助阳,其有效成分蛇床子素能够显著提高NSCs活力,加速受损神经元修复[72];淫羊藿有补肾壮阳之功,相关研究证实,淫羊藿苷能诱导胚胎干细胞定向分化为NSCs[73]、增加突触后密度蛋白(PSD)-95表达以保护神经元突触[74],还能通过上调细胞周期蛋白D1、p21,发挥促NSCs增殖的作用[75];肉苁蓉能补肾阳、益精血,研究[76]发现,肉苁蓉总苷能促BMSCs增殖并上调细胞内的巢蛋白(Nestin),助力其向神经细胞样细胞分化的定向诱导。
4.2.2 疏肝解郁,递质稳态肝藏魂,是五脏精气化生情志活动的关键,“肝主疏泄”理论揭示了肝气调达对情志的核心调控作用。现代研究[77]发现过氧化物酶体增殖物激活受体(PPAR)-α/成纤维细胞生长因子(FGF)-21/成纤维细胞生长因子受体(FGFR)-1通路,认为二者通过调节神经内分泌功能而关联互通,构成“肝脑交互”的分子桥梁,传统理论提供有力佐证。相关研究[78]发现肝主疏泄与神经递质之间存在关联,肝气郁结将会导致的单胺类递质5-HT、DA、NE等异常,不仅能直接介导抑郁情绪,通过病理微环境交互,还将影响NSCs功能,形成双向恶性循环。中药通过疏肝解郁,调畅气机,可重建递质稳态,从而逆转这一病理级联反应。
柴胡是疏肝要药,研究[79]表明,柴胡皂苷通过上调前额叶-海马神经环路中5-HT、DA、NE及BDNF表达,能够激活海马区NSCs增殖信号,这不仅增强多巴胺能神经元突触传递效率,更关键性地阻断“递质缺乏-神经再生障碍-递质合成受阻”的负反馈环路;当归可补血养肝,入肝经,研究[80]发现,当归中的阿魏酸能调节5-HT能神经系统,一方面可逆转慢性应激诱导的抑郁行为,另一方面能促进抗氧化屏障建立,减轻氧化应激对NSCs的损伤,帮助维持微环境稳态;郁金同样归属肝经,有行气解郁之效,研究[81]表明,郁金中的β-谷甾醇能够显著提高5-HT及NE水平,缓解抑郁表型。
4.2.3 泻火除烦,抑制炎症火郁致烦是抑郁症关键病机,根据临床常见证型可再分实火、虚火。长期情志不舒可致肝气郁结,郁久化火可上扰心神,此为肝实火;若肝郁乘脾,可致脾失健运而生痰,痰火互结,热扰心神,此为痰实火;郁热日久,煎灼伤阴,可致虚火上炎,心神失养,此为阴虚火。因此,清泻养阴,泻火除烦是中医治疗抑郁症的核心治法之一。抑郁患者长期处于慢性应激的状态,与传统医学的郁火内生观念不谋而合。脑内的促炎微环境是抑郁症发生及神经功能损伤的重要病理基础。中药具有良好的抗炎、抗氧化效应,可参与干细胞支持性微环境的重塑。
姜黄素是中药中重要的抗炎成分,能够有效抑制TNF-α诱导的神经炎症级联反应,减轻炎性外泌体对NSCs的毒性作用,并且姜黄素还能激活环磷酸腺苷cAMP信号通路,诱导干细胞向神经谱系定向分化;丹参酮ⅡA能抑制炎性细胞活化与氧化应激,具有多靶点神经保护作用,能显著提高NSCs在炎症微环境中的存活率;灵芝多糖能够抑制NF-κB所介导的炎症反应,保护神经突触结构及功能完整性。中药具有良好的泻火抗炎效应,能够缓解炎性微环境对NSCs增殖分化的抑制,助力神经修复。
4.3 中药复方的多靶点调控中药复方遵循“君臣佐使”配伍原则,通过多组分协同激活不同信号通路,实现对抑郁症神经修复、炎症抑制及递质稳态的多重调控。
逍遥散是抗抑郁经典名方,为肝气郁结证首选,有疏肝解郁,养血健脾之功。现代研究揭示了其多重抗抑郁效应:逍遥散不仅能改善海马神经发生,还能调控肠道菌群,改善脑-肠、HPA双轴异常。若气郁化火,则对应配伍丹皮、栀子,形成丹栀逍遥散,能够显著下调TNF-α、IL-6等炎症因子水平、恢复5-HT等神经递质稳态,全方位助力抗炎治郁。参葛补肾胶囊能够有效缓解抑郁行为,适用于气阴两虚证,成方以太子参为君,葛根、淫羊藿为臣,三药共奏益气、养阴、补肾之功。临床研究中,药物组抗抑郁效果显著,有效率高达85%。参葛补肾胶囊能够通过上调PI3K、细胞外调节蛋白激酶(Erk)和哺乳动物雷帕霉素靶蛋白(mTOR),促进神经干细胞生存;提高神经调节蛋白(Gap)-43和Nestin表达,保护神经元及突触;还能够有效改善5-HT合成限速酶色氨酸羟化酶Ⅱ(TPH2)的表达,显著上调脑内5-HT表达情况,抑制抑郁表现。
中医药通过多组分、多通路协同作用,不仅直接调控干细胞命运,更从整体上通过协同改善“脑-肠”轴紊乱、HPA轴亢进等抑郁相关病理基础,为干细胞存续提供稳定的内源性支持。这种多维度干预模式,起到了“标本兼治”的作用,既契合中医“君臣佐使”的配伍思想,又为干细胞疗法的协同调控贡献新策略,中西结合,有望突破抗抑郁治疗的现有瓶颈。
5 总结与展望抑郁症的病理网络涉及神经再生障碍、递质代谢失衡与神经炎症级联的恶性循环。传统单靶点治疗模式面临根本性挑战。干细胞疗法通过多维度干预神经发生、纠正单胺类递质紊乱、抑制炎症风暴,为抑郁症治疗提供新方向。未来的技术革新可在以下方向进行聚焦,推动干细胞疗法向更为精细的智能医学转型:单细胞测序指导的干细胞亚型筛选,以解析神经分化与免疫调节的功能异质性;工程化修饰干细胞外泌体,为无细胞治疗提供跨越伦理瓶颈的新路径;优化干细胞预处理方案,提高临床疗效。
中西医协同治疗体系彰显独特优势,基于“肾精-脑髓-干细胞”理论耦合,调控激活内源性神经再生,其多靶点抗炎-抗氧化效应与干细胞疗法相辅相成,共同改善微环境。未来需进一步开展标准化临床试验,深入解析“中医药-干细胞”互作的分子网络,助力中医药调控干细胞命运通路的关键分子解码。同时推动个体化精准治疗体系建立,为抑郁症患者提供更加安全稳定、切实可行的治疗策略。通过多学科交叉创新为抑郁症治疗提供全新的生物学解决方案,干细胞的应用有望实现从缓解症状向根治疾病的跨越。
| [1] |
COVID-19 MENTAL DISORDERS COLLABORATORS. Global prevalence and burden of depressive and anxiety disorders in 204 countries and territories in 2020 due to the COVID-19 pandemic[J]. Lancet, 2021, 398(10312): 1700-1712. DOI:10.1016/S0140-6736(21)02143-7 |
| [2] |
MCCARRON R M, SHAPIRO B, RAWLES J, et al. Depression[J]. Annals of Internal Medicine, 2021, 174(5): ITC65-ITC80. DOI:10.7326/AITC202105180 |
| [3] |
SLAVICH G M, IRWIN M R. From stress to inflammation and major depressive disorder: A social signal transduction theory of depression[J]. Psychological Bulletin, 2014, 140(3): 774-815. DOI:10.1037/a0035302 |
| [4] |
TIAN W, YAN G, XIONG S, et al. Burden of depressive and anxiety disorders in China and its provinces, 1990-2021:Findings from the Global Burden of Disease Study 2021[J]. British Journal of Psychiatry, 2025, 1-11. |
| [5] |
FRAHER D, HODGE J M, COLLIER F M, et al. Citalo-pram and sertraline exposure compromises embryonic bone development[J]. Molecular Psychiatry, 2016, 21(5): 656-664. DOI:10.1038/mp.2015.135 |
| [6] |
HODGE J M, WANG Y, BERK M, et al. Selective serotonin reuptake inhibitors inhibit human osteoclast and osteoblast formation and function[J]. Biological Psychiatry, 2013, 74(1): 32-39. DOI:10.1016/j.biopsych.2012.11.003 |
| [7] |
杨丽英, 王艳丽, 郝立炜. 中医药治疗抑郁症的研究进展[J]. 中医药信息, 2022, 39(7): 86-89. |
| [8] |
朱亦诚. 柴胡加龙骨牡蛎汤治疗肝郁气滞型抑郁症临床疗效观察[D]. 南京: 南京中医药大学, 2020.
|
| [9] |
丁亚兵, 赵媛, 张凡, 等. 人神经干细胞移植对缺氧缺血性脑病大鼠神经修复的研究[J]. 华中科技大学学报(医学版), 2024, 53(3): 287-294. |
| [10] |
FERREIRA J P S, ALBUQUERQUE H M T, CARDOSO S M, et al. Dual-target compounds for Alzheimer's disease: Natural and synthetic AChE and BACE -1 dual-inhibitors and their structure-activity relationship(SAR)[J]. European Journal of Medicinal Chemistry, 2021, 221: 113492. DOI:10.1016/j.ejmech.2021.113492 |
| [11] |
LIU S, FAN M, XU J X, et al. Exosomes derived from bone-marrow mesenchymal stem cells alleviate cognitive decline in AD-like mice by improving BDNF-related neuropatholo-gy[J]. Journal of Neuroinflammation, 2022, 19(1): 35. DOI:10.1186/s12974-022-02393-2 |
| [12] |
AMIRI F T, JAFARI A, AHMADI F, et al. Exosomes derived from human placental mesenchymal stem cells in combination with hyperbaric oxygen therapy enhance neuroregeneration in a rat model of sciatic nerve crush injury[J]. Regenerative Therapy, 2024, 28: 30-40. |
| [13] |
CAO H, YUE L, SHAO J, et al. Small extracellular vesi-cles derived from umbilical cord mesenchymal stem cells alleviate radiation-induced cardiac organoid injury[J]. Stem Cell Research & Therapy, 2024, 15(1): 493. |
| [14] |
WAKALE S, CHEN Y, SUN A R, et al. Comparative analy-sis of the therapeutic potential of extracellular vesicles se-creted by aged and young bone marrow-derived mesenchy-mal stem cells in osteoarthritis pathogenesis[J]. Cell Prolif-eration, 2024, e13776. |
| [15] |
THANDAR M, ZHANG L, YANG X, et al. Proteomics analysis revealed the therapeutic role of adipose-derived mesenchymal stem cells on radiation-induced colorectal fi-brosis in rats[J]. Biomedicine & Pharmacotherapy, 2024, 182: 117763. |
| [16] |
CHEN D, ZENG R, TENG G, et al. Menstrual blood-derived mesenchymal stem cells attenuate inflammation and improve the mortality of acute liver failure combining with A2AR agonist in mice[J]. Journal of Gastroenterology and Hepatology, 2021, 36(9): 2619-2627. DOI:10.1111/jgh.15493 |
| [17] |
VAN DEURSEN J M. The role of senescent cells in ageing[J]. Nature, 2014, 509(7501): 439-446. DOI:10.1038/nature13193 |
| [18] |
LI M, NISHIMURA H, SEKIGUCHI H, et al. Concurrent vasculogenesis and neurogenesis from adult neural stem cells[J]. Circulation Research, 2009, 105(9): 860-868. DOI:10.1161/CIRCRESAHA.109.199299 |
| [19] |
IVANOVSKA I L, SHIN J W, SWIFT J, et al. Stem cell mechanobiology: Diverse lessons from bone marrow[J]. Trends in Cell Biology, 2015, 25(9): 523-532. DOI:10.1016/j.tcb.2015.04.003 |
| [20] |
WANG J, GEIGER H, RUDOLPH K L. Immunoaging in-duced by hematopoietic stem cell aging[J]. Current Opin-ion in Immunology, 2011, 23(4): 532-536. DOI:10.1016/j.coi.2011.05.004 |
| [21] |
WENG J Y, DU X, GENG S X, et al. Mesenchymal stem cell as salvage treatment for refractory chronic GVHD[J]. Bone Marrow Transplantation, 2010, 45(12): 1732-1740. DOI:10.1038/bmt.2010.195 |
| [22] |
SHAHROR R A, LINARES G R, WANG Y, et al. Trans-plantation of mesenchymal stem cells overexpressing fibro-blast growth factor 21 facilitates cognitive recovery and en-hances neurogenesis in a mouse model of traumatic brain injury[J]. Journal of Neurotrauma, 2020, 37(1): 14-26. DOI:10.1089/neu.2019.6422 |
| [23] |
HUANG Y, WANG J, CAI J, et al. Targeted homing of CCR2-overexpressing mesenchymal stromal cells to isch-emic brain enhances post-stroke recovery partially through PRDX4-mediated blood-brain barrier preservation[J]. Ther-anostics, 2018, 8(21): 5929-5944. |
| [24] |
LAI P, CHEN X, GUO L, et al. A potent immunomodulatory role of exosomes derived from mesenchymal stromal cells in preventing cGVHD[J]. Journal of Hematology & Oncology, 2018, 11(1): 135. |
| [25] |
NAKAZAKI M, LANKFORD K L, YAMAMOTO H, et al. Human mesenchymal stem-derived extracellular vesicles improve body growth and motor function following severe spinal cord injury in rat[J]. Clinical and Translational Med-icine, 2023, 13(6): e1284. DOI:10.1002/ctm2.1284 |
| [26] |
LI Y, CHEN J, QUAN X, et al. Extracellular vesicles maintain blood-brain barrier integrity by the suppression of caveolin-1/CD147/VEGFR2/MMP pathway after ischemic stroke[J]. International Journal of Nanomedicine, 2024, 19: 1451-1467. DOI:10.2147/IJN.S444009 |
| [27] |
GOODYER I M, HERBERT J, TAMPLIN A, et al. Recent life events, cortisol, dehydroepiandrosterone and the onset of major depression in high-risk adolescents[J]. British Journal of Psychiatry, 2000, 177: 499-504. DOI:10.1192/bjp.177.6.499 |
| [28] |
SCHMAAL L, HIBAR D P, SÄMANN P G, et al. Cortical abnormalities in adults and adolescents with major depres-sion based on brain scans from 20 cohorts worldwide in the ENIGMA Major Depressive Disorder Working Group[J]. Molecular Psychiatry, 2017, 22(6): 900-909. DOI:10.1038/mp.2016.60 |
| [29] |
ENTRINGER S, BUSS C, WADHWA P D. Prenatal stress, development, health and disease risk: A psychobiological perspective-2015 Curt Richter Award Paper[J]. Psychoneu-roendocrinology, 2015, 62: 366-375. DOI:10.1016/j.psyneuen.2015.08.019 |
| [30] |
朱晓峰. 神经干细胞基础及应用[M]. 北京: 科学出版社, 2005.
|
| [31] |
KOT M, NEGLUR P K, PIETRASZEWSKA A, et al. Boost-ing neurogenesis in the adult hippocampus using antide-pressants and mesenchymal stem cells[J]. Cells, 2022, 11(20): 3234. DOI:10.3390/cells11203234 |
| [32] |
CECCARELLI M, D'ANDREA G, MICHELI L, et al. Interaction between neurogenic stimuli and the gene network controlling the activation of stem cells of the adult neurogenic niches, in physiological and pathological conditions[J]. Frontiers in Cell and Developmental Biology, 2020, 8: 211. DOI:10.3389/fcell.2020.00211 |
| [33] |
樊翠琴. 小胶质细胞外泌体调控抑郁症大鼠海马神经发生的机制研究[D]. 济南: 山东大学, 2023.
|
| [34] |
CULIG L, CHU X, BOHR V A. Neurogenesis in aging and age-related neurodegenerative diseases[J]. Ageing Research Reviews, 2022, 78: 101636. DOI:10.1016/j.arr.2022.101636 |
| [35] |
MALHI G S, MANN J J. Depression[J]. Lancet, 2018, 392(10161): 2299-2312. DOI:10.1016/S0140-6736(18)31948-2 |
| [36] |
ZHU C B, BLAKELY R D, HEWLETT W A. The proin-flammatory cytokines interleukin-1beta and tumor necrosis factor-alpha activate serotonin transporters[J]. Neuropsy-chopharmacology, 2006, 31(10): 2121-2131. DOI:10.1038/sj.npp.1301029 |
| [37] |
TAHIRI J, MIAN M, AFTAN F, et al. Serotonin in depres-sion and Alzheimer's disease: Focus on SSRI's beneficial effects[J]. Ageing Research Reviews, 2024, 101: 102537. DOI:10.1016/j.arr.2024.102537 |
| [38] |
LIU Q, LUO X, LIANG Z, et al. Coordination between cir-cadian neural circuit and intracellular molecular clock en-sures rhythmic activation of adult neural stem cells[J]. Pro-ceedings of the National Academy of Sciences of the Unit-ed States of America, 2024, 121(8): e2318030121. |
| [39] |
LIN Y, SARFRAZ Y, JENSEN A, et al. Participation of brainstem monoaminergic nuclei in behavioral depression[J]. Pharmacology Biochemistry and Behavior, 2011, 100(2): 330-339. DOI:10.1016/j.pbb.2011.08.021 |
| [40] |
HUANG H, DENG X, WANG Y, et al. Chronic stress exac-erbates cerebral amyloid angiopathy through promoting neutrophil extracellular traps formation[J]. Advanced Sci-ence, 2024, 11(43): e2404096. |
| [41] |
MALLET J, GORWOOD P, LE STRAT Y, et al. Major de-pressive disorder(MDD) and schizophrenia: Addressing unmet needs with partial agonists at the D2 receptor: A review[J]. International Journal of Neuropsychopharmacology, 2019, 22(10): 651-664. DOI:10.1093/ijnp/pyz043 |
| [42] |
FUCHSBERGER T, STOCKWELL I, WOODS M, et al. Do-pamine increases protein synthesis in hippocampal neu-rons enabling dopamine-dependent LTP[J]. eLife, 2025, 13: RP100822. DOI:10.7554/eLife.100822 |
| [43] |
ZHAO Z W, WANG Y C, CHEN P C, et al. Dopamine D1 receptor agonist alleviates post-weaning isolation-induced neuroinflammation and depression-like behaviors in female mice[J]. Behavioral and Brain Functions, 2025, 21(1): 6. DOI:10.1186/s12993-025-00269-y |
| [44] |
SONG N, LIU Z, GAO Y, et al. NAc-DBS corrects depression-like behaviors in CUMS mouse model via disinhibition of DA neurons in the VTA[J]. Molecular Psychiatry, 2024, 29(5): 1550-1566. DOI:10.1038/s41380-024-02476-x |
| [45] |
HASSAMAL S. Chronic stress, neuroinflammation, and de-pression: An overview of pathophysiological mechanisms and emerging anti-inflammatories[J]. Frontiers in Psychia-try, 2023, 14: 1130989. DOI:10.3389/fpsyt.2023.1130989 |
| [46] |
SĂLCUDEAN A, POPOVICI R A, PITIC D E, et al. Unrav-eling the complex interplay between neuroinflammation and depression: A comprehensive review[J]. International Journal of Molecular Sciences, 2025, 26(4): 1645. DOI:10.3390/ijms26041645 |
| [47] |
BULLICH S, DELCOURTE S, HADDJERI N, et al. Learned immobility produces enduring impairment of the HPA axis reactivity in mice without replicating the broad spectrum of depressive-like phenotype[J]. International Journal of Molecular Sciences, 2021, 22(2): 937. DOI:10.3390/ijms22020937 |
| [48] |
WILLETTE A A, PAPPAS C, HOTH N, et al. Inflamma-tion, negative affect, and amyloid burden in Alzheimer's disease: Insights from the kynurenine pathway[J]. Brain, Behavior, and Immunity, 2021, 95: 216-225. DOI:10.1016/j.bbi.2021.03.019 |
| [49] |
MILLER A H, MALETIC V, RAISON C L. Inflammation and its discontents: The role of cytokines in the pathophysi-ology of major depression[J]. Biological Psychiatry, 2009, 65(9): 732-741. DOI:10.1016/j.biopsych.2008.11.029 |
| [50] |
DUMAN R S, NAKAGAWA S, MALBERG J. Regulation of adult neurogenesis by antidepressant treatment[J]. Neu-ropsychopharmacology, 2001, 25(6): 836-844. DOI:10.1016/S0893-133X(01)00358-X |
| [51] |
FRODL T, AMICO F. Is there an association between pe-ripheral immune markers and structural/functional neuro-imaging findings?[J]. Progress in Neuro-Psychopharmacolo-gy and Biological Psychiatry, 2014, 48: 295-303. DOI:10.1016/j.pnpbp.2012.12.013 |
| [52] |
CHOE S, JEONG H, CHOI J, et al. Chronic unpredictable stress induces autophagic death of adult hippocampal neural stem cells[J]. Molecular Brain, 2024, 17(1): 31. DOI:10.1186/s13041-024-01105-6 |
| [53] |
WANG P, LIU P, DING Y, et al. Transplantation of human neural stem cells repairs neural circuits and restores neurological function in the stroke-injured brain[J]. Neural Regeneration Research, 2024. |
| [54] |
蔡黎黎. 人脐带间充质干细胞外泌体通过介导海马小胶质细胞极化改善CUMS小鼠抑郁样行为[D]. 镇江: 江苏大学, 2023.
|
| [55] |
DEHGHANIAN F, SOLTANI Z, KHAKSARI M. Can mesenchymal stem cells act multipotential in traumatic brain injury?[J]. Journal of Molecular Neuroscience, 2020, 70(5): 677-688. |
| [56] |
GHOBADI M, AKBARI S, BAYAT M, et al. Gens PSD-95 and GSK-3β expression improved by hair follicular stem cells-conditioned medium enhances synaptic transmission and cognitive abilities in the rat model of vascular dementia[J]. Brain and Behavior, 2024, 14(1): e3351. DOI:10.1002/brb3.3351 |
| [57] |
潘成利, 黄月萍, 薛炬君, 等. 海马干细胞来源的外泌体对血管性痴呆大鼠学习记忆能力改善作用及其机制探究[J]. 中国实验诊断学, 2024, 28(4): 463-468. |
| [58] |
安治国, 那仁, 徐斌. 骨髓间充质干细胞来源的外泌体对应激性抑郁症模型大鼠的治疗作用及机制研究[J]. 脑与神经疾病杂志, 2020, 28(12): 732-737. |
| [59] |
TEIXEIRA F G, VILAÇA-FARIA H, DOMINGUES A V, et al. Preclinical comparison of stem cells secretome and levodopa application in a 6-hydroxydopamine rat model of Parkinson's disease[J]. Cells, 2020, 9(2): 315. |
| [60] |
HARDY J, SELKOE D J. The amyloid hypothesis of Alzheimer's disease: Progress and problems on the road to therapeutics[J]. Science, 2002, 297(5580): 353-356. DOI:10.1126/science.1072994 |
| [61] |
张晓霜. 间充质干细胞治疗阿尔茨海默病小鼠模型的机制研究[D]. 北京: 北京科技大学, 2024.
|
| [62] |
HUANG Y, WU Q, TAM P K H. Immunomodulatory mechanisms of mesenchymal stem cells and their potential clinical applications[J]. International Journal of Molecular Sciences, 2022, 23(17): 10023. |
| [63] |
DUFFY M M, RITTER T, CEREDIG R, et al. Mesenchy-mal stem cell effects on T-cell effector pathways[J]. Stem Cell Research & Therapy, 2011, 2(4): 34. |
| [64] |
FRANÇUESA M, HOOGDUIJN M J, BESTARD O, et al. Immunomodulatory effect of mesenchymal stem cells on B cells[J]. Frontiers in Immunology, 2012, 3: 212. |
| [65] |
FRANÇOIS M, ROMIEU-MOUREZ R, LI M, et al. Human MSC suppression correlates with cytokine induction of in-doleamine 2, 3-dioxygenase and bystander M2 macrophage differentiation[J]. Molecular Therapy, 2012, 20(1): 187-195. |
| [66] |
曹利华, 王笑雨, 王真真, 等. 从补肾阳中药防治抑郁症机制探析"肾通于脑"理论实质[J]. 中华中医药杂志, 2022, 37(12): 6889-6894. |
| [67] |
HARRIS L, RIGO P, STIEHL T, et al. Coordinated changes in cellular behavior ensure the lifelong maintenance of the hippocampal stem cell population[J]. Cell Stem Cell, 2021, 28(5): 863-876. |
| [68] |
李阳, 赵钟辉, 于姚, 等. 近15年文献抑郁症中医证候及证候要素分布特点分析[J]. 辽宁中医杂志, 2025, 52(6): 1-4. |
| [69] |
程坤, 张军平, 阮士怡. 阮士怡辨治老年抑郁症经验[J]. 中医杂志, 2017, 58(13): 1097-1099. |
| [70] |
王国丽. 人参皂苷Rb1对抑郁CUMS模型小鼠的保护作用及其BDNF-TrkB信号转导机制的研究[D]. 长春: 吉林农业大学, 2018.
|
| [71] |
李英博, 赵香琴, 姜英虹, 等. 基因芯片技术筛选人参皂苷Rg1促进人神经干细胞增殖的分子靶点研究[J]. 中国中药杂志, 2013, 38(16): 2701-2705. |
| [72] |
姚璎珈, 胡昱, 李少恒, 等. 蛇床子素可促进体外培养神经干细胞的增殖[J]. 中国组织工程研究, 2014, 18(32): 5184-5189. |
| [73] |
朱丹雁, 张翔南, 杜悦, 等. 淫羊藿素诱导小鼠胚胎干细胞体外定向分化为神经细胞[J]. 浙江大学学报(医学版), 2007, 36(3): 217-223. |
| [74] |
方丽媛, 王平, 谭爱华, 等. 淫羊藿苷和固本方改善肾虚型老年痴呆模型鼠海马神经元突触损伤[J]. 中华中医药杂志, 2020, 35(7): 3341-3345. |
| [75] |
FU X, LI S, ZHOU S, et al. Stimulatory effect of icariin on the proliferation of neural stem cells from rat hippocampus[J]. BMC Complementary and Alternative Medicine, 2018, 18(1): 34. |
| [76] |
董亚莉, 李剑锋. 不同质量浓度肉苁蓉总苷诱导大鼠骨髓间充质干细胞向神经细胞样细胞的定向分化[J]. 中国组织工程研究, 2012, 16(1): 103-106. |
| [77] |
翟吴剑文, 杨凤梅, 金雨静, 等. 开心解郁丸上调PPARα/FGF21/FGFR1通路改善慢性不可预知温和应激模型大鼠的抑郁样行为[J]. 世界科学技术-中医药现代化, 2023, 25(12): 3829-3836. |
| [78] |
田蕾, 吴昊, 韦昱, 等. 肝主疏泄与单胺类神经递质相关性的研究进展[J]. 环球中医药, 2019, 12(4): 636-640. |
| [79] |
戈宏焱. 柴胡皂苷抗抑郁作用及其机制的研究[D]. 长春: 吉林大学, 2010.
|
| [80] |
LENZI J, RODRIGUES A F, RÓS A S, et al. Ferulic acid chronic treatment exerts antidepressant-like effect: Role of antioxidant defense system[J]. Metabolic Brain Disease, 2015, 30(6): 1453-1463. |
| [81] |
马建福, 王豆, 李涛, 等. 郁金治疗卒中后抑郁的药理机制研究进展[J]. 中国实验方剂学杂志, 2022, 28(7): 276-282. |