 2026, Vol. 45
文章信息
- 段争, 杨丹宁, 曹瑞琪, 聂亚珍, 陈成, 刘伟丽, 陈照立
- DUAN Zheng, YANG Danning, CAO Ruiqi, NIE Yazhen, CHEN Cheng, LIU Weili, CHEN Zhaoli
- 积雪草苷调节NLRP3/Caspase-1/GSDMD信号通路减轻慢性低氧大鼠肾损伤
- Asiaticoside alleviates renal injury in chronically hypoxic rats by modulating the NLRP3/Caspase-1/GSDMD signaling pathway
- 天津中医药大学学报, 2026, 45(8): 922-929
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(8): 922-929
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.08.06
-
文章历史
收稿日期: 2026-03-10


引用本文 |


2. 军事科学院军事医学研究院,天津 300050
2. Academy of Military Medicine, Academy of Military Sciences, Tianjin 300050, China
肾脏损伤一般分为急性肾损伤(AKI)[1]和慢性肾损伤(CKD)[2]。缺氧是诱发AKI和CKD的重要原因之一[3],尤其是处于高原低压低氧环境下的人们,由于肾脏的特殊构造,其对缺氧极易敏感,长期缺氧可导致肾脏近端小管细胞损伤,造成水钠潴留,从而提高高原蛋白尿[4]的发生率;严重缺氧则会引起肾小管细胞发生凋亡[5],肾小球功能丧失和硬化[6],导致高原蛋白尿和高原酸血症[7]。因此,慢性高原低压低氧性肾损伤越来越受到人们的关注。
缺氧诱导大量的活性氧(ROS)在体内蓄积,其是炎症反应的强大触发器。更重要的是ROS是激活NOD样受体热蛋白结构域相关蛋白3(NLRP3)的经典信号[8]。有研究表明[9]:NLRP3炎症小体介导的细胞焦亡是AKI和CKD的病理机制之一,NLRP3通过召集凋亡相关斑点样蛋白(ASC),活化Caspase-1,剪切消皮素D(GSDMD),形成N端片段(GSDMD-N)末端孔道,执行焦亡过程。在缺血/再灌注肾损伤[10]、糖尿病肾病[11]等模型中,NLRP3/GSDMD介导的焦亡扮演了重要角色。然而,其在慢性高原低压低氧肾损伤中的作用尚不完全明确。
积雪草苷(AS)是从传统中药积雪草中提取的主要活性三萜皂苷成分,具有抗炎、抗氧化、抗纤维化及器官保护等多重药理活性。前期研究提示,AS在AKI[12]和肺纤维化模型[13]中能抑制NLRP3炎症小体活化。据此,本研究拟通过建立高原低氧大鼠模型[14],探讨AS是否通过干预NLRP3/Caspase-1/GSDMD信号通路抑制细胞焦亡,进而发挥肾脏保护作用。
1 材料 1.1 实验动物实验动物为健康成年雄性Wistar大鼠(5~6周龄)32只,体质量为(200±20)g,北京维通利华实验动物有限公司(SPF级),动物许可证为SCXK(京)2021-0006。所有受试动物均饲养在23~25 ℃、相对湿度40%~60%,明暗交替12 h的动物中心屏障室中,分笼饲养,其间自由饮水饮食,适应性喂养7 d后正式用于实验。本实验经环境医学与作业医学研究所实验动物福利伦理委员会批准(审查编号:IACUC of AMMS-04-2025-013)。所开展的动物实验符合实验动物的福利与伦理,严格按照标准规程操作,遵循3R原则。
1.2 主要试剂AS(货号:16830-15-2)购自维克奇生物科技有限公司;TUNEL试剂盒(编号:C1088)购自上海碧云天科技有限公司;NLRP3抗体(Cat No.30109-1-AP)、白细胞介素-18抗体(IL-18,Cat No.60070-1-Ig)、白细胞介素-1β抗体(IL-1β,Cat No.26048-1-AP)购自武汉三鹰生物技术有限公司,GSDMD抗体(ab219800)、GSDMD-NT抗体(ab215203)、Caspase-1抗体(ab207802)、ASC抗体(ab309497)购于英国Abcam公司,Caspase-1-p20(PA5-99390)购于美国Thermo公司,辣根过氧化物酶标记的山羊抗鼠(BS13279)和山羊抗兔(BS13278)IgG二抗购于安诺伦(北京)生物科技有限公司;肌酐(Cr)比色法测试盒(货号:E-BC-K188-M)、尿素(BUN)比色法测试盒(货号:E-BC-K183-M)购于武汉伊莱瑞特生物科技股份有限公司;总超氧化物歧化酶(T-SOD)测定试剂盒(货号:A001-3-2)、丙二醛(MDA)测定试剂盒(货号:A003-1-2)、乳酸脱氢酶(LDH)试剂盒(货号:A020-2-2)购于南京建成生物科技有限公司;IL-18 ELISA试剂盒(RX302871R)、IL-1β ELISA试剂盒试剂盒(RX2DW30206)购自睿信生物科技有限公司。
1.3 主要仪器全自动生化分析仪购于美国Bio-Tek公司,光学显微镜、激光共聚焦显微镜购于日本Olympus公司,蛋白免疫印记(Western blot)电泳仪及成像系统购于美国Bio-Rad公司,酶标仪VersaMaxTM购于美国Molecular Dvices公司。
2 方法 2.1 高原低压低氧模型建立与给药方案将32只Wistar大鼠随机分为4组,每组8只,分为常压常氧对照组(Normoxia)、高原低压低氧模型组(HH)、积雪草苷低剂量干预组(HH+40AS,40 mg/kg)和高剂量干预组(HH+80AS,80 mg/kg),各组体质量差异无统计学意义。建立慢性高原低压低氧大鼠模型的具体方法参考文献并根据实验室前期探索经验[15],采用高原低压低氧环境动物模拟试验舱,模拟海拔6 000 m环境(大气压约50 kPa,氧浓度10.6%)。除Normoxia组外,其余各组置于舱内23 h/d,连续低氧28 d。用0.5%的羧甲基纤维素钠作为溶剂溶解AS,分别以40 mg/kg、80 mg/kg灌胃给药按照大鼠体重给予10 mL/kg,每天1次,Normoxia组和HH组每天灌胃相同体积的AS溶剂,直至实验结束。
2.2 样本采集分别于造模前(海拔0 m基准)和末次给药后,使用代谢笼收集大鼠24 h尿液,记录尿量并检测尿总蛋白(UTP)、尿微量白蛋白(mALB)、β2-微球蛋白(β2-MG)及尿肌酐(UCr),计算各指标与UCr比值的变化值(Δ,即暴露后值减暴露前值)。末次给药后,称重并以戊巴比妥钠(45 mg/kg)腹腔麻醉,开腹取腹主动脉血5mL,室温静置2 h后离心(3 000r/min,10 min,离心半径84 mm),分离血清于-80 ℃保存。取左肾置于4% 多聚甲醛固定,右肾剪碎后加入RIPA裂解液匀浆,离心取上清,用二喹啉甲酸(BCA)法蛋白定量后-80℃保存。
2.3 肾组织病理形态及纤维化观察取2.2中制备大鼠肾组织病理切片,根据苏木精-伊红(HE)染色试剂盒、Masson三色染色试剂盒和高碘酸-希夫(PAS)染色试剂盒说明书操作,对病理切片进行染色,使用中性树胶封片,光镜下观察各组大鼠肾脏病理学变化。
2.4 TUNEL染色检测细胞死亡根据TUNEL试剂盒说明书操作,经苏木精复染后,光镜下每张切片随机选取6个视野,计算阳性细胞率(%)=阳性细胞数/总细胞数×100%。
2.5 血清及肾组织氧化应激与炎症因子测定取血清及肾组织匀浆上清,采用比色法试剂盒测定超氧化物歧化酶(SOD)活力、丙二醛(MDA)及乳酸脱氢酶(LDH)含量;采用ELISA试剂盒测定IL-1β和IL-18水平。所有操作严格按说明书进行,肾组织结果以蛋白浓度校正。
2.6 Western blot检测通路蛋白表达取2.2中的肾组织蛋白裂解液,经SDS-PAGE电泳、转膜、并用5%脱脂奶粉封闭。分别孵育一抗:NLRP3(1∶500)、ASC(1∶1000)、Caspase-1-p20(1∶500)、GSDMD-N(1∶1 000)、IL-1β(1∶1 000)、IL-18(1∶2 000)及内参β-actin(1∶20 000),4 ℃过夜。洗膜后加HRP标记二抗(1∶20 000)室温孵育1 h,ECL化学发光显影,Image Lab软件分析条带灰度值进行计算分析。
2.7 统计学分析本研究样本量参照同类高原低氧动物研究确定[16]。采用资源公式法估算样本量(总样本量n=32,每组8只)。基于α=0.05、检验效能0.80及较大效应量(Cohen’s d≈0.8~1.0),考虑约10%的动物剔除率,最终确定每组8只。该样本量与已发表文献一致[17-18],符合3R原则。数据以均数±标准差(x±s)表示,采用SPSS 26.0进行单因素方差分析(One-Way ANOVA),组间两两比较行SNK-q检验。效应量以偏η2(Partial η2)衡量,组间差异同时报告均值差及95%置信区间(CI)。P < 0.05为差异有统计学意义。
3 结果 3.1 AS对各组大鼠肾功能的影响MALB的变化提示肾小球毛细血管壁的完整性,而UTP更进一步地证实肾小球滤过屏障的改变;β2-MG在正常情况下几乎全部被近端肾小管全吸收,其在尿液中的变化特异性地提示肾小管的重吸收功能受损。这些尿液指标的变化通常与肾脏病理损伤的严重程度相关,它们与Scr、BUN水平同步恶化,则共同证实了结构性损伤导致了明显的功能障碍。单因素方差分析显示,各组间Scr、BUN、ΔUPCR、ΔUACR及Δβ2-MG/UCr水平差异均具有统计学意义(η2 =0.55~0.83,均属大效应量)。与Normoxia组相比,HH组上述指标均显著升高(P < 0.01),表明高原低氧暴露成功诱导了肾功能损伤。与HH组相比,HH+ 40AS组与HH+80AS组各指标均显著降低(P < 0.01)。剂量间比较显示,HH+80AS组在BUN(均值差= -6.37 mmol/L,95%CI:-9.83~-2.92)、ΔUPCR(均值差=-46.71 mg/g•cr,95%CI:-88.30~-5.12)和ΔUACR(均值差=-3.84 mg/g•cr,95%CI:-7.19~-0.49)方面均优于HH+40AS组(P < 0.05);Scr和Δβ2-MG/UCr呈下降趋势但差异未达统计学意义(P > 0.05)。以上结果表明慢性高原低氧暴露会导致肾脏实质性损伤,造成肾小球滤过功能受损和肾小管重吸收障碍,AS干预可改善低压低氧暴露诱导的肾损伤。见表 1。
| 组别 | 动物数 | Scr(μmol/L) | BUN(mmol/L) | △UPCR(mg/g cr) | △UACR(mg/g cr) | △β2-MG/UCr (μg/mmol cr) |
| Normoxia组 | 8 | 24.32±5.35 | 11.15±4.05 | 9.63±17.55 | 2.26±2.47 | 1.84±0.85 |
| HH组 | 8 | 37.69±5.91* | 31.44±7.42* | 176.68±76.79* | 19.26±4.13* | 8.91±4.94* |
| HH+40AS组 | 8 | 24.41±4.05# | 19.12±3.97# | 66.33±38.49# | 7.08±4.16# | 3.44±2.24# |
| HH+80AS组 | 8 | 21.64±5.15# | 12.74±2.23#△ | 19.61±39.07#△ | 3.24±1.48#△ | 1.86±0.98# |
| F值(η2) | 15.72(0.63) | 29.45(0.76) | 20.33(0.69) | 45.76(0.83) | 1.63(0.55) | |
| HH组vs Normoxia组 | 13.37 | 20.29 | 167.04 | 17.00 | 7.07 | |
| 均值差(95%CI) | (7.32, 19.42) | (13.84, 26.74) | (107.31, 226.77) | (13.35, 20.65) | (3.27, 10.87) | |
| HH+40AS组vs HH组 | -13.28 | -12.32 | -110.35 | -12.17 | -5.47 | |
| 均值差(95%CI) | (-18.72, -7.85) | (-18.70, -6.19) | (-175.48, -45.22) | (-16.62, -7.73) | (-9.59, -1.36) | |
| HH+80AS组vs HH+40AS组 | -2.77 | -6.37 | -46.71 | -3.84 | -1.58 | |
| 均值差(95%CI) | (-7.73, 2.20) | (-9.83, -2.92) | (-88.30, -5.12) | (-7.19, -0.49) | (-3.44, 0.27) | |
| 注:*P < 0.01 vs Normoxia;#P < 0.01 vs HH;△P < 0.05 vs HH+40AS。 | ||||||
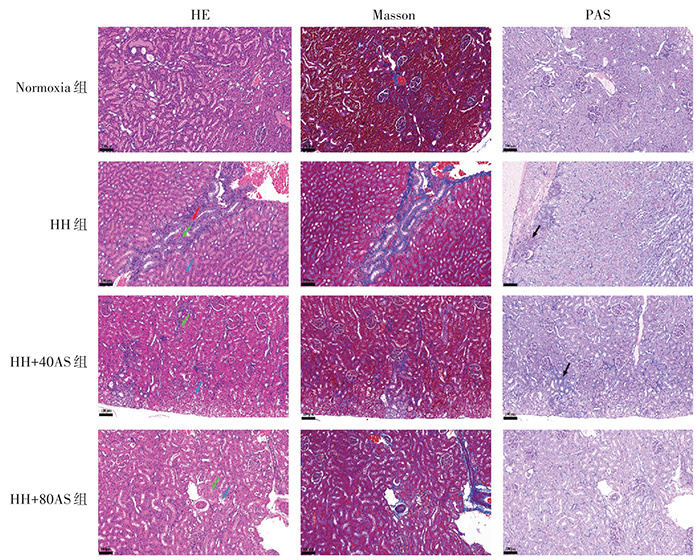
肾小球和肾小管的组织形态是评估肾脏结构完整性、损伤性质与严重程度的重要依据,其改变直接反映了损伤的病理过程。HE染色结果显示,Normoxia组无明显病理改变,而HH组大鼠肾组织形态结构紊乱,可见局部肾小管萎缩,管腔狭窄,并伴有炎性细胞浸润,部分肾小管水肿,刷状缘模糊,肾小管上皮肿胀,胞质疏松,肾小球鲍曼氏囊变窄;PAS染色结果显示,Normoxia组无基底膜增厚趋势,而HH组可见肾小球基底膜增厚;Masson染色结果及胶原面积百分比显示,Normoxia组的阳性着色面为固有结缔组织,整体未有明显纤维化,而HH组肾间质可见纤维增生等病理变化(P < 0.01)。以上结果显示与HH组相比,HH+40AS组与HH+80AS组大鼠肾脏组织得到改善(P < 0.01),HH+80AS组的改善程度更为明显(P < 0.05)。结果表明慢性高原低氧会导致肾功能障碍,AS可改善低氧性肾损伤。见表 2,图 1。
| 组别 | 动物数 | 胶原面积百分比(%Area) |
| Normoxia组 | 8 | 4.77±0.93 |
| HH组 | 8 | 23.07±2.46* |
| HH+40AS组 | 8 | 14.16±1.94# |
| HH+80AS组 | 8 | 8.61±1.19#△ |
| F值 | 62.64 | |
| 注: *P < 0.01 vs Normoxia;#P < 0.01 vs HH; △P < 0.05 vs HH+40AS。 | ||
|
| 注:红色箭头:炎性浸润;绿色箭头:肾小管水肿及上皮肿胀,胞质疏松;蓝色箭头:肾小管萎缩,管腔狭窄;黑色箭头:基底膜增厚;紫色箭头:间质胶原纤维增生。 图 1 HE、PAS、Masson染色检测各组大鼠肾组织病理形态(×200) |
在血清中,HH组SOD活性较Normoxia组显著降低,MDA、LDH、IL-1β及IL-18水平显著升高(P < 0.01)。AS干预后,HH+40AS和HH+80AS组上述指标均显著逆转(P < 0.01),且高剂量组各指标进一步改善(P < 0.05)。肾组织内炎症因子变化趋势与血清一致(η2 =0.72~0.93),HH组SOD降低,MDA、LDH、IL-1β及IL-18升高(P < 0.01),AS干干预后预后显著改善,高剂量组效果优于低剂量组(P < 0.05)。上述结果说明AS能有效清除ROS,减轻全身及肾脏局部的氧化应激和炎症反应。见表 3,表 4。
| 组别 | 动物数 | SOD(U/mg Prot) | MDA(nmol/mg Prot) | LDH(U/L) | IL-18(pg/mL) | IL-1β(pg/mL) |
| Normoxia组 | 8 | 67.90±4.33 | 2.06±0.86 | 9 803.90±1 119.97 | 132.52± 8.01 | 21.66±3.55 |
| HH组 | 8 | 50.82±2.51* | 10.00±1.16* | 25 643.12±4 226.74* | 243.06±13.96* | 63.13±3.93* |
| HH+40AS组 | 8 | 57.05±6.91# | 5.44±0.93# | 16 162.64±2 586.18# | 190.09±19.63# | 44.05±4.04# |
| HH+80AS组 | 8 | 63.8±6.13#△ | 3.51±0.82#△ | 10 104.09±5 405.13#△ | 168.41± 9.71#△ | 36.2±5.62#△ |
| F值(η2) | 16.41(0.64) | 107.40(0.92) | 34.74(0.79) | 92.63(0.91) | 125.80(0.93) | |
| HH vs Normoxia | -17.08 | 7.94 | 15 839.22 | 110.53 | 41.47 | |
| 均值差(95%CI) | (-20.88, -13.29) | (6.85, 9.04) | (12 523.48, 19 154.95) | (98.32, 122.74) | (37.45, 45.48) | |
| HH+40AS vs HH | 6.23 | -4.56 | -9 480.48 | -52.97 | -19.08 | |
| 均值差(95%CI) | (0.65, 11.80) | (-5.67, -3.45) | (-13 237.97, -5 722.99) | (-71.23, -34.70) | (-23.36, -14.80) | |
| HH+80AS vs HH+40A | 6.75 | -1.94 | -6 147.77 | -21.68 | -7.84 | |
| 均值差(95%CI) | (-0.25, 13.75) | (-2.86, -1.02) | (-10 423.50, -1 872.04) | (-38.29, -5.07) | (-13.09, -2.59) | |
| 注:*P < 0.01 vs Normoxia;#P < 0.01 vs HH;△P < 0.05 vs HH+40AS。 | ||||||
| 组别 | 动物数 | SOD(U/mg Prot) | MDA(nmol/mg Prot) | LDH(U/L) | IL-18(pg/mL) | IL-1β(pg/mL) |
| Normoxia组 | 8 | 9.17±0.56 | 4.57±0.67 | 12 493.49±2 556.87 | 23.50±2.11 | 6.18±0.71 |
| HH组 | 8 | 6.76±0.45* | 12.09±0.94* | 25 754.64±4 134.41* | 36.28±2.27* | 9.20±0.35* |
| HH+40AS组 | 8 | 8.7±0.94# | 8.55±0.92# | 20 659.85±2 609.00# | 30.25±2.48# | 7.76±0.57# |
| HH+80AS组 | 8 | 10.14±1.13#△ | 7.12±0.53#△ | 13 810.41±2 483.08#△ | 25.94±3.71#△ | 6.91±0.62#△ |
| F值(η2) | 24.42(0.72) | 127.16(0.93) | 33.50(0.78) | 92.63(0.78) | 40.63(0.813) | |
| HH vs Normoxia | -2.41 | 7.51 | 1 3261.15 | 12.78 | 3.02 | |
| 均值差(95%CI) | (-2.95, -1.87) | (6.64, 8.40) | (9574.94, 16947.36) | (10.43, 15.13) | (2.42, 3.62) | |
| HH+40AS vs HH | 1.94 | -3.53 | -5 094.79 | -6.03 | -1.44 | |
| 均值差(95%CI) | (1.15, 2.72) | (-4.53, -2.53) | (-8801.94, -1387.64) | (-8.58, -3.48) | (-1.95, -0.93) | |
| HH+80AS vs HH+40A | 1.45 | -1.43 | -6 849.44 | -4.31 | -0.85 | |
| 均值差(95%CI) | (0.34, 2.56) | (-2.24, -0.63) | (-9580.63, -4118.25) | (-7.70, -0.93) | (-1.49, -0.21) | |
| 注:*P < 0.01 vs Normoxia;#P < 0.01 vs HH;△P < 0.05 vs HH+40AS。 | ||||||
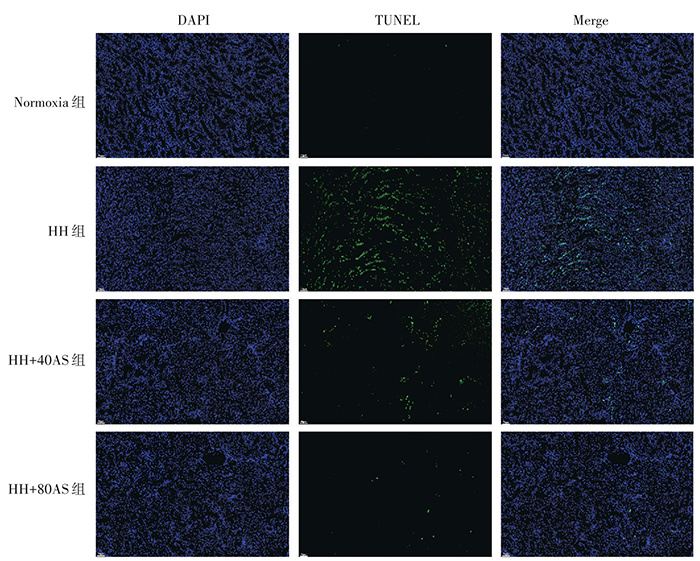
TUNEL阳性细胞率比较TUNEL染色可标记DNA断裂,而焦亡过程中细胞膜孔道形成、渗透压改变导致的细胞破裂通常伴随DNA损伤。因此,在HH组中,可观察到大鼠肾组织细胞死亡率相较于Normoxia组显著升高(P < 0.01);HH+40AS组和HH+80AS组相较于HH组显著降低(P < 0.01);HH+80AS组与HH+40AS组相比,无统计学差异。以上结果可推断慢性低氧诱导了肾组织细胞的焦亡,AS可改善肾组织的焦亡性死亡。见表 5,图 2。
| 组别 | 动物数 | TUNEL阳性细胞率(%) |
| Normoxia组 | 8 | 0.64±0.44 |
| HH组 | 8 | 19.32±2.68* |
| HH+40AS组 | 8 | 3.16±1.91# |
| HH+80AS组 | 8 | 0.57±0.13# |
| F值 | 88.353 | |
| 注: *P < 0.01vs Normoxia;#P < 0.01 vs HH。 | ||
|
| 图 2 TUNEL染色检测各组大鼠肾组织细胞死亡率(×400) |
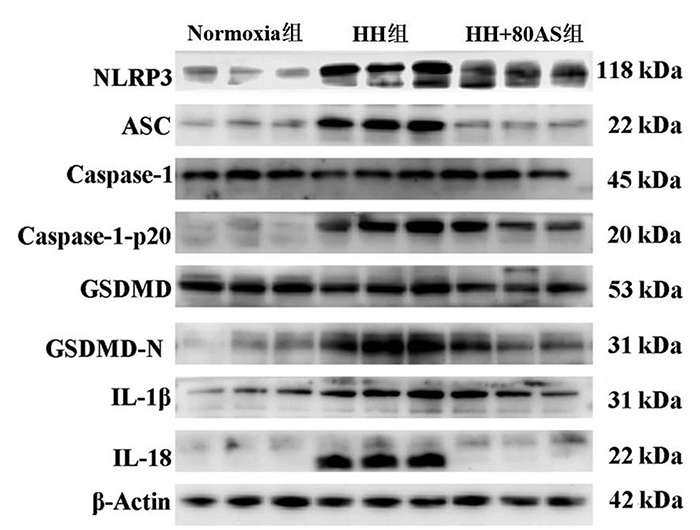
为进一步明确AS对NLRP3/Caspase-1/GSDMD通路的调控效应,本研究选取保护效应最显著的HH+80AS组进行Western blot检测。Western blot结果显示(η2 =0.61~0.98,大效应量),与Normoxia组相比,HH组肾组织中NLRP3、ASC、Caspase-1-p20、GSDMD-N、IL-1β及IL-18蛋白表达均显著上调(P < 0.01),证实慢性低氧激活了NLRP3炎症小体及下游焦亡通路。与HH组比较,HH+80AS组上述蛋白表达均显著降低(P < 0.01)。结果表明AS可阻断NLRP3炎症小体的级联反应,保护大鼠肾脏。见表 6,图 3。
| 组别 | 动物数 | NLRP3/β-actin | ASC/β-actin | Caspase-P20/Pro-Caspase-1 | GSDMD-NT/GSDMD | IL-1β/β-actin | IL-18/β-actin |
| Normoxia组 | 8 | 1.00±0.13 | 1.00±0.08 | 1.00±0.31 | 1.00±0.81 | 1.00±0.14 | 1.00±0.11 |
| HH组 | 8 | 2.53±0.29* | 2.51±0.07* | 2.68±0.22* | 3.91±0.41* | 2.69±0.37* | 4.96±0.2* |
| HH+80AS组 | 8 | 1.83±0.13# | 1.32±0.03# | 1.93±0.12# | 2.17±0.14# | 1.55±0.5# | 1.56±0.65# |
| F值(η2) | 44.95(0.81) | 442.12(0.98) | 39.67(0.79) | 22.84(0.67) | 16.45(0.61) | 87.35(0.89) | |
| HH组vs Normoxia组 | 1.53 | 1.51 | 1.68 | 2.91 | 1.69 | 3.96 | |
| 均值差(95%CI) | (1.29, 1.77) | (1.43, 1.59) | (1.39, 1.97) | (2.22, 3.60) | (1.39, 1.99) | (3.79, 4.13) | |
| HH+80AS组vs HH组 | -0.70 | -1.19 | -0.75 | -1.74 | -1.14 | -3.40 | |
| 均值差(95%CI) | (-0.94, -0.46) | (-1.25, -1.13) | (-0.94, -0.56) | (-2.07, -1.41) | (-1.61, -0.67) | (-3.92, -2.89) | |
| Note:*P < 0.01 vs Normoxia;#P < 0.01 vs HH。 | |||||||
|
| 图 3 Western blot检测大鼠肾组织中NLRP3/Caspase-1/GSDMD通路相关蛋白水平变化 |
慢性缺氧是诱导组织炎症反应的关键因素。实验结果显示,HH组大鼠肾组织中IL-1β和IL-18水平急剧升高,这提示肾脏局部处于强烈的炎症状态。IL-1β和IL-18的成熟与释放严格依赖于炎症小体,尤其是NLRP3炎症小体的激活。本研究发现,慢性低氧显著上调了肾脏中NLRP3、ASC及活化形式的Caspase-1的蛋白表达,证实了NLRP3炎症小体在慢性低氧肾损伤中被激活。
活化的Caspase-1具有两大关键功能:一是剪切pro-IL-1β和pro-IL-18,产生具有生物活性的成熟细胞因子;二是剪切焦亡执行蛋白GSDMD,产生具有打孔活性的GSDMD-N片段。GSDMD-N在细胞膜上寡聚形成孔道,导致细胞渗透性肿胀、破裂,释放内容物,加剧炎症反应,即发生细胞焦亡。本研究观察到,在HH组中,伴随着Caspase-1的活化,其下游的GSDMD-N和IL-1β蛋白表达也同步显著增加。值得注意的是,细胞膜孔道的形成必然导致胞浆内容物的被动释放。LDH作为胞浆内富含的稳定酶蛋白,其血清水平的升高已成为细胞膜完整性丧失的公认定量标志物。本实验中,HH组大鼠血清LDH水平较Normoxia组显著升高,从生化层面证明了肾组织细胞发生了裂解性死亡。同时,TUNEL阳性染色所显示的DNA断裂与LDH释放同步发生,两者结合进一步支持细胞焦亡是慢性低氧肾损伤的重要死亡方式。据此可以推断,慢性低氧通过激活NLRP3/Caspase-1/GSDMD信号轴,诱导了肾脏细胞焦亡,这可能是慢性低氧肾损伤的重要细胞学机制。
AS的治疗逆转了上述过程。它不仅降低了Scr和BUN,改善了组织病理,还显著降低了促炎因子IL-1β和IL-18的水平。研究发现,AS可以显著抑制一氧化氮合成酶的表达,抑制炎症介质并促进巨噬细胞从M1型转变为M2型,从而保护缺血后再灌注对肾脏的损伤。本实验表明在Western blot结果中,AS能够剂量依赖性地抑制NLRP3炎症小体核心组件(NLRP3、ASC)的表达,并减少其下游效应分子Caspase-1-p20、GSDMD-N及IL-1β的生成。这表明AS的保护作用位于NLRP3炎症小体组装的上游或直接作用于其组装过程,阻断了整个“NLRP3活化-Caspase-1剪切-GSDMD孔道形成-IL-1β/IL-18释放”的级联反应,从而抑制了肾损伤,减轻炎症反应对肾脏的损害。
本研究存在的局限性及展望如下:第一,本研究仅在整体动物水平验证了AS对NLRP3/Caspase-1/GSDMD通路的抑制作用,未使用NLRP3特异性抑制剂(如MCC950)或条件性基因敲除动物进行机制回补实验。后续可结合上述实验,反向验证AS是否直接靶向NLRP3炎症小体组装过程,或通过上游ROS清除间接发挥抑制效应。第二,该实验仅观察了AS在40 mg/kg和80 mg/kg两个剂量下的保护效应,虽已观察到明确的剂量依赖性趋势,但尚未完整描绘AS的量效曲线和最佳治疗窗口。后续应结合药代动力学实验,进一步明确AS在高原低氧环境下的有效血药浓度和作用时长。第三,该研究仅采用雄性Wistar大鼠,未评估性别差异对AS药效的影响。已有文献报道NLRP3炎症小体活性存在性别二态性,后续应在雌性动物及老龄动物模型中验证AS的保护效应是否具有普适性。第四,AS给药方案为预防性给药,而临床实际应用更关注低氧损伤已发生后的治疗性给药效果。后续实验应设计造模后不同时间点给药(如急性期、亚急性期)的干预方案,以更贴近临床转化场景。此外,本研究未使用焦亡特异性抑制剂或基因敲除动物进行更深入的机制验证,这将是后续研究的重点。
综上所述,该研究证实AS能够有效改善慢性低氧大鼠的肾功能和肾脏病理损伤。其保护作用与抑制肾组织NLRP3/Caspase-1/GSDMD信号通路的过度活化、减少促炎因子释放、从而减轻肾脏细胞焦亡密切相关。上述发现为阐明慢性低氧肾损伤的发病机制提供了新视角,也为AS作为潜在的肾脏保护药物应用于高原相关疾病的防治提供了重要的实验依据。
| [1] |
ZHAO Z B, MARSCHNER J A, IWAKURA T, et al. Tubular epithelial cell HMGB1 promotes AKI-CKD transition by sensitizing cycling tubular cells to oxidative stress: A rationale for targeting HMGB1 during AKI recovery[J]. Journal of the American Society of Nephrology, 2023, 34(3): 394-411. DOI:10.1681/ASN.0000000000000024 |
| [2] |
SWARTLING O, RYDELL H, STENVINKEL P, et al. CKD progression and mortality among men and women: A nationwide study in Sweden[J]. American Journal of Kidney Diseases, 2021, 78(2): 201-209. |
| [3] |
LI H M, XIA Y, ZHA H C, et al. Dapagliflozin attenuates AKI to CKD transition in diabetes by activating SIRT3/PGC1-α signaling and alleviating aberrant metabolic reprogramming[J]. Biochimica et Biophysica Acta(BBA)-Molecular Basis of Disease, 2024, 1870(7): 167433. DOI:10.1016/j.bbadis.2024.167433 |
| [4] |
WANG S Y, LIANG. A case of high-altitude renal syndrome[J]. High Altitude Medicine & Biology, 2024, 25(2): 149-151. |
| [5] |
HURTADO-ARESTEGUI A, ESCOBAR A M, GONZALES G F, et al. Higher prevalence of unrecognized kidney disease at high altitude[J]. Journal of Nephrology, 2018, 31(2): 263-269. DOI:10.1007/s40620-017-0456-0 |
| [6] |
ALKS B J, BRADWELL S B, DELAMERE J, et al. Urinary alpha-1-acid glycoprotein is a sensitive marker of glomerular protein leakage at altitude[J]. High Altitude Medicine and Biology, 2018, 19(3): 295-298. DOI:10.1089/ham.2018.0017 |
| [7] |
HAN D M, YAO Y Q, WANG F S, et al. A study on the correlation between hyperuricemia and TG/HDL-C ratio in the Naxi ethnic group at high-altitude regions of Yunnan[J]. Frontiers in Medicine, 2024, 11: 1416021. DOI:10.3389/fmed.2024.1416021 |
| [8] |
LIN Q S, LI S, JIANG N, et al. PINK1-parkin pathway of mitophagy protects against contrast-induced acute kidney injury via decreasing mitochondrial ROS and NLRP3 inflammasome activation[J]. Redox Biology, 2019, 26: 101254. DOI:10.1016/j.redox.2019.101254 |
| [9] |
ZHENG TONG, TAN YUQIN, et al. Alternative polyadenylation trans-factor FIP1 exacerbates UUO/IRI-induced kidney injury and contributes to AKI-CKD transition via ROS-NLRP3axis[J]. CellDeath andDisease, 2021, 12(6): 512. |
| [10] |
YE J, TANG X L, LI M, et al. MicroRNA-223 alleviates inflammatory response in renal ischemia-reperfusion injury by targeting NLRP3[J]. The Kaohsiung Journal of Medical Sciences, 2024, 40(9): 789-800. DOI:10.1002/kjm2.12883 |
| [11] |
MA Z A, WANG L X, ZHANG H, et al. Jianpi Gushen Huayu decoction ameliorated diabetic nephropathy through modulating metabolites in kidney, and inhibiting TLR4/NF-κB/NLRP3 and JNK/P38 pathways[J]. World Journal of Diabetes, 2024, 15(3): 502-518. DOI:10.4239/wjd.v15.i3.502 |
| [12] |
LIU S S, CHEN Y Y, WANG S X, et al. Protective effect of dabrafenib on renal ischemia-reperfusion injury in vivo and in vitro[J]. Biochem Biophys Res Commun, 2020, 522(2): 395-401. DOI:10.1016/j.bbrc.2019.11.105 |
| [13] |
LUO J, ZHANG T, ZHU C, et al. Asiaticoside might attenuate bleomycin-induced pulmonary fibrosis by activating cAMP and Rap1 signalling pathway assisted by A2AR[J]. J Cell Mol Med, 2020, 24(14): 8248-8261. DOI:10.1111/jcmm.15505 |
| [14] |
ZENG Y, LI Y M, CHENG Y, et al. Hypoxia-inducible factor-1α activation can attenuate renal podocyte injury and alleviate proteinuria in rats in a simulated high-altitude environment[J]. Biochemical and Biophysical Research Communications, 2022, 602: 35-40. DOI:10.1016/j.bbrc.2022.02.091 |
| [15] |
LI X W, CAO R Q, ZHANG L, et al. Astragaloside Ⅳ protects against high altitude hypoxia-induced cardiac injury through the CaSR-NF-κB and EGFR-PI3K-AKT-MDM2 pathways[J]. Apoptosis, 2025, 30: 3169-3189. DOI:10.1007/s10495-025-02197-8 |
| [16] |
FESTING M F W. On determining sample size in experiments involving laboratory animals[J]. Laboratory Animals, 2018, 52(4): 341-350. DOI:10.1177/0023677217738268 |
| [17] |
黄灵泉, 冯江鹏, 杨全余, 等. 高原低氧对雄性大鼠学习记忆及其额叶中的NR2A、P-NR2A、P-NR2B表达影响[J]. 中国高原医学与生物学杂志, 2024, 45(4): 263-270. |
| [18] |
ZENG X S, CHENG H, GAN Z L, et al. Hypoxia-inducible factor-1α attenuates renal podocyte injury in male rats in a simulated high-altitude environment by upregulating Krüppel-like factor 4 expression[J]. Exp Physiol, 2024, 109(7): 1188-1198. DOI:10.1113/EP091443 |