 2026, Vol. 45
文章信息
- 陈佳宁, 梁含云, 杨帆, 任佳丽, 卞田润, 张坚, 李先宽
- CHEN Jianing, LIANG Hanyun, YANG Fan, REN Jiali, BIAN Tianrun, ZHANG Jian, LI Xiankuan
- 外源MeJA对旱、盐胁迫下酸枣种子萌发的影响
- Exogenous MeJA Modulates Seed Germination of Ziziphus jujuba var. spinosa under drought and salt stress conditions
- 天津中医药大学学报, 2026, 45(8): 930-936
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(8): 930-936
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.08.07
-
文章历史
收稿日期: 2026-03-10


引用本文 |


2. 天津中医药大学药用植物国家林木种质资源库,天津 301617
2. National Forest Germplasm Bank of Medicinal Plants of Tianjin University of Traditional Chinese Medicine, Tianjin 301617, China
中国土地资源正面临干旱与盐渍化并存的严峻挑战[1]。干旱环境会加剧植物蒸腾作用与土壤水分蒸发,浓缩土壤水分,致使盐分在植物根部积累。这一过程可能会将单一的干旱胁迫转变为旱盐复合胁迫,加剧植物失水,严重制约农业生产,甚至引起生态安全问题[2]。同时,土壤盐渍化会通过降低土壤水势,使植物吸水困难,从而加剧其生理干旱[3],因此这两种胁迫通常伴生出现。在植物应对旱盐复合胁迫的过程中,种子萌发阶段最为脆弱,通过外源激素的调控可以有效提升种子在旱盐逆境下的萌发活力,这是提升植物抗逆的重要策略。有研究表明,外源6-BA可有效缓解盐碱胁迫对大豆种子萌发的抑制[4];外源褪黑素能显著减轻干旱胁迫对金花菜种子萌发造成的损伤[5]。但目前研究多聚焦于单一的盐胁迫或干旱胁迫,而在旱盐复合胁迫下施加外源激素促进种子萌发的研究较少,因此,研究外源激素在旱盐复合胁迫的条件下对农作物生长的影响具有实际意义。
酸枣(Ziziphus jujuba var. spinosa)为鼠李科枣属的木本植物,具有镇静、催眠的作用,可用于治疗神经衰弱、失眠、多梦等症状[6]。研究显示,酸枣中的皂苷类、黄酮类、生物碱类等活性成分是其发挥安神镇静功效的主要成分[7]。酸枣主要分布在陕西、山西、河北、天津等地,对土壤有一定的耐受性[8];然而,其种子在萌发期表现出抗逆性较弱的特点[9]。另外,茉莉酸甲酯(MeJA)作为重要的植物信号分子[10],能够激活植物广泛的防御系统,从而协同增强其对生物与非生物胁迫的抗性[11]。目前,已有研究对酸枣的抗逆性进行了探讨,但关于MeJA缓解旱盐复合胁迫对酸枣种子萌发影响的研究,尚未见报道。实验以酸枣种子为实验材料,设置不同浓度的MeJA对种子进行浸泡处理,探究旱盐胁迫条件下MeJA促进种子萌发的最佳浓度,解决干旱复合盐渍化土地生态问题,为酸枣在旱盐土地种植提供参考。
1 材料与方法 1.1 材料实验以酸枣种子作为研究材料,种子于2024年10月采自石家庄赞皇县。
1.2 方法 1.2.1 浸种处理选取大小均一、形态相似的酸枣种子用0.1%高锰酸钾溶液消毒30 min,用蒸馏水冲洗3次后取出待用。将供试种子浸泡在浓度为0、25、50、100、200、400、800 μmol/L的MeJA溶液中(下文图表中均以CK、M1~M6代表),在黑暗条件下浸泡24 h后滤出种子,用蒸馏水冲洗表面残留试剂,随后用吸水纸吸干种子表面水分,自然晾干。
1.2.2 种子萌发实验本研究的干旱胁迫采用聚乙二醇(PEG-6000)模拟,盐胁迫采用NaCl溶液模拟。胁迫浓度的设置参考了前期预实验及相关文献[9,12]。以10% PEG6000模拟干旱胁迫;100 mmol/L NaCl模拟盐胁迫;6% PEG6000及70 mmol/L NaCl复合溶液模拟旱盐复合胁迫(下文图表中依次以D、N、SD代表)。将各浓度浸泡后的种子整齐摆放在双层无菌滤纸的9 cm培养皿中,每个培养皿加5 mL相应处理组的胁迫液或蒸馏水(对照组),以确保滤纸充分湿润,将20粒种子整齐排放,每组处理重复3次。于人工气候箱中,恒温(25±1)℃,光周期16/8 h(光/暗)。自培养开始后,每24 h观察并记录一次种子萌发情况,隔2 d更换一次滤纸和处理液,保证胁迫液浓度不变。萌发标准定义为:胚根突破种皮1 mm[13]。每日记录萌发种子数,并及时移除霉变个体。第15天进行胚根长等相应指标的测定,求算种子萌发及生长指标。统计分析时,将每个培养皿作为一个独立的生物学重复(n=3)。首先计算每个培养皿内种子的萌发率、胚根长等指标的均值,再以这3个培养皿的均值进行组间比较。
发芽势(%)=第7天的种子发芽数/供试种子总数×100%
发芽率(%)=发芽终期全部正常发芽的种子数/供试种子总数×100%
发芽指数(GI)=Gt/Dt,式中Gt为不同发芽天数t的发芽率;Dt为发芽天数。
相对毒/盐害率(%)=(对照发芽率-旱盐胁迫处理发芽率)/对照发芽率×100%
胚根长:供试种子生长至第15天时,游标卡尺测定胚根长度,每培养皿测定9组平行数据,然后统计各处理组每皿平均根长。
种子活力=L×GI,式中,L为幼苗根长。
1.2.3 酸枣种子萌发期抗旱盐指标综合性评价采用隶属函数法处理评价指标,是一种客观赋权法,能够有效刻画不同评价指标在不同处理组间的评价状态,制定具体统一的量化标准[14]。其核心意义在于,一个指标在不同处理间的变异系数越大,表明该指标对不同浓度MeJA处理的响应差异越明显,所包含的鉴别信息量越丰富。赋予此类指标更高权重,旨在构建一个胁迫条件下酸枣种子萌发对不同浓度激素反应的综合评价体系,从而使最终的抗逆隶属值能最大化地区分各处理组的整体抗逆性差异。本研究采用隶属函数法对发芽势、发芽率、萌发指数、根长、种子活力、相对毒害率进行统一量化评价,分析酸枣种子在萌发期应对旱盐胁迫的能力。
在进行抗逆隶属值计算时,对各指标的平均值进行标准化处理,公式如下:
| $ \mu \left(X _ {i j}\right) = \frac {\left(X _ {i j}-X _ {j \min}\right)}{\left(X _ {j \max}-X _ {j \min}\right)} $ |
式中:μ(Xij):第j个处理下,第i个评价指标的隶属函数值。Xij:第j个处理下,第i个评价指标的原始测定值。Xjmin:所有处理中,第i个评价指标的最小值。Xjmax:所有处理中,第i个评价指标的最大值。
| $ \bar {X} _ {i} = \frac {1}{n} \sum\limits_ {j = 1} ^ {n} X _ {i j} $ |
式中:
| $ V _ {i} = \frac {\sqrt {\frac {1}{n} \sum\limits_ {j = 1} ^ {n} (X _ {i j}-\bar {X} _ {i}) ^ {2}}}{\bar {X} _ {i}} $ |
式中:Vi:第i个评价指标的标准差系数(变异系数)。
| $ W _ {i} = \frac {V i}{\sum\limits_ {i = 1} ^ {m} V _ {i}} $ |
式中:Wi:第i个评价指标的权重系数。m:评价指标的总数。
| $ D _ {j} = \sum\limits_ {i = 1} ^ {m} \left[ W _ {i} \times \mu \left(X _ {i j}\right) \right] $ |
式中:Dj:第j个处理的综合评价得分。Dj值越高,代表该浓度MeJA浸种处理在酸枣种子萌发期的抗旱效应越强。
1.3 数据分析用SPSS27.0.1统计软件进行方差分析,用Origin2022软件绘图。具体分析方法为:采用Shapiro-Wilk检验评估数据的正态性,采用Levene检验评估方差齐性。若数据满足正态分布且方差齐,则采用单因素方差分析(ANOVA),并使用LSD法进行多重比较;若方差不齐,使用Games-Howell法进行多重比较。显著性水平设为P < 0.05。
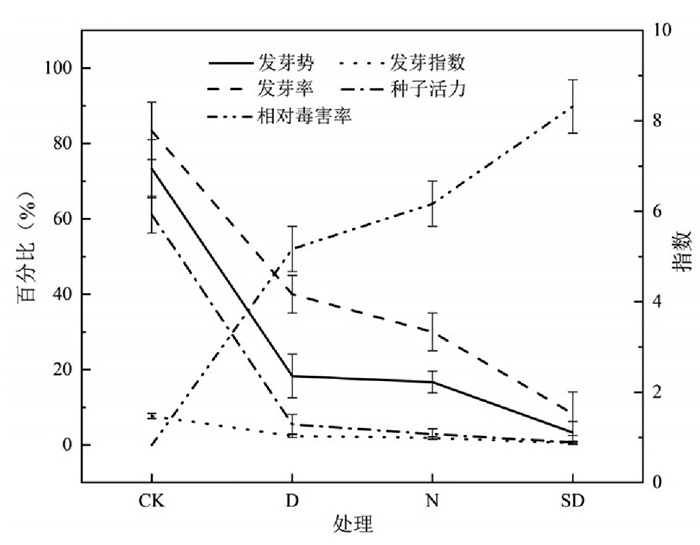
2 结果与分析 2.1 不同胁迫对种子萌发的抑制作用由图 1可知,与对照组相比,3种胁迫下酸枣种子发芽势、发芽率、发芽指数、种子活力均受到显著抑制(P < 0.05);相对旱害率、相对盐害率,相对旱盐复合害率均显著提高。干旱胁迫组(D)4个发芽指标较对照组分别显著降低75.0%、52.0%、68.8%、91.0%;相对旱害率提高了52.0%。盐胁迫组(N)四个发芽指标较对照组分别显著降低77.2%、64.0%、75.3%、91.0%;相对盐害率提高了64.0%。旱盐胁迫组(SD)4个发芽指标较对照组分别显著降低95.50%、90.0%、93.5%、98.9%;相对旱盐复合害率提高了89.80%。
|
| 注:发芽势、发芽率、相对毒害率(D、N、SD组分别代表相对旱害率、相对盐害率及相对旱盐复合害率)数值参考左轴;发芽指数、种子活力数值参考右轴。 图 1 不同逆境胁迫对酸枣种子萌发指标的影响 |
由表 1可知:随着MeJA浓度的增加,干旱胁迫下酸枣种子各萌发指标发生规律性变化,种子发芽势、发芽率、发芽指数、种子活力具体表现为随着浓度的增加,先升高后降低的趋势,相对旱害率则相反。对于不同指标,最佳缓解浓度略有不同。50 μmol/L MeJA处理组的发芽势最高,达到45.0%,显著高于干旱胁迫组的18.3%(P < 0.05);在发芽率方面,50 μmol/L和100 μmol/L MeJA处理组表现出最佳的缓解效果,其发芽率分别为63.3%和58.3%,均显著高于干旱胁迫组(40.0%,P < 0.05)。与干旱胁迫组相比,50 μmol/L MeJA处理组的均值差为23.3(95%CI:6.7~40.0),100 μmol/L MeJA处理组的均值差为18.3(95%CI:1.7~35.0)。50 μmol/L MeJA处理组的发芽指数与种子活力最高,分别达到4.4和20.1,显著高于干旱胁迫组的2.4和5.5(P < 0.05)。同时,该处理组的相对旱害率也降至最低,为24.0%。此外,100和200 μmol/L MeJA处理组的相对旱害率(分别为30.0%和28.0%)也均显著低于干旱胁迫组(52.0%,P < 0.05)。
| 组别 | n | 发芽势(%) | 发芽率(%) | 发芽指数 | 种子活力 | 相对旱害率(%) |
| CK | 3 | 73.3±7.7# | 83.3± 7.6# | 7.7±0.7# | 61.1±4.9# | 0# |
| D | 3 | 18.3± 5.8* | 40.0± 5.0* | 2.4±0.4* | 5.5±2.6* | 52.0± 6.0* |
| M1 | 3 | 16.7±11.5* | 38.3±16.1* | 2.1±1.1* | 4.5±2.4* | 54.0±19.3* |
| M2 | 3 | 45.0±13.2*# | 63.3±12.6*# | 4.4±0.7*# | 20.1±6.1*# | 24.0±15.1*# |
| M3 | 3 | 33.3± 7.6* | 58.3± 5.8*# | 3.3±0.6* | 7.7±4.3* | 30.0± 7.0*# |
| M4 | 3 | 23.3±15.3* | 60.0± 8.7* | 2.7±1.5* | 3.3±0.9* | 28.0±10.4*# |
| M5 | 3 | 20.0±17.3* | 50.0± 5.0* | 2.1±1.5* | 2.6±2.4* | 40.0± 6.0* |
| M6 | 3 | 25.0±20.0* | 26.7±10.4* | 1.4±0.7* | 1.5±1.5* | 68.0±12.5* |
| 注:用单因素方差分析进行显著性分析,与对照组相比,*P < 0.05;与胁迫组相比,#P < 0.05。 | ||||||
外源MeJA处理有效缓解了100 mmol/L盐胁迫对种子萌发的抑制作用,所有测定的萌发指标均得到显著性的改善,且各指标均在50 μmol/L MeJA时得到最佳的缓解效果,结果见表 2。具体而言,50 μmol/L MeJA处理使发芽势、发芽率和发芽指数分别达到25.0%、48.3%、2.5,均高于盐胁迫组的16.7%、30.0%、1.9。其中发芽率方面,该处理与盐胁迫组的均值差为18.3(95%CI:3.8~32.9)。该处理对幼苗生长有一定的影响,种子活力指数提升至6.3,优于盐胁迫组的2.9。相应地,其相对盐害率也降至最低为42.0%。这些结果表明,MeJA不仅促进了种子在胁迫下的萌发,更显著增强了幼苗的早期生长活力。
| 组别 | n | 发芽势(%) | 发芽率(%) | 发芽指数 | 种子活力 | 相对盐害率(%) |
| CK | 3 | 73.3± 7.7# | 83.3± 7.6# | 7.7±0.7# | 61.1±5.0# | 0# |
| N | 3 | 16.7± 2.9* | 30.0± 5.0* | 1.9±0.3* | 2.9±1.4* | 64.0± 6.0* |
| M1 | 3 | 8.3±10.4* | 21.7±10.4* | 1.1±0.9* | 2.1±1.9* | 74.0±12.5* |
| M2 | 3 | 25.0±10.0* | 48.3± 7.6*# | 2.5±0.6* | 6.3±2.4* | 42.0± 9.2*# |
| M3 | 3 | 16.7± 5.8* | 40.0±15.0* | 1.7±0.4* | 2.5±1.6* | 52.0±18.0* |
| M4 | 3 | 20.0± 5.0* | 41.7± 5.8* | 2.0±0.3* | 3.4±1.1* | 50.0± 7.0* |
| M5 | 3 | 15.0±13.3* | 40.0± 5.0* | 1.8±0.9* | 2.5±2.1* | 52.0± 6.0* |
| M6 | 3 | 10.0± 5.0* | 31.7± 5.8* | 1.3±0.6* | 1.1±0.9* | 62.0± 3.0* |
| 注:用单因素方差分析进行显著性分析,与对照组相比,*P < 0.05;与胁迫组相比,#P < 0.05。 | ||||||
与在干旱胁迫、盐胁迫的单一胁迫下的积极作用相类似,MeJA同样有效缓解了旱盐复合胁迫对种子萌发的伤害(表 3)。旱盐复合胁迫组酸枣种子的发芽率以及相对旱盐复合害率与50 μmol/L MeJA处理组之间差异显著(P < 0.05),然而其余各组间酸枣种子的各指标差异并不显著(P > 0.05)。50 μmol/L MeJA处理后,发芽率提升至28.3%,比胁迫组的8.3%提高了20.0个百分点(均值差20.0,95%CI:11.3~28.7)。相应地,相对旱盐复合害率在缓解后由89.8%降低至65.3%。
| 组别 | n | 发芽势(%) | 发芽率(%) | 发芽指数 | 种子活力 | 相对旱盐复合害率(%) |
| CK | 3 | 73.3±7.7# | 83.3±7.6# | 7.7±0.7# | 61.1±5.0# | 0# |
| SD | 3 | 3.3±2.9* | 8.3±5.8* | 0.5±0.3* | 0.7±0.3* | 89.8±7.1* |
| M1 | 3 | 0.0±0.0* | 15.0±5.0* | 0.3±0.1* | 0.5±0.2* | 81.6±6.1* |
| M2 | 3 | 5.0±5.0* | 28.3±2.9*# | 1.0±0.3* | 3.4±0.7* | 65.3±3.5*# |
| M3 | 3 | 0.0±0.0* | 15.0±0.0* | 0.4±0.0* | 0.7±0.1* | 81.6±0.0* |
| M4 | 3 | 1.7±2.9* | 11.7±7.6* | 0.5±0.4* | 0.9±0.8* | 85.7±3.5* |
| M5 | 3 | 0.0±0.0* | 6.7±2.9* | 0.2±0.0* | 0.1±0.1* | 91.8±3.5* |
| M6 | 3 | 0.0±0.0* | 8.3±2.9* | 0.3±0.2* | 0.2±0.1* | 89.8±3.5* |
| 注:用单因素方差分析进行显著性分析,与对照组相比,*P < 0.05;与胁迫组相比,#P < 0.05。 | ||||||
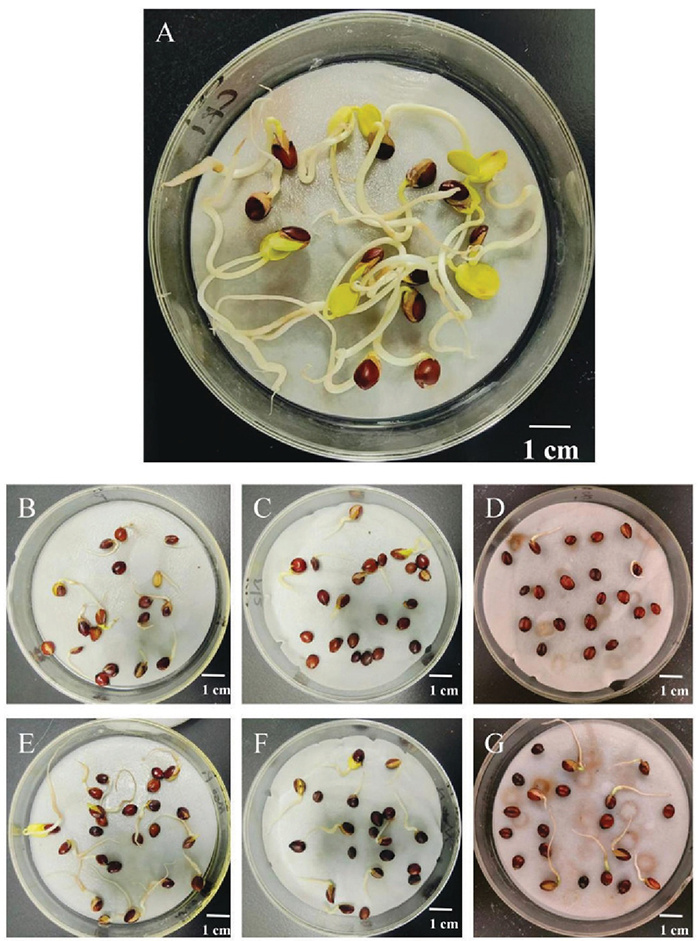
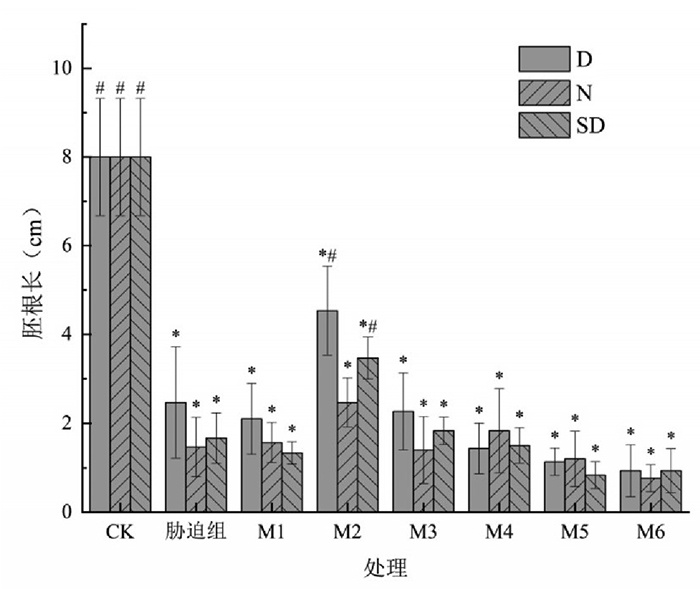
如图 2、图 3所示,外施MeJA能显著缓解干旱、盐及旱盐复合胁迫对胚根伸长的抑制。干旱胁迫后胚根长度较对照组下降了68.8%,施加50 μmol/L MeJA后,胚根长度得到显著恢复,与胁迫组相比提高了80.0%。与干旱胁迫类似,盐胁迫也严重抑制了胚根长度,降低为对照的18.8%,平均根长仅为1.5 cm,其抑制程度要大于干旱胁迫。经MeJA缓解后,对胚根的抑制得到改善,最佳缓解浓度50 μmol/L MeJA使得胚根长度增加了66.6%。旱盐复合条件下,胚根长度的抑制程度与盐胁迫类似,较对照组下降了78.8%,经50 μmol/L MeJA缓解后,与胁迫组相比提高了105.9%。
|
| 注:A~G依次为:CK、D、N、SD、D+M2、N+M2、SD+M2处理组。 图 2 不同处理下酸枣种子萌发情况 |
|
| 注:用单因素方差分析进行显著性分析,与对照组相比,*P < 0.05;与胁迫组相比,#P < 0.05。 图 3 外源不同浓度MeJA对旱盐胁迫下酸枣胚根长度影响 |
酸枣种子不同萌发指标隶属函数值分析结果见表 4~6。本研究根据隶属函数值分析量化了MeJA浓度对酸枣种子在萌发期应对干旱胁迫、盐胁迫、旱盐复合胁迫的效应。在干旱胁迫和盐胁迫条件下,根长和种子活力两个指标的权重之和超过了50%,说明这两个指标在单一胁迫中的主导地位。在旱盐复合胁迫中,发芽势与种子活力之和超过了50%,一方面说明种子活力在胁迫条件下萌发指标中的重要性;另一方面在复合胁迫中发芽势的权重达到了26%,说明在实验初期缓解效果已有明显响应。D值代表MeJA处浸种不同处理下酸枣种子萌发的抗逆效应。由表 4~6可知,3种胁迫条件下,除对照外,M2处理的综合得分最高,即MeJA浓度为50 μmol/L浸种酸枣种子的萌发力最强。
| 处理 | 隶属函数值 | D值 | 排名 | |||||
| 发芽势 | 发芽率 | 发芽指数 | 根长 | 种子活力 | 相对旱害率 | |||
| CK | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1 |
| D | 0.03 | 0.24 | 0.14 | 0.22 | 0.07 | 0.24 | 0.13 | 5 |
| M1 | 0.00 | 0.21 | 0.12 | 0.17 | 0.05 | 0.21 | 0.11 | 7 |
| M2 | 0.50 | 0.65 | 0.47 | 0.51 | 0.31 | 0.65 | 0.46 | 2 |
| M3 | 0.29 | 0.56 | 0.30 | 0.19 | 0.10 | 0.56 | 0.26 | 3 |
| M4 | 0.12 | 0.59 | 0.21 | 0.07 | 0.03 | 0.59 | 0.19 | 4 |
| M5 | 0.06 | 0.41 | 0.11 | 0.03 | 0.02 | 0.41 | 0.12 | 6 |
| M6 | 0.15 | 0.00 | 0.00 | 0.00 | 0.00 | 0.00 | 0.02 | 8 |
| 权重Wi | 0.13 | 0.08 | 0.14 | 0.18 | 0.34 | 0.13 | ||
| 处理 | 隶属函数值 | D值 | 排名 | |||||
| 发芽势 | 发芽率 | 发芽指数 | 根长 | 种子活力 | 相对盐害率 | |||
| CK | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1 |
| N | 0.13 | 0.14 | 0.12 | 0.10 | 0.03 | 0.14 | 0.09 | 6 |
| M1 | 0.00 | 0.00 | 0.00 | 0.11 | 0.02 | 0.00 | 0.03 | 7 |
| M2 | 0.26 | 0.43 | 0.21 | 0.24 | 0.09 | 0.43 | 0.21 | 2 |
| M3 | 0.13 | 0.30 | 0.08 | 0.09 | 0.02 | 0.30 | 0.10 | 4 |
| M4 | 0.18 | 0.32 | 0.12 | 0.15 | 0.04 | 0.32 | 0.14 | 3 |
| M5 | 0.10 | 0.30 | 0.10 | 0.06 | 0.02 | 0.30 | 0.10 | 4 |
| M6 | 0.03 | 0.16 | 0.02 | 0.00 | 0.00 | 0.16 | 0.03 | 7 |
| 权重Wi | 0.16 | 0.08 | 0.15 | 0.18 | 0.36 | 0.08 | ||
| 处理 | 隶属函数值 | D值 | 排名 | |||||
| 发芽势 | 发芽率 | 发芽指数 | 根长 | 种子活力 | 相对旱盐复合害率 | |||
| CK | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1.00 | 1 |
| SD | 0.05 | 0.02 | 0.04 | 0.12 | 0.01 | 0.02 | 0.04 | 3 |
| M1 | 0.00 | 0.11 | 0.02 | 0.07 | 0.00 | 0.11 | 0.03 | 6 |
| M2 | 0.07 | 0.28 | 0.11 | 0.37 | 0.05 | 0.29 | 0.14 | 2 |
| M3 | 0.00 | 0.11 | 0.03 | 0.14 | 0.01 | 0.11 | 0.04 | 3 |
| M4 | 0.02 | 0.07 | 0.05 | 0.09 | 0.01 | 0.07 | 0.04 | 3 |
| M5 | 0.00 | 0.00 | 0.00 | 0.00 | 0.00 | 0.00 | 0.00 | 8 |
| M6 | 0.00 | 0.02 | 0.02 | 0.01 | 0.00 | 0.02 | 0.01 | 7 |
| 权重Wi | 0.26 | 0.12 | 0.20 | 0.10 | 0.27 | 0.04 | ||
种子萌发是种子植物生命周期中关键的起始阶段[15],对植物种群、生态系统以及农业生产具有决定性作用。这一阶段是一个高度需水,对环境敏感的生理过程,严重依赖于适宜的温度、水分和渗透压等条件[16]。然而全球干旱事件频率与持续时间正在逐年攀升[17],同时干旱胁迫与盐胁迫往往伴生出现,对种子萌发产生严重的抑制作用。研究结果表明,盐生假木贼种子在旱盐胁迫下萌发率降低,平均发芽时间延长[18];随着高浓度PEG和NaCl的施用,黄芪种子的最终发芽率等指标均被明显抑制[19]。本研究发现,酸枣种子在10% PEG6000(渗透势-0.15 MPa)或100 mmol/L NaCl单一处理下发芽受到抑制;在6% PEG6000(渗透势-0.07 MPa)与70 mmol/L NaCl的复合胁迫中,酸枣种子萌发受到了更加严重的影响。研究结果表明,当旱盐胁迫同时发生时,酸枣种子必须同时对两种胁迫做出反应,此时发芽率等指标的抑制程度显著高于单一胁迫的影响,表明两种胁迫因子可能通过协同作用,加剧了细胞失水与渗透平衡,这与郝珉琦[20]的研究结果一致。
外源MeJA处理可显著提高植物的系统抗性,是增强植物耐受逆境胁迫的有效策略[21]。赵常钧等[22]发现,外施MeJA保护酶系统在干旱、盐和极端温度胁迫初期不同程度上激活了甘蓝幼苗的保护酶系统,有效清除ROS发挥保护作用。本研究中外源MeJA处理显著逆转了干旱胁迫对胚根伸长的抑制,这可能与其促进细胞分裂与伸长[23-24],以及调控植物体内水分平衡[25]的能力密切相关。与干旱胁迫不同,盐胁迫对种子的萌发具有渗透胁迫和离子胁迫的双重影响[26-27]。本研究中MeJA处理下盐胁迫种子活力指数的提升,暗示该激素可减轻Na+的毒害效应[28],同时,MeJA的渗透调节功能同样有助于对抗盐胁迫导致的渗透胁迫[29],保障胚细胞正常的代谢活动,为种子在早期盐渍环境中的萌发提供了抗性基础。另外,本研究发现,MeJA在复合胁迫中对酸枣种子活力的提高远大于对单一胁迫的改善,这说明MeJA同样可以较好地逆转复合胁迫带来的萌发抑制。然而,低浓度的激素并没有缓解效果,过高浓度的激素甚至对种子产生毒害作用,这说明MeJA对酸枣种子萌发的改善与激素浓度密切相关,适宜浓度的MeJA浸种可促进旱盐胁迫下酸枣种子的萌发。这与外施不同浓度MeJA改善逆境胁迫下猴樟幼苗[30]、迷迭香[31]、菊花[32]、马铃薯[33]等的影响结果相同。由此可见,在逆境胁迫,如盐胁迫、干旱胁迫等条件下,科学选择外源激素的施用浓度,对于调控植物种子的萌发进程至关重要。
但鉴于当前的实验设计,未涉及MeJA对种子萌发的影响作为对照,后续研究将引入无胁迫的MeJA处理作为空白激素对照,从而能够更清晰地区分和量化MeJA特异性缓解胁迫的功能。另外本研究所采用的客观赋权法侧重于挖掘数据本身的区分度信息。未来研究若能明确各萌发指标在育种或生态适应中的相对重要性,将采用主客观结合的赋权方式,使评价体系更为完善。
4 结论干旱胁迫、盐胁迫及旱盐复合胁迫对酸枣种子发芽势、发芽率、发芽指数、种子活力均产生显著抑制,并显著提高了相对旱害率、相对盐害率及相对旱盐复合害率。旱盐复合胁迫协同抑制种子发芽指标,胁迫强度远大于单一胁迫。MeJA可以缓解旱盐胁迫带来的种子萌发抑制,但这种缓解效果与激素浓度密切相关。通过隶属函数法筛选出的50 μmol/L的MeJA对干旱胁迫、盐胁迫及旱盐复合胁迫条件的缓解效果均最为显著,可作为最佳处理浓度。
| [1] |
刘翔宇, 张飞, 依力亚斯江·努尔麦麦提. 基于GF-3雷达数据极化分解与深度学习的干旱区绿洲土地覆被及盐渍化分级研究[J/OL]. 新疆师范大学学报(自然科学版), 1-13[2025-11-19].
|
| [2] |
范铭. 外源K2SiO3对干旱、盐及复合胁迫下甘草幼苗初级碳代谢调控效应研究[D]. 兰州: 甘肃农业大学, 2024.
|
| [3] |
吕子淼, 陈佳元, 谢建国, 等. 大豆芽期耐盐碱胁迫机制的研究进展[J]. 大豆科学, 2025, 44(5): 9-18. |
| [4] |
李蔚佳, 于淼, 魏嘉谊, 等. 外源6-BA对盐碱胁迫下大豆种子和幼苗生理特性和相关基因表达的影响[J]. 干旱地区农业研究, 2025, 43(5): 47-58, 78. |
| [5] |
夏瑾华, 袁昕. 外源褪黑素对干旱胁迫下金花菜种子萌发和试管苗生长发育的影响[J]. 湖北农业科学, 2025, 64(9): 148-156, 194. |
| [6] |
ZAREI A, CHANGIZIASHTIYANI S, MASMOUEI B, et al. The physiological and pharmacological effects of Ziziphora tenuior L.: A review study[J]. Avicenna Journal of Phytomedicine, 2022, 12(1): 16-29. |
| [7] |
丁灵, 王欣, 上官惠子, 等. 酸枣仁的化学成分及治疗失眠的作用机制研究进展[J]. 现代中医药, 2025, 45(3): 14-23. |
| [8] |
王勇. 酸枣适应干旱的生理特征和氧化还原特征物质研究[D]. 杨凌: 中国科学院研究生院(教育部水土保持与生态环境研究中心), 2016.
|
| [9] |
薛盼盼, 张强, 魏学智. 模拟干旱胁迫对酸枣种子萌发及活力的影响[J]. 西北农业学报, 2016, 25(12): 1837-1843. |
| [10] |
GUO Y, LI J, LIU L, et al. The Ca2+ channels CNGC2 and CNGC20 mediate methyl jasmonate-induced calcium signaling and cold tolerance[J]. Plant Physiology, 2025, 198(2): kiaf219. DOI:10.1093/plphys/kiaf219 |
| [11] |
REPKINA N S, TITOV A F, NILOVA I A, et al. Effect of methyl jasmonate on the gene expression, encoding non-protein thiol enzymes in wheat under cadmium[J]. Doklady Biochemistry and Biophysics, 2023, 509(1): 56-59. DOI:10.1134/S1607672923700138 |
| [12] |
李芳芳, 赵宝龙, 李汉钊, 等. 5-氨基乙酰丙酸浸种对NaCl胁迫下酸枣种子萌发及芽苗生理特性的影响[J]. 江苏农业科学, 2018, 46(17): 126-129. |
| [13] |
陈稳鹏, 苏旭, 刘玉萍, 等. 外源抗坏血酸(AsA)对干旱与盐胁迫下唐古特大黄种子萌发的影响[J]. 青海科技, 2024, 31(2): 92-103. |
| [14] |
张兰, 马淑梅, 宋谦, 等. 褪黑素浓度和浸种时长对干旱胁迫下紫花苜蓿种子萌发的影响[J]. 黑龙江畜牧兽医, 2024(3): 79-85. |
| [15] |
范铭, 张恩和, 郭凤霞. 硅元素对植物旱盐胁迫的缓解作用研究进展[J]. 甘肃农业大学学报, 2025, 60(2): 223-232. |
| [16] |
周倩, 张书源, 袁若琼, 等. 水杨酸对种子萌发的影响[J/OL]. 湘南学院学报, 1-6[2025-11-19].
|
| [17] |
景陈鸿, 梁天豪, 傅贺菁, 等. 干旱对林木生物量分配及碳氮磷库的影响研究进展[J/OL]. 应用与环境生物学报, 1-18[2025-11-19].
|
| [18] |
雷春英, 袁婷, 吉小敏, 等. 旱盐复合胁迫下盐生假木贼种子萌发特性研究[J]. 现代农业科技, 2025, 54(5): 97-100, 104. |
| [19] |
王楠, 高静, 黄文静, 等. 旱、盐胁迫下黄芪种子萌发及其对水杨酸的响应[J]. 草业科学, 2018, 35(1): 106-114. |
| [20] |
郝珉琦. 盐旱双重胁迫对蜀葵种子萌发与幼苗生长生理的影响[D]. 杨凌: 西北农林科技大学, 2025.
|
| [21] |
陈晨, 胡秋倩, 杨凯波, 等. 茉莉酸甲酯调控植物生长发育的研究进展[J]. 江苏农业科学, 2023, 51(12): 1-11. |
| [22] |
赵常钧, 王腾辉, 袁立欣, 等. 外源茉莉酸甲酯对逆境胁迫下结球甘蓝幼苗生理特性的影响[J]. 高师理科学刊, 2025, 45(8): 60-65. |
| [23] |
谢贤运. 外源茉莉酸甲酯对高温胁迫下棉花产量品质及相关生理指标的影响[D]. 武汉: 华中农业大学, 2025.
|
| [24] |
吕芳, 丁刚, 詹冬梅, 等. 茉莉酸甲酯对铜藻生长、抗氧化系统及岩藻黄素含量的影响[J]. 植物生理学报, 2019, 55(5): 667-675. |
| [25] |
康文婧, 刘媛圆, 任航, 等. 茉莉酸甲酯浸种对干旱胁迫下小黑麦种子萌发及生理指标的影响[J]. 种子, 2025, 44(5): 135-141, 150. |
| [26] |
ZHAO H, HUANG Z, ZHANG L, et al. Melatonin mitigates Na+/K+ imbalance caused by abscisic acid deficiency in rice under salt stress through regulation of energy supply[J]. Cereal Research Communications, 2025, 1-13. |
| [27] |
陈晨, 杨凯波. 盐胁迫对植物生长发育的影响[J/OL]. 分子植物育种, 1-15[2025-11-19].
|
| [28] |
王广义. 外源MeJA及SHAM对玉米幼苗盐胁迫响应和基因表达的影响[D]. 大庆: 黑龙江八一农垦大学, 2025.
|
| [29] |
梁含云, 李先宽, 王广苹, 等. 外源茉莉酸甲酯对盐胁迫酸枣幼苗的生理影响[J]. 西北农业学报, 2025, 34(9): 1677-1684. |
| [30] |
刘阳, 陈泓毅, 朱奕, 等. 外源茉莉酸甲酯对猴樟幼苗耐碱性的影响[J]. 安徽农学通报, 2025, 31(20): 69-73. |
| [31] |
崔玮桐. 外源茉莉酸甲酯增强迷迭香耐高温性的生理与分子机理研究[D]. 郑州: 河南农业大学, 2025.
|
| [32] |
葛亚伟, 梁婷, 孙亚倩, 等. 外源茉莉酸甲酯对盐胁迫下菊花生理指标的影响[J]. 河北农业科学, 2025, 29(2): 46-51, 57. |
| [33] |
赵雪蕊, 王勇, 孙得翔, 等. 外源茉莉酸甲酯对马铃薯镉胁迫的影响[J]. 甘肃农业大学学报, 2025, 60(2): 114-121. |