 2026, Vol. 45
文章信息
- 罗铃潇, 张明珠, 吴亭彧, 胡思娜, 包乌吉斯古冷, 孙鲁英
- LUO Lingxiao, ZHANG Mingzhu, WU Tingyu, HU Sina, BAO Wujisiguleng, SUN Luying
- 基于网络药理学、分子对接和动物实验探究芪蛭痛风颗粒治疗高尿酸血症的作用机制
- Exploring the mechanism of Qizhi Tongfeng Granules in the treatment of hyperuricemia using network pharmacology, molecular docking, and animal experiments
- 天津中医药大学学报, 2026, 45(8): 947-957
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(8): 947-957
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.08.09
-
文章历史
收稿日期: 2026-03-12


引用本文 |


2. 北京中医药大学房山医院,北京 102400;
3. 中国中医科学院西苑医院,北京 100091
2. Fangshan Hospital, Beijing University of Chinese Medicine, Beijing 102400, China;
3. Xiyuan Hospital, China Academy of Chinese Medical Sciences, Beijing 100091, China
高尿酸血症(HUA)是体内嘌呤代谢体系紊乱,合成过多或排泄较少所引发的代谢性疾病 [1],是慢性肾脏病、心脑血管疾病等多种疾病的独立危险因素 [2-4]。随着生活水平的提升和饮食结构的改变,HUA患病率近年来呈现明显上升和年轻化趋势 [5-6]。长期未控制的HUA可导致尿酸盐晶体在肾脏和关节滑膜组织沉积,从而引发尿酸性肾病、痛风性关节炎等并发症 [7]。目前常用的降尿酸药物如抑制尿酸合成的别嘌醇、非布司他,以及促进排泄的苯溴马隆等虽有效 [8],但其长期使用普遍存在不良反应,且作用靶点单一、临床疗效有限。因此,降尿酸治疗的达标率和长期安全性是目前临床上的重点及难点。中医药治疗HUA具有多成分、多靶点、多通路调控的特点,不仅可有效降尿酸,还可防治相关并发症,且不良反应发生率较低,展现出独特的治疗优势。
中医学认为,HUA隶属于“痛风”“痹证”“历节”等范畴,其病机核心在于脾胃功能失调,或因先天禀赋不足,或因后天饮食不节,导致脾失健运,水湿内停,湿聚成痰,久则化痰瘀、生内热,最终闭阻经络,发为HUA[9]。孙鲁英教授根据长期的临床实践总结出本病病机为脾虚浊瘀痹阻,提出健脾泄浊化瘀治法,选药立方芪蛭痛风颗粒(QZTF)治疗HUA[10]。该方由黄芪、水蛭、茯苓、白术、川芎等药味组成,临床应用发现对于HUA具有良好疗效。课题组前期临床研究已证实,健脾化湿、泄浊活血法能有效降低血尿酸、改善中医证候、预防痛风发作且安全性良好 [11-12]。基于此法优化的QZTF,以益气健脾为本,结合泄浊化瘀之法,体现“标本兼治”的整体调节特点,毒副作用低,具备良好的临床安全性,展现出区别于现代化学药物受限于作用靶点单一、不良反应明显的独特优势。且相较其他具有降尿酸疗效的中药多侧重于清热利湿,本方攻补兼施,在延缓疾病进展、预防痛风发作及并发症方面具有潜在优势,为HUA的中医药治疗提供了新方向。
目前QZTF降尿酸的活性成分和作用机制尚不明确,因此本研究结合网络药理学和分子对接技术,以HUA大鼠为模型探讨其作用机制,为其临床应用提供科学依据。
1 实验材料 1.1 实验动物6~7周龄健康SD雄性大鼠,体质量(180±10)g,购于北京维通利华实验动物技术有限公司(许可证编号:SCXK(京)2016-0006)。所有动物饲养于SPF级屏障环境实验动物室(许可证编号:SYXK(京)2020-0013),动物房保持恒温(22± 2)℃、恒湿(50±10)%,光照12 h明暗交替,动物给予普通饲料、自由饮水。本实验已通过北京中医药大学东直门医院医学部实验动物福利与伦理委员会审查批准(批准号:21-53)。
1.2 仪器高速冷冻离心机(德国Eppendorf公司,型号Centrifuge 5804R);紫外光度仪(日本SHIMADZU公司Japan,型号UV-2450);PCR循环仪(美国Labnet公司,型号MultiGene Gradient);荧光定量PCR循环仪(中山大学达安基因股份有限公司,型号DA7600);核酸电泳仪(北京六一仪器厂,型号DYY-6B);凝胶成像仪(美国BIO-RAD公司,型号Gel Doc XR)。
1.3 药物及试剂芪蛭痛风颗粒,组方包括黄芪、烫水蛭、茯苓、麸炒白术、川芎、醋莪术、麸炒苍术、薏苡仁、土茯苓、绵萆薢、炒白芍、川牛膝、炙甘草共13味药材(由北京中医药大学东直门医院中药库提供);阳性对照药选用非布司他片(杭州朱养心药业有限公司,批准文号:国药准字H20130009),该药物作为目前HUA的临床一线用药,具有显著的黄嘌呤氧化酶抑制作用 [7],且已获得我国国家药品监督管理局批准上市;氧尼酸钾盐(德国Sigma公司,批号156124-100G);肌酐(CRE)测定试剂盒(南京建成生物工程研究所,批号C011-2-1);血尿素氮(BUN)测定试剂盒(南京建成生物工程研究所,批号C013-1-1);尿酸(UA)测定试剂盒(南京建成生物工程研究所,批号C012-1-1);黄嘌呤氧化酶(XOD)测定试剂盒(南京建成生物工程研究所,批号A002-1-1);cDNA第一链合成试剂盒(立陶宛Fermentas公司,批号K1622);实时荧光定量PCR预混液(SYBR Green)(日本TOYOBO公司,批号QPK201);总RNA抽提试剂(美国Invitrogen公司,批号15596-026)。
2 方法 2.1 网络药理学和分子对接 2.1.1 药物活性成分与作用靶点筛选通过中药系统药理学数据库(TCMSP)(https://old.tcmsp-e.com/tcmsp.php)检索QZTF组方的中药,筛选条件为口服生物利用度≥30%,类药性≥0.18,汇总经TCMSP数据库检索得到的活性成分。以probability>0为筛选条件,通过成分靶点预测平台Swiss Target Prediction筛选药物成分的作用靶点。合并所有药物的靶点并剔除重复靶点,获得QZTF作用的潜在靶点,并利用Uniprot数据库(https://www.uniprot.org/)标准化所筛选的作用靶点。
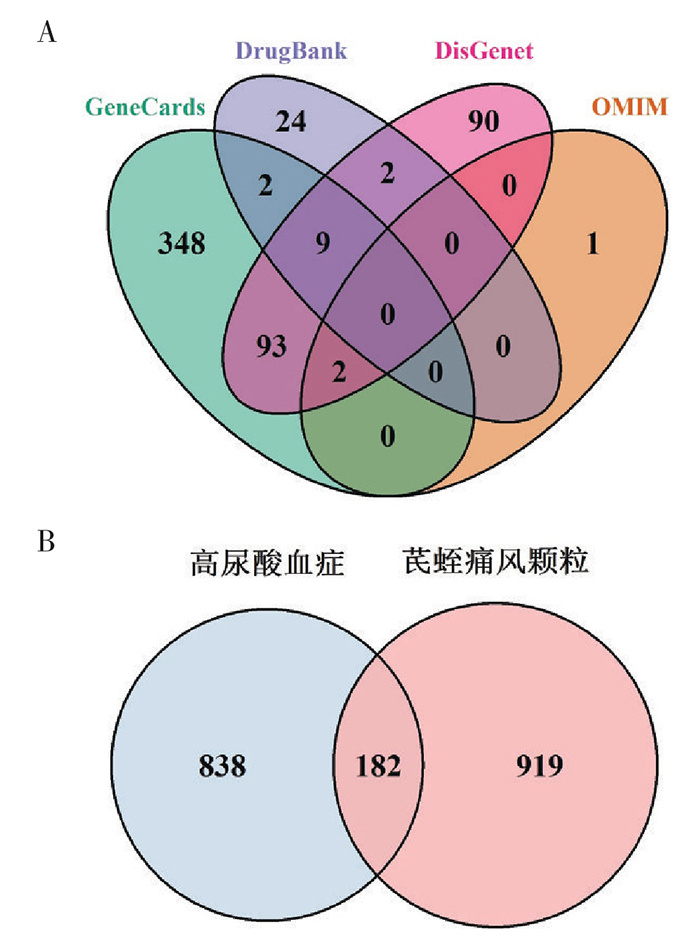
2.1.2 疾病靶点筛选以“hyperuricemia”“uric acid”为关键词,分别在DrugBank(https://go.drugbank.com)、OMIM(https://www.omim.org)、GeneCards(https://www.genecards.org)、DisGeNET(https://disgenet.com)数据库中对HUA的潜在靶点进行筛选,在R 4.3.1中采用VennDiagram包对所有数据库的疾病靶点取交集得到HUA的潜在靶点,并绘制韦恩图。
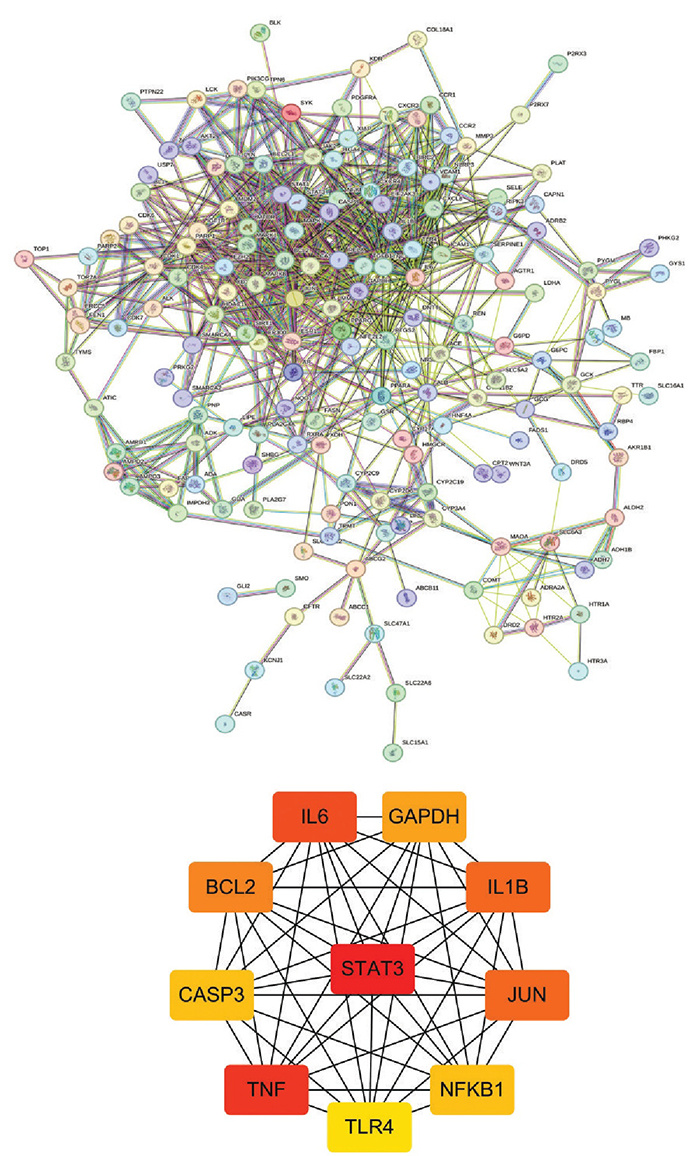
2.1.3 药物-疾病交集靶点筛选及蛋白质相互作用(PPI)网络构建通过R 4.3.1的VennDiagram包,对药物活性成分靶点与疾病靶点取交集,并绘制韦恩图。使用Cytoscape 3.10.2的CytoHubba插件进行网络拓扑分析,依据度中心性(Degree)、紧密中心性(Closeness)、邻域组件中心性(MNC)、边缘渗透组件中心性(EPC)算法计算得到交集前10个核心活性成分。将得到的药物-疾病交集靶点输入至STRING数据库(https://string-db.org/),选择物种“Homo Sapiens”,设置minimum required interaction score为high confidence(0.700),获得PPI网络图,依据上述算法得到前10位Hub靶点。
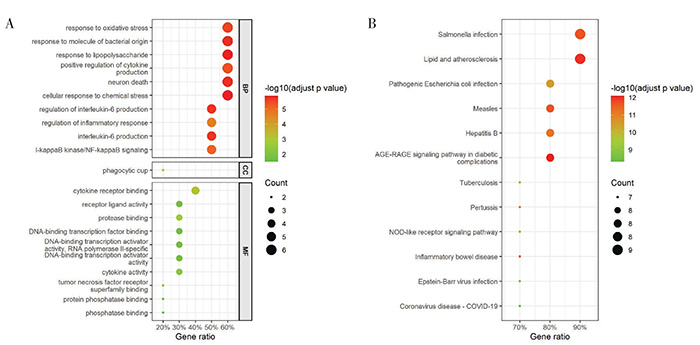
2.1.4 基因本体(GO)及京都基因与基因组百科全书(KEGG)通路富集分析在R 4.3.1中使用clusterProfiler、pathview、DOSE等R包,对交集靶点进行GO与KEGG通路富集分析,以“P < 0.05”为筛选条件选择显著通路。其中GO分析分别对生物过程(BP)、细胞组分(CC)和分子功能(MF)选择前10条,KEGG分析选择前12条,通过ggplot2包对所获得的富集分析结果进行可视化,绘制Gene ratio气泡图。
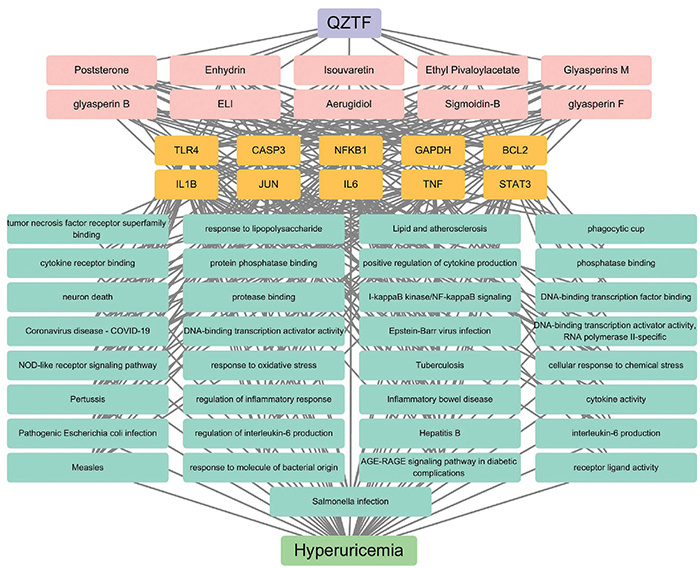
2.1.5 成分-靶点-疾病网络的构建采用Cytoscape 3.10.2对药物核心成分、核心靶点、富集通路以及疾病进行可视化处理,构建“成分-靶点-通路-疾病”网络。
2.1.6 分子对接通过PubChem数据库获取活性成分的三维结构,在Python软件使用Rdkit包给小分子添加氢原子与能量最小化,用Meeko包的mk_prepare_ligand.py脚本将药物活性成分处理转换为PDBQT格式 [13]。通过RCSB PDB数据库获取Hub靶点蛋白的三维结构,使用Open-Source PyMOL软件移除受体蛋白的水分子和自由基并添加氢原子,用Meeko包的mk_prepare_receptor.py脚本处理转换为PDBQT格式。对接盒子的中心坐标设置为每个受体蛋白的几何中心,其尺寸取决于受体蛋白在X、Y、Z方向上的最大范围,并确保能够充分覆盖蛋白分子。在AutoDock Vina 1.2.7软件中执行分子对接,计算分子结合能以评估化合物与目标蛋白之间的结合亲和力 [14]。若亲和力 < 0 kcal/mol表示配体和受体能自发结合,结合能越低代表亲和力越强,结合越稳定,选择结合能 < -5 kcal/mol为阈值标准。最后在Open-Source PyMOL软件中可视化配体在受体结合位点中的结合模式,包括其与关键氨基酸残基形成的氢键相互作用。
2.2 动物实验方法 2.2.1 实验分组及造模将36只雄性SD大鼠适应性喂养1周后,根据体质量进行区组随机分为对照组、模型组、QZTF组和阳性药物组,每组9只。样本量基于动物实验的3R原则,以显著性水平α=0.05、检验效能(1-β)=0.8为参数,结合前期预实验结果,计算得出每组最低样本量为6只,考虑到实验过程中的动物损耗及样本制备中可能的失败率,本研究最终确定每组样本量为9只。除对照组外,其余各组大鼠均腹腔注射氧嗪酸钾混悬液1 mL/100 g,每天2次,连续注射1周。末次给药16 h后尾静脉取血,测定血清尿酸水平。与对照组比较,血尿酸升高且具有统计差异为HUA模型成功。对照组和模型组给予等量蒸馏水,QZTF组给予芪蛭痛风颗粒18 g/(kg·d)每日1次,阳性药物组给予非布司他3.43 mg/(kg·d),每日1次,连续灌胃2周。干预2周后,各组大鼠麻醉解剖后采集血清及肝肾组织,腹主动脉取血。
2.2.2 酶联免疫(ELISA)法检测血清尿酸、肌酐、尿素水平及肝脏XOD活性取大鼠血清及肝脏组织,严格按照检测试剂盒的说明书检测血清尿酸、肌酐、尿素氮的水平及肝脏黄嘌呤氧化酶的活性。
2.2.3 实时荧光定量PCR(qPCR)法检测肾脏尿酸盐阴离子转运体1(URAT1)、葡萄糖转运体9(GLUT9)mRNA表达水平取大鼠肾脏组织适量,按照RNA提取试剂盒说明书步骤操作,提取总RNA进行离心,测定其纯度及浓度。每组总RNA用1ml总RNA抽提试剂提取,在4 ℃下12 000 r/min离心10 min(离心半径为9.5cm),用分光光度计测定样品纯度和浓度,测定样品在260 nm和280 nm的吸收值确定RNA的质量。根据说明书,将从肾脏组织中提取的总RNA逆转录合成cDNA,反应条件为65 ℃、5 min,70 ℃、10 min。通过实时荧光定量PCR预混液预处理后,进行PCR扩增反应,反应条件:预变性95 ℃、5 min,变性95 ℃、15 s,退火60 ℃、20 s,延伸72 ℃、40 s,40个循环。分析扩增曲线,计算Ct值,以GAPDH为内参,采用2-ΔΔCt法计算目的基因相对表达水平,所用引物序列如表 1所示。
| 基因 | Sense primer | Antisense primer |
| Rat-GAPDH | 5-TCAAGAAGGTGGTGAAGCAG-3 | 5-AGGTGGAAGAATGGGAGTTG-3 |
| Rat-URAT1 | 5-TCCCATGGCCTCCAGATTAC-3 | 5-TCATATGCATGCCACACAGC-3 |
| Rat-GLUT9 | 5-CCACGAAAGCCTTCCAAACA-3 | 5-CCCTCAGAAGCTCAAACACG-3 |
应用SPSS 29.0软件进行统计分析。采用夏皮罗-威尔克检验法(Shapiro-Wilk)和柯尔莫戈洛夫-斯米诺夫检验法(Kolmogorov-Smirnov)分析数据是否符合正态分布,计量资料如符合正态分布,以均值±标准差(x±s)表示,如不符合正态分布的则以中位数和四分位数M(Q1,Q3)表示。列文(Levene)法分析方差齐性。若为正态分布且方差齐,多组间比较采用单因素方差分析(One-Way ANOVA),组间两两比较采用最小显著性差异t检验(Least-significant Difference)。若不符合正态分布或方差不齐,采用克鲁斯卡尔-沃利斯(Kruskal-Wallis)秩和检验方法,组间两两比较采用邓恩检验(Dunn’s Test),经邦费罗尼(Bonferroni)校正法调整检验水准。P < 0.05为差异有统计学意义。
3 结果 3.1 网络药理学及分子对接分析结果 3.1.1 QZTF活性成分及作用靶点信息通过TCMSP数据库获取QZTF活性成分的化合物结构,将其导入Swiss Target Prediction数据库预测获得QZTF的药物作用靶点,共获取1 101个药物活性成分靶点。
3.1.2 QZTF防治HUA的潜在靶点分别通过GeneCards、OMIM、DrugBank和DisGeNet数据库筛选获得HUA相关靶点454个、3个、37个和196个,合并去重后最终筛选出1 020个HUA相关靶点。将其与1 101个药物活性成分靶点取交集后,共获得182个交集靶点,即为QZTF治疗HUA的潜在靶点(图 1)。
|
| 注:A,不同数据库中HUA相关的靶点;B,HUA靶点与QZTF靶点的韦恩图。 图 1 药物-疾病靶点的韦恩图 |
通过Cytoscape 3.10.2进行可视化STRING获得的PPI数据(图 2),最终得到包含182个节点和8 860条边,聚类系数为0.481 0的拓扑网络。依据Degree、Closeness、MNC、EPC算法计算的交集取前10个核心活性成分,最终筛选出QZTF防治HUA的核心靶点包括信号转导和转录激活因子3(STAT-3)、肿瘤坏死因子(TNF)、白细胞介素-6(IL-6)、Jun原癌基因(JUN)、白细胞介素-1β(IL-1β)、细胞凋亡调节因子2(BCL-2)、甘油醛-3-磷酸脱氢酶(GAPDH)、核因子Kappa B亚基1(NF-κB1)、半胱氨酸天冬氨酸蛋白酶3(Caspase-3)、Toll样受体4(TLR4)。这10种核心蛋白在网络中表现出高度的节点连接度,与作用靶点关联密切,且与其他靶点的相关性明显,发挥枢纽调节作用,提示这些蛋白可能是QZTF治疗HUA的核心靶点。
|
| 注:A,STRING数据库PPI网络图;B,基于Degree算法得到的核心靶点PPI网络图。图B节点Degree值越大颜色越红 图 2 QZTF治疗HUA交集靶点PPI网络图 |
经过GO和KEGG分析并根据校正P值和count值进行排序绘制气泡图。GO分析富集了64个术语(P < 0.05),其中BP46个、CC1个、MF17个(图 3A),涉及的BP主要涉及对脂多糖的反应、对氧化应激的反应、IL-6的产生、NF-κB信号通路等,CC涉及调控吞噬杯,MF主要涉及细胞因子受体结合、蛋白酶绑定、细胞因子活性、RNA聚合酶Ⅱ特异性DNA结合转录激活因子活性、DNA结合转录激活因子活性、DNA结合转录因子结合、受体配体活性、肿瘤坏死因子受体超家族结合、调节炎症反应等。KEGG分析富集了97条信号通路(P < 0.05)(图 3B),QZTF作用于HUA的通路众多,包括脂质代谢、蛋白质糖基化相关的AGE-RAGE信号通路、NOD样受体信号通路等。
|
| 图 3 GO功能(A)与KEGG通路(B)富集分析 |
采用Cytoscape 3.10.2软件构建成分-靶点-疾病的多层级作用网络图(图 4)。该网络图整合了QZTF的关键活性成分、核心作用靶点、显著富集的通路及相关疾病,从系统层面全面呈现其可能的药效机制与调控路径。将数据导出分析,依据Degree、Closeness、MNC、EPC算法,发现排名靠前的药物活性成分有粗毛甘草素F(Glyasperin F)、乙状结肠素B(Sigmoidin-B)、粗毛甘草素B(Glyasperin B)、ELI、粗毛甘草素M(Glyasperins M)、莪术二醇(Aerugidiol)、坡斯特甾酮(Poststerone)、沼菊素(Enhydrin)、Isouvaretin、新戊酰乙酸乙酯(Ethyl Pivaloylacetate)等。
|
| 图 4 成分-靶点-疾病网络图 |
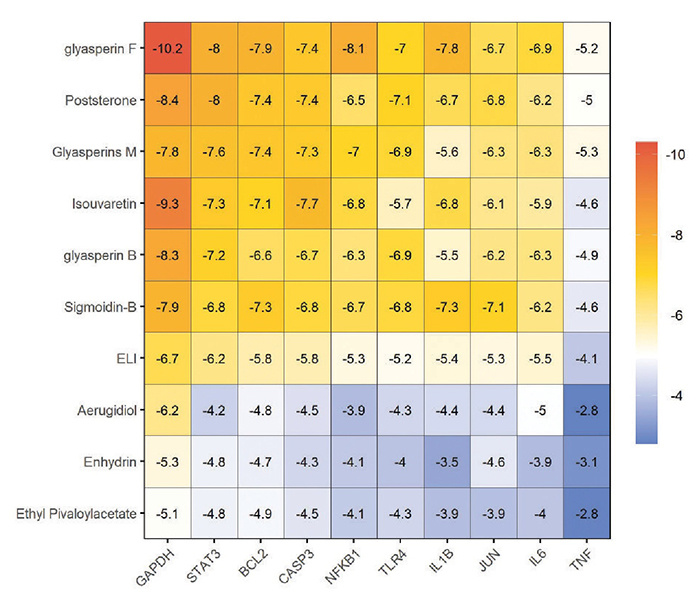
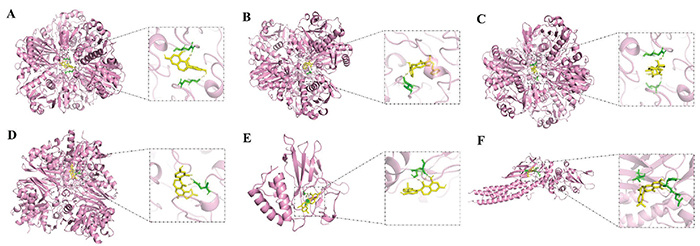
选择PPI网络中degree值排名前10的核心靶点为分子对接的受体,PDB ID依次为STAT3(6NJS)、TNF(5UUI)、IL6(1ALU)、JUN(6Y3V)、IL1B(8RYS)、BCL2(8HTS)、GAPDH(6YND)、NF-κB1(8TQD)、CASP3(2DKO)、TLR4(2Z62),degree值排名前10的活性成分作为分子对接的配体,进行分子对接验证。对接结果显示,QZTF的核心活性成分与HUA的Hub靶点蛋白的结合能均为负值,且大部分小于-5.0 kcal/mol(图 5),其中GAPDH、STAT-3、BCL-2、Caspase-3、NF-κB1、TLR4、IL-1β、JUN以及IL-6与核心活性成分对接情况较好。选择结合能最低的6对组合可视化处理,展示对接构象(图 6)。Glyasperin F与GAPDH基因的GLN-204残基形成2个氢键,氢键长度分别为2.0、2.5 Å。Isouvaretin与GAPDH基因的THR-52残基形成1个氢键,氢键长度为2.3 Å。Poststerone与GAPDH基因的GLN-204和LEU-203残基各形成1个氢键,氢键长度分别为1.9、3.3 Å。Glyasperin B与GAPDH基因的ASN-287残基形成2个氢键,氢键长度分别为2.5、2.6 Å。Glyasperin F与NF-κB1基因的SER-112残基形成1个氢键,氢键长度为3.0 Å,GLY-121残基形成2个氢键,氢键长度分别为2.7、1.8 Å。Glyasperin F与STAT3基因的THR-440、HIS-437和LEU-436残基各形成1个氢键,氢键长度分别为2.2、2.8、2.2 Å。氢键是蛋白质结构中重要的非共价相互作用之一,其形成在维持复合物结构方面起关键作用。因此,在自然条件下,QZTF的核心活性成分与HUA的Hub靶点蛋白具有较好的结合活性与稳定性,可形成稳定的对接结构,证实了网络药理学结果的可靠性。
|
| 图 5 QZTF核心活性成分与Hub靶点蛋白分子对接结合能 |
|
| 注:左图为整体结合姿势,右图为与残基相互作用细节,图中黄色虚线表示氢键作用。A,Glyasperin F和GAPDH;B,Isouvaretin和GAPDH;C,Poststerone和GAPDH;D,Glyasperin B和GAPDH;E,Glyasperin F和NF-κB1;F,Glyasperin F和STAT3。 图 6 分子对接可视化结果 |
如表 2所示,与对照组相比,HUA组大鼠的血清尿酸显著升高(P < 0.001),表明HUA造模成功。与HUA组相比,QZTF组和FBST组干预后能使血清尿酸明显下降(P < 0.001,P < 0.05)。QZTF组与FBST组比较,血清尿酸均下降,两组间无统计学差异。上述结果表明,QZTF能有效降低HUA大鼠的血清尿酸水平,作用与非布司他相仿。
| 组别 | 动物数 | 尿酸(mg/dL) |
| 对照组 | 9 | 4.33(4.17, 4.79) |
| HUA组 | 9 | 7.48(5.86, 7.73)*** |
| QZTF组 | 9 | 4.48(4.24, 4.89)### |
| FBST组 | 9 | 4.69(4.36, 5.01)# |
| 注:与对照组比较,***P < 0.001;与HUA组比较,###P < 0.001,#P < 0.05。 | ||
如表 3所示,与对照组相比,HUA组大鼠的血清尿素氮、肌酐水平无明显统计学差异。QZTF、非布司他干预后,大鼠的血清尿素氮、肌酐水平无明显变化,无统计学差异。上述结果表明QZTF治疗HUA大鼠未引起肾功能损害。
| 组别 | 动物数 | 肌酐(μmol/L) | 尿素氮(mmol/L) |
| 对照组 | 9 | 21.90(20.35, 26.25) | 79.30(63.90, 83.35) |
| HUA组 | 9 | 25.85(23.70, 27.80) | 80.05(78.35, 91.68) |
| QZTF组 | 9 | 23.85(21.80, 26.33) | 72.20(68.25, 77.63) |
| FBST组 | 9 | 25.00(23.33, 26.90) | 76.40(69.40, 90.68) |
如表 4所示,与对照组相比,HUA组大鼠的血清和肝脏黄嘌呤氧化酶活性均显著升高(P < 0.01)。与HUA组相比,QZTF组和FBST组干预后能使之明显下降(P < 0.05)。与QZTF组比较,FBST组血清和肝脏黄嘌呤氧化酶活性抑制幅度大,有显著性差异(P < 0.01)。上述结果表明,QZTF治疗可有效抑制HUA大鼠黄嘌呤氧化酶活性,但其抑制作用弱于非布司他。
| 组别 | 动物数 | 血清XOD(U/L) | 肝脏XOD(U/g) |
| 对照组 | 9 | 10.07±0.98 | 1.94±0.20 |
| HUA组 | 9 | 20.21±0.77** | 2.64±0.24** |
| QZTF组 | 9 | 14.10±0.89# | 2.35±0.25# |
| FBST组 | 9 | 12.34±1.19#△△ | 1.84±0.16#△△ |
| 注:与对照组比较,**P < 0.01,与HUA组相比,#P < 0.05,与QZTF组比较,△△P < 0.01。 | |||
如表 5和表 6所示,与对照组相比,HUA组和FBST组大鼠URAT1 mRNA和GLUT9 mRNA表达显著升高(P < 0.01)。与HUA组比较,QZTF干预后能明显下调URAT1 mRNA和GLUT9 mRNA的表达(P < 0.01)。与FBST组比较,QZTF组URAT1 mRNA和GLUT9 mRNA表达明显降低(P < 0.01)。上述结果表明,QZTF治疗可有效抑制肾脏尿酸盐阴离子转运体URAT1 mRNA和葡萄糖转运体GLUT9 mRNA表达,减少HUA大鼠肾脏组织对尿酸的重吸收。
| 组别 | 动物数 | URAT1 mRNA |
| 对照组 | 9 | 0.25(0.25, 0.37) |
| HUA组 | 9 | 0.93(0.82, 1.26)** |
| QZTF组 | 9 | 0.39(0.24, 0.43)##△△ |
| FBST组 | 9 | 0.89(0.86, 1.09)** |
| 注:与对照组比较,**P < 0.01,与HUA组相比,##P < 0.01,与FBST组比较,△△P < 0.01。 | ||
| 组别 | 动物数 | GLUT9 mRNA |
| 对照组 | 9 | 0.36(0.33, 0.45) |
| HUA组 | 9 | 1.39(1.32, 1.57)** |
| QZTF组 | 9 | 0.38(0.35, 0.41)##△△ |
| FBST组 | 9 | 1.32(1.22, 1.59)** |
| 注:与对照组比较,**P < 0.01,与HUA组相比,##P < 0.01,与FBST组比较,△△P < 0.01。 | ||
HUA是临床常见的代谢性疾病之一,其发病机制与嘌呤代谢异常密切相关,表现为血清尿酸水平的异常升高。血尿酸水平的持续升高可引起关节、肾脏以及血管壁等急慢性炎症损伤,累及多脏器。目前临床上HUA的治疗药物受限于作用靶点单一、不良反应明显,而中医药则具有多组分协同作用和多通路整合效应的特点,毒副作用低,具备良好的临床安全性。该研究通过整合生物信息学和网络药理学方法,系统阐明QZTF治疗HUA的核心活性成分及调控机制,并运用分子对接技术评估核心活性成分与Hub靶点蛋白的结合稳定性,构建HUA大鼠模型探索QZTF治疗HUA的降尿酸机制。
该研究网络药理学结果表明,QZTF可能通过粗毛甘草素F、乙状结肠素B、ELI、粗毛甘草素B等多种活性成分,作用在STAT-3、TNF、IL-6、IL-1β、BCL-2、Caspase-3、GAPDH、NF-κB、Caspase-3、TLR4多个疾病靶点蛋白,调控炎症反应、氧化应激等过程,发挥治疗HUA的作用。正常情况下,人体血液中尿酸的最大溶解度为420 μmol/L(约7 mg/dL),当血尿酸超过饱和浓度时,尿酸盐晶体析出并沉积于肾脏组织,刺激肾小管上皮细胞并通过上述通路放大局部炎症反应,促使中性粒细胞浸润并释放IL-1β、IL-6、TNF-α等促炎细胞因子 [15-16],高炎症刺激又会进一步加剧肾实质细胞氧化应激损伤 [17],导致炎症反应与肾功能损伤加重,进而影响肾脏尿酸的排泄。STAT3作为关键转录调控因子,与免疫炎症反应、纤维化以及癌症的发展密切相关 [18]。其参与的JAK2/STAT3信号通路作为由细胞因子调节的主要信号通路,在细胞增殖、凋亡及免疫应答等活动中起重要作用。该通路由细胞因子和干扰素触发,产生IL-1β、TNF-α等下游炎症靶基因,进一步引发机体炎症反应。同时,STAT3可通过转录激活BCL-2基因表达,抑制细胞凋亡,从而延长炎症细胞(如巨噬细胞、T细胞)的存活周期,促使炎症迁延 [19]。IL-6作为炎症细胞因子,还可激活JAK2/STAT3信号通路,招募活化炎症细胞,促进炎症发生 [20-21]。多项研究表明,抑制JAK2/STAT3信号通路可以抑制炎症因子的释放,从而缓解HUA的炎症反应及组织损伤 [22-23]。GAPDH是糖酵解过程中的关键酶之一,而尿酸代谢经由糖酵解途径,有研究发现在2型糖尿病、肥胖及高血压等代谢紊乱状态下,糖酵解关键酶GAPDH的活性下降,这种下降可能通过影响机体代谢促进内源性尿酸生成增多,可能与HUA的发生相关 [24]。TLR4/NF-κB信号通路参与机体外源性和内源性免疫应答,调控细胞增殖、凋亡及细胞炎性反应等过程。尿酸沉积形成的尿酸盐晶体及其诱导的细胞应激产物,通过激活细胞表面的TLR4及其受体P9,触发免疫应答,激活NF-κB信号通路 [25],驱动免疫应答的级联反应,包括募集NLRP3炎症小体,促进TNF、IL-1β等炎症因子的转录、合成和释放 [26],这些细胞因子进一步激活NF-κB,形成持续的正反馈,最终导致炎症反应的级联放大效应 [27]。本研究通过分子对接分析验证了QZTF的主要活性成分与HUA的核心靶点蛋白之间具有良好的亲和力,以上靶点可能为QZTF发挥治疗作用的关键靶点。
该研究通过动物实验验证了QTZF可显著降低HUA大鼠血尿酸水平,且与非布司他疗效相近。尿酸的来源分为内源性合成和外源性摄入两部分,内源性合成占80%~90%,主要来自体内核酸分解代谢;外源性来源占10%~20%,来自高嘌呤食物的摄入。嘌呤经过一系列酶促反应最终生成尿酸,其中XOD是调控尿酸生成的关键限速酶,参与人体嘌呤代谢终产物尿酸的生成。XOD主要分布于肝脏、肠道组织,在肝脏中XOD催化黄嘌呤和次黄嘌呤氧化生成尿酸 [28],因此成为治疗HUA的重要靶点。XOD由两个亚基组成,每个亚基包括钼蝶呤中心、黄素腺嘌呤二核苷酸中心和铁硫中心。其中钼蝶呤中心是XOD调节尿酸生成的主要功能区域 [29],黄嘌呤氧化酶抑制剂主要作用在钼蝶呤中心,调节次黄嘌呤和黄嘌呤的分解代谢,抑制尿酸的形成 [30-31]。XOD催化过程可通过一氧化氮(NO)、钙信号等途径产生大量活性氧自由基(ROS),诱发氧化应激与炎症损伤 [32-33],导致肾小管上皮细胞氧化损伤,肾脏排泄尿酸的功能下降,则进一步加剧了尿酸代谢紊乱。因此,当XOD的活性受到抑制时,尿酸的生成量减少,则可达到降低血清尿酸的效果。本研究结果显示,与HUA组相比,QZTF组和FBST组血清和肝脏XOD活性明显下降,且与QZTF组比较,FBST组血清和肝脏XOD活性抑制幅度大,表明QZTF可通过抑制尿酸生成限速酶XOD的活性,减少尿酸合成,提示QZTF能够抑制尿酸生成从而发挥降尿酸的效果。尽管QZTF降尿酸疗效与非布司他相仿,但对XOD的抑制作用明显弱于非布司他,提示该复方存在其他降尿酸靶点及通路。
人体生成的尿酸约有2/3经肾脏途径排出,其排泄过程受肾脏尿酸转运蛋白的调控,尤其是GLUT9和URAT1[34]。URAT1、GLUT9作为肾脏尿酸重吸收过程中的关键转运蛋白,成为降尿酸药物的重要靶点。URAT1由SLC22A12基因编码 [35],是血清尿酸调节的关键转运蛋白,存在于肾小管近端小管上皮细胞刷状缘,其主要作用是利用管腔两侧的浓度梯度和化学梯度差调节尿酸盐与阴离子的交换,进而促使尿酸盐从近端肾小管腔内转运至肾小管上皮细胞内 [36]。GLUT9由SCL2A9基因编码 [37],是调节血清尿酸的重要转运蛋白,存在于肾小管上皮细胞基底外侧膜,其主要作用是调控细胞内的尿酸转移至肾间质,完成从尿液中重吸收尿酸到血液的过程 [38]。有研究显示,以URAT1基因敲除小鼠为研究对象,对其进行血清尿酸检测,发现与普通小鼠比较基因敲除小鼠血清UA升高,结果说明URAT1功能缺失影响尿酸重吸收 [39]。另一项研究也发现,存在于大鼠肾脏上的URAT1调节肾脏尿酸重吸收,且作用方式与人类相同 [40]。Kimura等 [41]以GLUT9基因突变小鼠为研究对象,研究结果提示GLUT9功能突变导致尿酸重吸收功能障碍,尿酸排泄减少,血清尿酸水平增高。因此,以尿酸重吸收转运蛋白URAT1、GLUT9为作用靶点,下调URAT1、GLUT9 mRNA表达,减少尿酸重吸收,增加尿酸排泄,可达到降低血尿酸水平的效果。本研究结果与上述研究结果具有一致性,与HUA组和FBST组相比,QTZF组可显著下调肾脏URAT1和GLUT9 mRNA表达,表明QZTF可能通过调控肾脏尿酸转运蛋白,减少近端小管上皮细胞对尿酸的重吸收,且增加尿酸的排泄,从而改善HUA。
综上所述,该研究采用网络药理学结合分子对接和动物实验两方面的研究,多角度探讨了QZTF治疗HUA的作用机制,QZTF可能通过调控IL-6、STAT3、NF-κB、TLR4等炎症信号通路有效抑制炎症因子的释放,缓解细胞炎症反应与氧化应激损伤,改善尿酸代谢紊乱,同时可抑制XOD活性减少尿酸的生成、调控尿酸转运蛋白抑制尿酸的重吸收,从而达到降低血清尿酸水平的目的,为其临床应用提供了科学依据。然而,该研究仍存在一定局限性,现有动物实验结果尚不能完全替代临床证据,其疗效与安全性仍需在人群中进一步验证 [42-44]。因此,未来应开展更大样本、多中心且随访时间更长的随机对照临床研究,以进一步评价QZTF治疗HUA的有效性、安全性、长期疗效及临床应用价值。
| [1] |
DINCER H E, DINCER A P, LEVINSON D J. Asymptomatic hyperuricemia: To treat or not to treat[J]. Cleveland Clinic Journal of Medicine, 2002, 69(8): 594, 597, 600-602. |
| [2] |
PONTICELLI C, PODESTÀ M A, MORONI G. Hyperuricemia as a trigger of immune response in hypertension and chronic kidney disease[J]. Kidney International, 2020, 98(5): 1149-1159. DOI:10.1016/j.kint.2020.05.056 |
| [3] |
VARELDZIS R, PEREZ A, REISIN E. Hyperuricemia: An intriguing connection to metabolic syndrome, diabetes, kidney disease, and hypertension[J]. Current Hypertension Reports, 2024, 26(6): 237-245. DOI:10.1007/s11906-024-01295-3 |
| [4] |
ZHANG X, NIE Q, ZHANG Z, et al. Resveratrol affects the expression of uric acid transporter by improving inflammation[J]. Molecular Medicine Reports, 2021, 24(2): 564. DOI:10.3892/mmr.2021.12203 |
| [5] |
HUANG J, MA Z F, ZHANG Y, et al. Geographical distribution of hyperuricemia in China: A comprehensive systematic review and meta-analysis[J]. Global Health Research and Policy, 2020, 5(1): 52. DOI:10.1186/s41256-020-00178-9 |
| [6] |
LI Y, SHEN Z, ZHU B, et al. Demographic, regional and temporal trends of hyperuricemia epidemics in mainland China from 2000 to 2019: A systematic review and meta-analysis[J]. Global Health Action, 2021, 14(1): 1874652. DOI:10.1080/16549716.2021.1874652 |
| [7] |
中华医学会内分泌学分会. 中国高尿酸血症与痛风诊疗指南(2019)[J]. 中华内分泌代谢杂志, 2020, 36(1): 1-13. |
| [8] |
中国民族卫生协会重症代谢疾病分会, 高尿酸血症相关疾病诊疗多学科共识专家组. 中国高尿酸血症相关疾病诊疗多学科专家共识(2023年版)[J]. 中国实用内科杂志, 2023, 43(6): 461-480. |
| [9] |
周倩, 金化男, 孙鲁英, 等. 中医专家对高尿酸血症的临证经验分析[J]. 北京中医药, 2016, 35(3): 238-240. |
| [10] |
吴亭彧, 张明珠, 罗铃潇, 等. 基于"健脾消癥"和"六对论治"法探讨痛风石性痛风的辨治[J]. 中国医药导报, 2025, 22(13): 157-160. |
| [11] |
李秀峰, 董霞, 魏淑凤. 健脾化湿、泄浊活血法治疗脾虚湿阻型高尿酸血症的临床疗效观察[J]. 中国临床医生杂志, 2018, 46(12): 1505-1507. |
| [12] |
张凯贤, 魏淑凤, 董霞, 等. 加味六君子汤治疗脾虚湿阻型高尿酸血症的效果及安全性[J]. 中国医药导报, 2019, 16(12): 150-153. |
| [13] |
FORLI S, HUEY R, PIQUE M E, et al. Computational protein-ligand docking and virtual drug screening with the AutoDock suite[J]. Nature Protocols, 2016, 11(5): 905-919. DOI:10.1038/nprot.2016.051 |
| [14] |
EBERHARDT J, SANTOS-MARTINS D, TILLACK A F, et al. AutoDock Vina 1.2.0: New docking methods, expanded force field, and Python bindings[J]. Journal of Chemical Information and Modeling, 2021, 61(8): 3891-3898. DOI:10.1021/acs.jcim.1c00203 |
| [15] |
MARTILLO M A, NAZZAL L, CRITTENDEN D B. The crystallization of monosodium urate[J]. Current Rheumatology Reports, 2014, 16(2): 400. DOI:10.1007/s11926-013-0400-9 |
| [16] |
GUSTAFSSON D, UNWIN R. The pathophysiology of hyperuricaemia and its possible relationship to cardiovascular disease, morbidity and mortality[J]. BMC Nephrology, 2013, 14: 164. DOI:10.1186/1471-2369-14-164 |
| [17] |
马二秀, 李思颖, 程雪瑶, 等. 藤茶总黄酮抗高尿酸血症及肾功能保护作用研究[J]. 中药药理与临床, 2021, 37(3): 80-85. |
| [18] |
SCHINDLER C W. Series introduction: JAK-STAT signaling in human disease[J]. The Journal of Clinical Investigation, 2002, 109(9): 1133-1137. DOI:10.1172/JCI0215644 |
| [19] |
XU Y, FENG S, NIU B. Silencing Stat3 inhibits viability and induces apoptosis in BGC-823 human gastric cancer cell line[J]. Biotechnic & Histochemistry, 2021, 96(1): 76-81. |
| [20] |
WANG Y, VAN BOXEL-DEZAIRE A H H, CHEON H, et al. STAT3 activation in response to IL-6 is prolonged by the binding of IL-6 receptor to EGF receptor[J]. Proceedings of the National Academy of Sciences of the United States of America, 2013, 110(42): 16975-16980. |
| [21] |
REN Q, TAO S, GUO F, et al. Natural flavonol fisetin attenuated hyperuricemic nephropathy via inhibiting IL-6/JAK2/STAT3 and TGF-β/SMAD3 signaling[J]. Phytomedi-cine, 2021, 87: 153552. DOI:10.1016/j.phymed.2021.153552 |
| [22] |
ZHANG Y, WANG S, DAI X, et al. Simiao San alleviates hyperuricemia and kidney inflammation by inhibiting NLRP3 inflammasome and JAK2/STAT3 signaling in hyperuricemia mice[J]. Journal of Ethnopharmacology, 2023, 312: 116530. DOI:10.1016/j.jep.2023.116530 |
| [23] |
LU M, YIN J, XU T, et al. Fuling-Zexie formula attenuates hyperuricemia-induced nephropathy and inhibits JAK2/STAT3 signaling and NLRP3 inflammasome activation in mice[J]. Journal of Ethnopharmacology, 2024, 319(Pt 2): 117262. |
| [24] |
NIETO F J, IRIBARREN C, GROSS M D, et al. Uric acid and serum antioxidant capacity: A reaction to atherosclerosis?[J]. Atherosclerosis, 2000, 148(1): 131-139. DOI:10.1016/S0021-9150(99)00214-2 |
| [25] |
LIAN C, SUN J, GUAN W, et al. Circular RNA circHIPK3 activates macrophage NLRP3 inflammasome and TLR4 pathway in gouty arthritis via sponging miR-561 and miR-192[J]. Inflammation, 2021, 44(5): 2065-2077. DOI:10.1007/s10753-021-01483-2 |
| [26] |
SZEKANECZ Z, SZAMOSI S, KOVCS G E, et al. The NLRP3 inflammasome-interleukin 1 pathway as a therapeutic target in gout[J]. Archives of Biochemistry and Biophysics, 2019, 670: 82-93. DOI:10.1016/j.abb.2019.01.031 |
| [27] |
ADEREM A, ULEVITCH R J. Toll-like receptors in the induction of the innate immune response[J]. Nature, 2000, 406(6797): 782-787. DOI:10.1038/35021228 |
| [28] |
ADOMAKO E A, MOE O W. Uric acid transport, transporters, and their pharmacological targeting[J]. Acta Physiolog-ica, 2023, 238(2): e13980. DOI:10.1111/apha.13980 |
| [29] |
YAN D A, ZHANG L, TIAN J Y, et al. Design, synthesis and biological evaluation of oxadiazole derivatives as xanthine oxidase inhibitors[J]. Acta Pharmaceutica Sinica, 2016, 51(6): 954-960. |
| [30] |
LI S Y, ZHANG T J, WU Q X, et al. Synthesis and biological evaluation of 5-benzyl-3-pyridyl-1H-1, 2, 4-triazole derivatives as xanthine oxidase inhibitors[J]. Medicinal Chemistry, 2020, 16(1): 119-127. DOI:10.2174/1573406415666190409112209 |
| [31] |
展鹏, 刘涛, 刘新泳. 以黄嘌呤氧化酶为靶点的新型非嘌呤类抗痛风及高尿酸血症药物研究进展[J]. 中国药物化学杂志, 2012, 22(5): 403-415. |
| [32] |
DEMIRAY A, AFSAR B, COVIC A, et al. The role of uric acid in the acute myocardial infarction: A narrative review[J]. Angiology, 2022, 73(1): 9-17. DOI:10.1177/00033197211012546 |
| [33] |
NISHIZAWA H, MAEDA N, SHIMOMURA I. Impact of hyperuricemia on chronic kidney disease and atherosclerotic cardiovascular disease[J]. Hypertension Research, 2022, 45(4): 635-640. DOI:10.1038/s41440-021-00840-w |
| [34] |
DALBETH N, GOSLING A L, GAFFO A, et al. Gout[J]. The Lancet, 2021, 397(10287): 1843-1855. DOI:10.1016/S0140-6736(21)00569-9 |
| [35] |
ENOMOTO A, NIWA T, KANAI Y, et al. Urate transporter and renal hypouricemia[J]. Rinsho Byori(The Japanese Journal of Clinical Pathology), 2003, 51(9): 892-897. |
| [36] |
HEDIGER M A. Physiology and biochemistry of uric acid[J]. Therapeutische Umschau, 2004, 61(9): 541-545. DOI:10.1024/0040-5930.61.9.541 |
| [37] |
JUTABHA P, ANZAI N, ICHIDA K, et al. Functional characterization of a novel urate efflux transporter URATv1 (SLC2A9) and its relation to renal hypouricemia[J]. The FASEB Journal, 2009, 23(S1). |
| [38] |
YANG B, XIN M, LIANG S, et al. New insight into the management of renal excretion and hyperuricemia: Potential therapeutic strategies with natural bioactive compounds[J]. Frontiers in Pharmacology, 2022, 13: 1026246. DOI:10.3389/fphar.2022.1026246 |
| [39] |
HOSOYAMADA M, TAKIUE Y, MORISAKI H, et al. Establishment and analysis of SLC22A12(URAT1) knockout mouse[J]. Nucleosides, Nucleotides & Nucleic Acids, 2010, 29(4-6): 314-320. |
| [40] |
SATO M, WAKAYAMA T, MAMADA H, et al. Identification and functional characterization of uric acid transporter Urat1(Slc22a12) in rats[J]. Biochimica et Biophysica Acta (BBA)-Biomembranes, 2011, 1808(6): 1441-1447. DOI:10.1016/j.bbamem.2010.11.002 |
| [41] |
KIMURA T, AMONPATUMRAT S, TSUKADA A, et al. Increased expression of SLC2A9 decreases urate excretion from the kidney[J]. Nucleosides, Nucleotides & Nucleic Acids, 2011, 30(12): 1295-1301. |
| [42] |
ZHANG J H, ZHANG B L, FAUCI ALICE J, et al. The Rome consensus: Good clinical trials for traditional medicine[J]. Acupuncture and Herbal Medicine, 2025, 5(3): 271-272. DOI:10.1097/HM9.0000000000000167 |
| [43] |
ZHANG B L, DONG E D, LIU L, et al. Ten recommendations for the high-quality development of traditional Chinese medicine in the new era[J]. Acupuncture and Herbal Medicine, 2025, 5(2): 131-133. DOI:10.1097/HM9.0000000000000162 |
| [44] |
ZHANG J H, CHEN X M, HUANG L Q, et al. Traditional Chinese Medicine + artificial intelligence: Wuzhen consensus[J]. Acupuncture and Herbal Medicine, 2025, 5(2): 134-135. DOI:10.1097/HM9.0000000000000163 |