 2026, Vol. 45
文章信息
- 宁宁, 杜小娟, 李芸芸, 薛盛文, 马菁
- NING Ning, DU Xiaojuan, LI Yunyun, XUE Shengwen, MA Jing
- 川芎调控PI3K/AKT/FOXO1信号轴在修复缺血性脑卒中血管内皮损伤中的机制
- Mechanism of Chuanxiong rhizoma regulating PI3K/AKT/FOXO1 signal axis in repairing vascular endothelial injury after ischemic stroke
- 天津中医药大学学报, 2026, 45(9): 1071-1078
- Journal of Tianjin University of Traditional Chinese Medicine, 2026, 45(9): 1071-1078
- http://dx.doi.org/10.11656/j.issn.1673-9043.2026.09.07
-
文章历史
收稿日期: 2026-05-09


引用本文 |


2. 中国人民解放军联勤保障部队第九四二医院消化内科,银川 750000
2. Department of Gastroenterology, 942 Hospital of Joint Logistics Support force of Chinese People's Liberation Army, Yinchuan 750000, China
中国卒中预防和控制报告的最新数据表明,40岁及以上患有卒中人数高达1 242万,造成的社会经济负担超过400亿元[1]。缺血性卒中(IS)占所有卒中病例的85%以上,其是由血管阻塞引发,导致大脑特定区域的血液供应减少[2]。最新的临床指南规定[3],IS的治疗策略主要包括抗血栓、溶栓、机械取栓和神经保护。尽管这些治疗显著减轻了脑缺血-再灌注损伤,但由于持续缺血,IS患者往往面临长期不良的结局[4]。对于那些不能进行及时溶栓或血栓切除术的患者,二级预防尤为重要。阿司匹林联合氯吡格雷是IS二级预防的标准方案,但长期应用可显著增加胃肠道出血、脑出血等不良事件的发生风险,老年患者的用药安全性尤为堪忧。这一现状凸显了研发替代疗法与新型药物以优化IS防治策略的迫切性[5]。川芎(CR)是一种伞形科藁本属植物,始载于《汤液本草》,可用于活血行气,祛风止痛,并能改善脑缺血性损害[6]。最近研究发现,CR促进IS损伤后血管内皮细胞的新生,然而,关于其作用机制仍有待进一步研究[7]。磷酸肌醇3-激酶(PI3K)参与调节各种生物过程,蛋白激酶B(AKT)是PI3K信号通路的主要下游分子,PI3K/AKT途径在介导细胞存活和血管生成中起着调节作用[8]。转录因子叉头盒O1(FOXO1)是PI3K/AKT途径的主要下游分子,可被细胞核中的AKT磷酸化,促进FOXO1易位至细胞质并发挥抑制作用[9]。已证实,PI3K/AKT/FOXO1信号通路参与驱动血管生成[10]。此外,1项网络药理学研究显示,CR可能通过调节PI3K-AKT信号来发挥其神经保护作用。因此,研究分析了CR水提物促进IS损伤后血管生成的药理作用,并阐明了其作用机制是否调节PI3K/AKT/FOXO1信号通路实现。
1 材料与方法 1.1 细胞培养和氧糖剥夺/复氧(OGD/R)人脑微血管内皮细胞(HBMEC)购自上海传秋生物科技有限公司,并根据需要在添加10%胎牛血清的(DMEM)培养基(美国Gibco公司)中培养。
对于OGD/R处理,将HBMEC培养在无葡萄糖的DMEM培养基中,并暴露于OGD环境[5%二氧化碳(CO2),94%氮气(N2)和1%氧气(O2)]中培养4 h。然后将HBMEC培养在含葡萄糖的DMEM培养基中,在95%O2和5%CO2的标准条件下培养24 h。正常细胞不暴露于OGD/R。对于CR处理,HBMEC在整个OGD/R期间加入1、10、100、1 000 μg/mL CR水提物处理28 h。CR水提取物粉末(每g相当于CR生药62 g)购自西安唯奥生物科技有限公司,将其溶于纯化水,配制成不同质量浓度。
此外,将细胞分为以下4组:空白组(Con组)、OGD/R组、CR组和CR+LY294002组。除Con组外,其余各组均构建OGD/R细胞模型。CR组在OGD/R处理全程加入100 μg/mL CR水提物干预28 h;CR+ LY294002组先采用25 μmol/L LY294002(PI3K信号通路的抑制剂;美国Sigma公司)预处理细胞1 h,再加入100 μg/mL CR水提物,全程伴随OGD/R处理28 h。
1.2 细胞计数试剂盒-8(CCK-8)检测细胞活力将HBMEC以1×10⁵/mL的密度接种在96孔板中,加入CCK-8试剂(10 μL,美国Sigma-Aldrich公司)培养4 h。使用Biotek酶标仪(美国Winooski公司)分析450 nm处的吸光度。
1.3 流式细胞术检测细胞凋亡通过膜联蛋白V-FITC凋亡检测试剂盒(美国Thermo Fisher公司)检测细胞凋亡。将细胞(2×10⁵细胞/mL)置于6孔板中,然后用膜联蛋白V-FITC(10 μL)和PI(10 μL)染色30 min。通过BD FACS流式细胞仪(美国BD Biosciences公司)评估荧光强度。用Flow Jo 10.0.7软件分析凋亡细胞的比例。
1.4 Transwell检测细胞迁移能力将HBMEC(2× 10⁴细胞/孔)接种在Transwell室(8 μm孔径,美国Corning公司)的上室中与200 μL无血清培养基一起孵育。在下室中加入200 μL含10%胎牛血清(FBS)的培养基,并在37 ℃、5%CO2培养箱中孵育。24 h后,用4%多聚甲醛固定细胞20 min,并用0.1% 结晶紫(美国Sigma公司)染色15 min。使用显微镜观察并计数迁移的细胞。
1.5 试管形成实验将HBMEC(2×10⁴细胞/孔)接种在预涂有70 μl Matrigel(美国BD Biosciences公司)的96孔板中,并在37 ℃、5%CO2培养箱中孵育8 h。用4%甲醛固定。然后在倒置显微镜下对管的形成进行成像。使用Image J软件确定形成管的能力。
1.6 蛋白质印迹分析使用RIPA裂解缓冲液(美国Thermo Fisher Scientific公司)从梗死脑组织和细胞中提取总蛋白。使用BCA蛋白测定试剂盒(江苏凯基生物技术股份有限公司)测量蛋白浓度。将30 μg蛋白加载到凝胶的每个泳道上,通过12%SDS-PAGE分离和转移蛋白样品至PVDF膜。使用5% 脱脂乳在室温下将膜封闭2 h。然后,将膜与抗PI3K抗体(1∶800)、磷酸化PI3K(p-PI3K)抗体(1∶800)、AKT抗体(1∶1 000)、磷酸化AKT(p-AKT)抗体(1∶1 000)、FOXO1抗体(1∶1 000)、磷酸化FOXO1(p-FOXO1)抗体(1∶1 000)或抗GAPDH抗体(1∶2 000,均购自英国Abcam公司)在4 ℃下孵育过夜。第2天,在室温下用辣根过氧化物酶(HRP)偶联的IgG第二抗体孵育膜1 h。通过增强化学发光试剂盒(美国Sigma-Aldrich公司)观察目标蛋白,并通过Image J软件分析其强度。
1.7 动物和分组45只SPF级8周龄的雄性C57BL/6J(体质量20~24 g)购自上海斯莱克实验动物有限责任公司,饲养在无特定病原体的动物区,温度为(24±1)℃,湿度55%~75%,光照/黑暗周期为12 h,可随意进食和饮水。本次动物实验研究方案经中国人民解放军联勤保障部队第九四二医院伦理委员会审批通过(审批号:20240015)。
将45只小鼠随机分为假手术组(Sham组)、大脑中动脉闭塞组(MCAO组)、MCAO+CR组,每组15只。除Sham组,其他组参照文献方法[11]建立小鼠MCAO模型。具体操作为,通过2%异氟烷麻醉小鼠,在颈部做一个中线切口,分离右侧颈总动脉和颈外动脉,然后夹闭颈内动脉,随后插入尼龙缝线闭塞大脑中动脉。MCAO进行2 h,再灌注进行72 h。在Sham组,小鼠进行类似的手术,但不闭塞大脑中动脉。MCAO+CR组小鼠MCAO后每日口服1 000 mg/kg CR,连续3 d。MCAO 3 d后,通过5%异氟烷和颈椎脱臼对所有小鼠实施安乐死。使用2,3,5-氯化三苯基四氮唑(TTC)染色收集脑组织用于梗死体积分析。
1.8 神经行为评估在MCAO后第3天,采用双盲评分法对神经功能缺损评分进行评估[12]。神经学检查结果采用5分制评分:无神经缺损=0,未能完全伸展左爪=1,向左盘旋=2,向左跌倒=3,不能自主行走,意识水平低下=4。
1.9 TTC染色在MCAO后第3天,从小鼠收集脑组织并切成切片(1 mm厚)。然后将脑切片在37 ℃下用2%TTC(美国Sigma公司)染色30 min,并用4% 多聚甲醛固定。使用相机拍摄样品,并通过Image J分析梗死面积。
1.10 组织学评估小鼠用5%异氟烷麻醉,并经心灌注生理盐水和4%多聚甲醛。然后,取出其大脑,并将脑缺血区域迅速包埋在石蜡中。通过切片机获得石蜡包埋组织切片(5 μm厚),最后用HE染色。在光学显微镜下观察组织病理学变化。
1.11 Tunel染色石蜡包埋的脑组织切片在60 ℃下烘烤2 h,然后用二甲苯和分级乙醇至水进行标准脱蜡。每个样品在室温下与100 μL蛋白酶K工作溶液一起孵育20 min,随后加入50μL末端脱氧核苷酸转移酶(TdT)孵育缓冲液(美国Sigma公司),切片在37 ℃的培养箱中孵育1 h,用DAPI复染,在IX83荧光显微镜(日本Olympus公司)下观察切片。
1.12 免疫荧光石蜡切片脱蜡并使用EDTA抗原修复溶液进行修复。将切片用3%牛血清白蛋白密封30 min,并与抗CD31一级抗体(1∶200,英国Abcam公司)和PI3K抗体(1∶200,美国Abcam公司)在4 ℃下孵育过夜。然后洗涤切片,并在室温下用荧光标记的二级抗体(Cy3-conjugated IgG或Alexa Fluor 488-conjugated IgG,1∶400,美国Jackson ImmunoResearch Labs公司)在黑暗中孵育1.5 h,并用DAPI重新染色。在荧光显微镜下观察荧光信号。
1.13 统计学方法使用SPSS 26.0进行统计分析。数据表示为至少3次独立实验的均数±标准差(x±s)偏差。使用单向方差分析(ANOVA)和事后Bonferroni多重比较检验来分析和比较组间差异。P<0.05认为差异具有统计学意义。
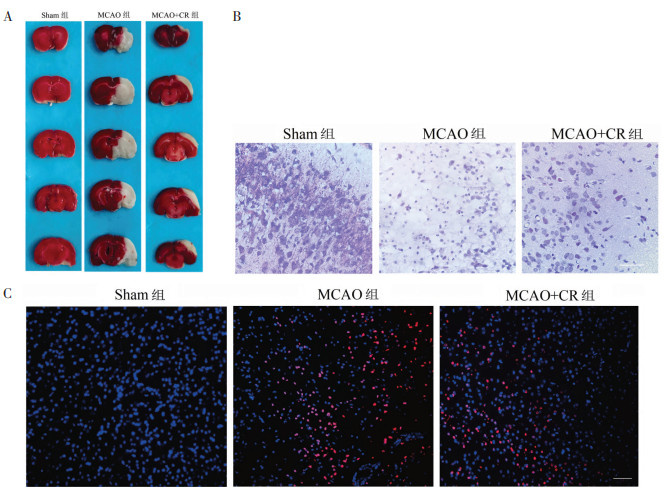
2 结果 2.1 CR对小鼠脑缺血损伤具有神经保护作用与Sham组相比,MCAO组脑梗死面积,神经功能缺损评分显著增加(P<0.05)。与MCAO组相比,MCAO+ CR组脑梗死面积,神经功能缺损评分显著降低(P<0.05),见图 1A、表 1。HE染色显示MCAO组皮质神经元明显变性坏死,出现神经元排列紊乱,CR治疗后这一现象显著缓解,见图 1B。此外,与Sham组相比,MCAO组梗死组织中细胞凋亡率显著增加(P<0.05)。与MCAO组相比,MCAO+CR组梗死组织中细胞凋亡率显著降低(P<0.05),见图 1C、表 1。
|
| 注:图A,TTC染色评估脑梗死面积;图B,小鼠脑组织HE染色(比例尺=50 μm);图C,小鼠脑组织Tunel染色(比例尺=100 μm)。 图 1 CR对小鼠脑缺血损伤的神经保护作用 |
| 组别 | 动物数 | 梗死体积(mm3) | 神经功能缺损评分(分) | 凋亡率(%) |
| Sham组 | 8 | 0 | 0.50±0.22 | 2.83±0.75 |
| MCAO组 | 8 | 37.17±6.49** | 3.67±0.52** | 38.17±2.93** |
| MCAO+CR组 | 8 | 13.50±2.35## | 2.33±0.52# | 18.67±2.34## |
| F值 | 133.7 | 54.60 | 386.2 | |
| P值 | <0.001 | <0.001 | <0.001 | |
| 注:与Sham组相比,**P<0.001;与MCAO组相比,#P<0.05,##P<0.01。 | ||||
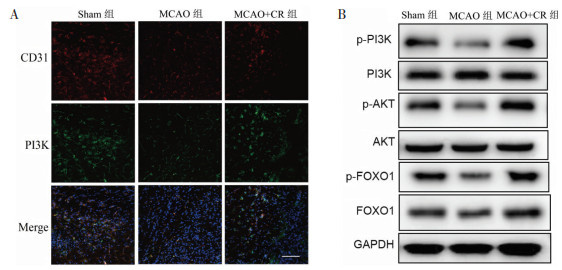
与Sham组相比,MCAO组梗死脑组织中CD31+/PI3K+细胞比例和p-PI3K/PI3K、p-AKT/AKT、p-FOXO1/FOXO1表达显著降低(P<0.05)。与MCAO组相比,MCAO+CR组梗死脑组织中CD31+/PI3K+细胞比例和p-PI3K/PI3K、p-AKT/AKT、p-FOXO1/FOXO1表达显著增加(P<0.05),见图 2、表 2。
|
| 注:图A,免疫荧光检测脑组织中CD31(红色)和PI3K(绿色)染色的微血管分布情况(比例尺=50 μm);图B,蛋白质印迹分析脑组织中PI3K/AKT/FOXO1蛋白表达情况。 图 2 CR通过激活PI3K/AKT/FOXO1信号通路增强小鼠脑缺血损伤后的血管生成 |
| 组别 | 动物数 | CD31+/PI3K+细胞比例(%) | p-PI3K/PI3K | p-AKT/AKT | p-FOXO1/FOXO1 |
| Sham组 | 6 | 31.00±2.37 | 0.57±0.03 | 0.82±0.06 | 0.82±0.03 |
| MCAO组 | 6 | 11.67±2.58** | 0.27±0.03* | 0.29±0.03** | 0.30±0.05** |
| MCAO+CR组 | 6 | 22.33±3.27# | 0.55±0.04# | 0.68±0.02# | 0.79±0.05## |
| F值 | 73.60 | 64.82 | 127.6 | 151.3 | |
| P值 | <0.001 | <0.001 | <0.001 | <0.001 | |
| 注:与Sham组比较,*P<0.05、**P<0.01;与MCAO组比较,#P<0.05,##P<0.01。 | |||||
与Con组相比,OGD/R组HBMEC活力显著降低(P<0.05),CR处理后HBMEC活力以剂量依赖的方式得到改善(P<0.05),并在100 μg/mL CR中改善程度最大。因此,在随后的实验中,选择100 μg/mL CR作为研究浓度。见表 3。
| 组别 | n | 相对细胞活力 |
| Con组 | 3 | 1.00±0.05 |
| OGD/R组 | 3 | 0.45±0.03** |
| 1 μg/mLCR | 3 | 0.61±0.03##△ |
| 10 μg/mLCR | 3 | 0.69±0.01##△ |
| 100 μg/mLCR | 3 | 0.79±0.02## |
| 1 000 μg/mLCR | 3 | 0.70±0.02##△ |
| F值 | 115.60 | |
| P值 | <0.001 | |
| 注:与Con组相比,**P<0.01;与OGD/R组相比,##P<0.01;与100 μg/mL CR组相比,△P<0.05 | ||
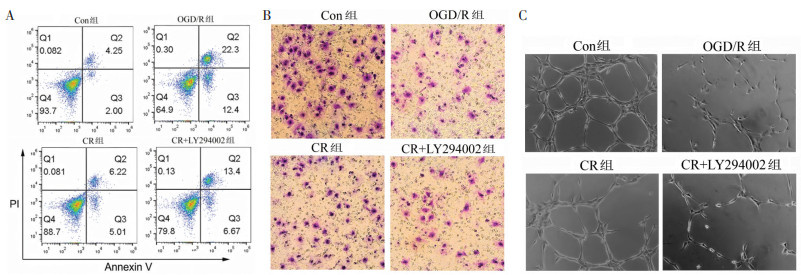
与Con组相比,OGD/R组HBMEC凋亡率显著增加(P<0.05),迁移细胞数与管形成数显著降低(P<0.05)。与OGD/R组相比,CR组HBMEC凋亡率显著降低(P<0.05),细胞迁移数和管形成数显著增加(P<0.05)。见图 3、表 4。
|
| 注:图A,流式细胞术分析细胞凋亡;图B,Transwell实验分析细胞迁移能力;图C,成管实验分析细胞管形成数。 图 3 CR体外增强缺氧后内皮细胞的迁移和管形成 |
| 组别 | n | 凋亡率(%) | 迁移细胞数 | 管形成数 |
| Con组 | 3 | 5.83±1.47 | 297.50±13.74 | 66.83±3.31 |
| OGD/R组 | 3 | 38.17±3.71** | 98.67±9.87** | 24.83±2.79** |
| CR组 | 3 | 11.33±1.75## | 227.20±15.01## | 52.17±2.14## |
| CR+LY294002组 | 3 | 21.00±2.00△ | 107.70±10.21△△ | 32.17±2.79△ |
| F值 | 209.9 | 361.8 | 282.1 | |
| P值 | <0.001 | <0.001 | <0.001 | |
| 注:与Con组比较,**P<0.001;与OGD/R组比较,##P<0.01;与CR组比较,△P<0.05,△△P<0.01。 | ||||
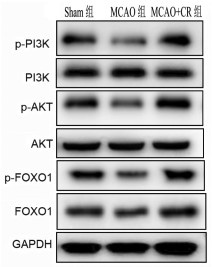
与Con组相比,OGD/R组HBMEC中p-PI3K/PI3K、p-AKT/AKT、p-FOXO1/FOXO1表达显著降低(P<0.05)。与OGD/R组相比,CR组HBMEC中p-PI3K/PI3K、p-AKT/AKT、p-FOXO1/FOXO1表达显著增加(P<0.05)。CR+LY294002组HBMEC中p-PI3K/PI3K、p-AKT/AKT、p-FOXO1/FOXO1表达较CR组显著降低(P<0.05),见图 4、表 5。此外,CR+LY294002组HBMEC凋亡率较CR组显著增加(P<0.05),细胞迁移数和管形成数较CR组显著降低(P<0.05)。
|
| 图 4 蛋白质印迹分析HBMEC中PI3K/AKT/FOXO1信号蛋白表达情况 |
| 组别 | n | p-PI3K/PI3K | p-AKT/AKT | p-FOXO1/FOXO1 |
| Con组 | 3 | 0.51±0.03 | 0.55±0.03 | 1.15±0.09 |
| OGD/R组 | 3 | 0.11±0.03** | 0.15±0.02** | 0.10±0.02** |
| CR组 | 3 | 0.45±0.03## | 0.58±0.04## | 1.04±0.05## |
| CR+LY294002组 | 3 | 0.22±0.02△ | 0.37±0.02△ | 0.25±0.03△△ |
| F值 | 159.5 | 155.2 | 280.0 | |
| P值 | <0.001 | <0.001 | <0.001 | |
| 注:与Con组比较,**P<0.001;与OGD/R组比较,##P<0.01;与CR组比较,△P<0.05,△△P<0.01。 | ||||
IS的病理进程为脑血管阻塞引发的脑组织缺血缺氧,进而诱发神经元凋亡、血管内皮损伤及神经炎症级联反应,严重威胁患者的生存质量与预后转归[13-14]。当前临床治疗以溶栓、机械取栓及抗血小板聚集为主,其中组织型纤溶酶原激活剂(tPA)是唯一获批的溶栓药物,但受限于狭窄的治疗时间窗与较高的出血转化风险,临床应用范围大幅受限[15]。而阿司匹林联合氯吡格雷的二级预防方案,长期使用易引发胃肠道出血、脑出血等不良反应,老年患者的用药安全性亟待提升[5]。因此,研发兼具安全性与有效性的新型治疗药物,成为缺血性脑卒中领域的研究热点。
促进缺血区域血管新生、重建脑血流灌注,是改善缺血性脑卒中预后的关键策略[16-17]。川芎作为传统活血化瘀中药,其改善脑缺血损伤的药理作用已得到广泛证实,前期网络药理学研究提示,川芎中的活性成分可能通过调控PI3K/AKT信号通路发挥神经保护作用[18]。研究通过细胞与动物双重模型,首次明确川芎水提物可通过激活PI3K/Akt/FOXO1信号轴,实现抑制血管内皮细胞凋亡、促进血管生成的作用,为其临床应用提供了坚实的实验依据。
研究结果显示,OGD/R可显著诱导HBMEC凋亡,抑制细胞迁移及管形成能力;而川芎干预能剂量依赖性地提升受损细胞活力,逆转上述病理改变。同时,MCAO小鼠经川芎治疗后,脑梗死面积显著缩小,神经功能缺损症状明显改善,梗死区域CD31+/PI3K+微血管密度显著升高。进一步机制研究发现,川芎可显著上调HBMEC及小鼠梗死脑组织中p-PI3K/PI3K、p-AKT/AKT及p-FOXO1/FOXO1的比值,而PI3K特异性抑制剂LY294002可完全逆转川芎的保护效应,直接证实PI3K/AKT/FOXO1信号通路是川芎发挥内皮保护作用的重要靶点。
PI3K/AKT信号通路是调控细胞存活与血管生成的经典通路,其激活后可通过磷酸化下游靶蛋白,参与细胞凋亡、增殖及分化等多种生物学过程[19-20]。FOXO1作为Akt的关键下游底物,其亚细胞定位与磷酸化状态密切相关:静息状态下,FOXO1定位于细胞核内,通过转录激活促凋亡基因诱导细胞死亡;当Akt被激活后,可磷酸化FOXO1并促使其转位至细胞质,进而丧失转录活性,发挥抗凋亡作用[9,21]。已有研究证实,上调FOXO1磷酸化水平可通过抑制氧化应激与细胞凋亡,减轻脑缺血再灌注损伤[22]。研究发现,川芎可显著提升FOXO1的磷酸化水平,结合细胞与动物实验的功能学结果,提示川芎可能通过促进FOXO1核-质转位,实现血管内皮保护与血管新生的双重效应。此外,PI3K-AKT信号通路抑制剂消除了CR对OGD/R诱导HBMEC凋亡和血管生成减少的改善作用,这一发现与Zhang等[23]的研究结果一致。然而,本研究没有分析动物体内PI3K-AKT-FOXO1信号通路和CR之间的相互作用。因此,未来应研究PI3K-AKT-FOXO1信号通路对CR在动物模型中作用的影响。此外,应在进一步的研究中探索CR调节PI3K-AKT-FOXO1信号通路的潜在靶点。
研究在实验设计中,参考临床等效剂量换算原则,选取1 000 mg/kg作为小鼠川芎给药剂量。该剂量与前期研究中证实的有效剂量范围一致,且未观察到明显毒副作用[24],为后续研究的剂量选择提供了可靠依据。同时,研究通过设置抑制剂对照组,构建了川芎干预-通路激活-功能改善的完整证据链,明确了信号通路与药理效应的因果关联,研究设计严谨且具有较强的科学性。
4 结论研究结合体外细胞OGD/R模型与体内小鼠MCAO缺血性脑卒中模型,证实CR水提物能够激活PI3K/AKT/FOXO1信号轴,抑制人脑微血管内皮细胞凋亡,促进内皮细胞迁移与管腔形成,减小脑梗死体积、改善小鼠神经功能缺损,实现对缺血脑组织的保护作用。应用PI3K抑制剂LY294002可逆转川芎的上述保护效应,进一步佐证该信号轴为川芎发挥药效的关键靶点。这些结果为CR在IS临床治疗中的应用提供了潜在的理论基础。
| [1] |
《中国脑卒中防治报告2021》编写组, 王陇德. 《中国脑卒中防治报告2021》概要[J]. 中国脑血管病杂志, 2023, 20(11): 783-792. |
| [2] |
KHAN M, WASAY M, O'DONNELL M J, et al. Risk Factors for Stroke in the Young(18-45 Years): A case-control analysis of iNTERSTROKE data from 32 countries[J]. Neuroepidemiology, 2023, 57(5): 275-283. DOI:10.1159/000530675 |
| [3] |
中华医学会神经病学分会, 中华医学会神经病学分会脑血管病学组. 中国急性缺血性卒中诊治指南2023[J]. 中华神经科杂志, 2024, 57(6): 523-559. |
| [4] |
LI H, LUO Y, LIU P, et al. Exosomes containing miR-451a is involved in the protective effect of cerebral ischemic preconditioning against cerebral ischemia and reperfusion injury[J]. CNS Neuroscience & Therapeutics, 2021, 27(5): 564-576. |
| [5] |
AHMED M, AHSAN A, FATIMA L, et al. Efficacy and safety of aspirin plus clopidogrel versus aspirin alone in ischemic stroke or high-risk transient ischemic attack: A meta-analysis of randomized controlled trials[J]. Vascular Medicine, 2024, 29(5): 517-525. DOI:10.1177/1358863X241265335 |
| [6] |
赵世英, 张慧, 邵笑笑, 等. 中药川芎治疗缺血性脑卒中药理机制研究进展[J]. 辽宁中医药大学学报, 2024, 26(9): 185-189. |
| [7] |
舒梦琦, 戴瑶瑶, 宋丽娟, 等. 基于SIRT1/VEGFA信号通路探讨川芎嗪调节缺血性脑卒中损伤后血管内皮细胞的新生作用研究[J]. 中国中药杂志, 2024, 49(1): 162-174. |
| [8] |
LIU T, LI X, ZHOU X, et al. PI3K/AKT signaling and neuroprotection in ischemic stroke: molecular mechanisms and therapeutic perspectives[J]. Neural Regeneration Research, 2025, 20(10): 2758-2775. DOI:10.4103/NRR.NRR-D-24-00568 |
| [9] |
LI F, GENG X, ILAGAN R, et al. Exercise postconditioning reduces ischemic injury via suppression of cerebral gluconeogenesis in rats[J]. Brain and behavior, 2023, 13(1): e2805. DOI:10.1002/brb3.2805 |
| [10] |
TONG Y X, ZHU S Y, WANG Z Y, et al. Sulforaphane ameliorate cadmium-induced blood-thymus barrier disruption by targeting the PI3K/AKT/FOXO1 axis[J]. Journal of Agricultural and Food Chemistry, 2024, 72(23): 13382-13392. DOI:10.1021/acs.jafc.4c01703 |
| [11] |
NI H, LI J, ZHENG J, et al. Cardamonin attenuates cerebral ischemia/reperfusion injury by activating the HIF-1α/VEGFA pathway[J]. Phytotherapy Research, 2022, 36(4): 1736-1747. DOI:10.1002/ptr.7409 |
| [12] |
LI Y, ZHANG M, LI S, et al. Selective ischemic-hemisphere targeting Ginkgolide B liposomes with improved solubility and therapeutic efficacy for cerebral ischemia-reperfusion injury[J]. Asian Journal of Pharmaceutical Sciences, 2023, 18(2): 100783. DOI:10.1016/j.ajps.2023.100783 |
| [13] |
CAI D, FRAUNFELDER M, FUJISE K, et al. ADAR1 exacerbates ischemic brain injury via astrocyte-mediated neuron apoptosis[J]. Redox Biology, 2023, 67: 102903. DOI:10.1016/j.redox.2023.102903 |
| [14] |
DING Y, LANG Y, ZHANG H, et al. Candesartan reduces neuronal apoptosis caused by ischemic stroke via regulating the FFAR1/ITGA4 pathway[J]. Mediators of Inflammation, 2022, 2022(1): 2356507. |
| [15] |
WIDIMSKY P, SNYDER K, SULZENKO J, et al. Acute ischaemic stroke: Recent advances in reperfusion treatment[J]. European Heart Journal, 2023, 44(14): 1205-1215. DOI:10.1093/eurheartj/ehac684 |
| [16] |
FANG J, WANG Z, MIAO C. Angiogenesis after ischemic stroke[J]. Acta Pharmacologica Sinica, 2023, 44(7): 1305-1321. DOI:10.1038/s41401-023-01061-2 |
| [17] |
HU B, PEI J, WAN C, et al. Mechanisms of postischemic stroke angiogenesis: A multifaceted approach[J]. Journal of Inflammation Research, 2024, 17: 4625-4646. DOI:10.2147/JIR.S461427 |
| [18] |
WANG J, WANG L, ZHOU H, et al. The isolation, structural features and biological activities of polysaccharide from Ligusticum chuanxiong: A review[J]. Carbohydrate Polymers, 2022, 285: 118971. DOI:10.1016/j.carbpol.2021.118971 |
| [19] |
GU C, ZHANG Q, LI Y, et al. The PI3K/AKT pathway—The potential key mechanisms of traditional Chinese medicine for stroke[J]. Frontiers in Medicine, 2022, 9: 900809. DOI:10.3389/fmed.2022.900809 |
| [20] |
LIU X, XIAO X, HAN X, et al. A new therapeutic trend: natural medicine for ameliorating ischemic stroke via PI3K/Akt signaling pathway[J]. Molecules, 2022, 27(22): 7963. DOI:10.3390/molecules27227963 |
| [21] |
LIN K N, ZHANG K, ZHAO W, et al. Insulin-like growth factor 1 promotes cell proliferation by downregulation of G-protein-coupled receptor 17 expression via PI3K/Akt/FoxO1 signaling in SK-N-SH cells[J]. International Journal of Molecular Sciences, 2022, 23(3): 1513. DOI:10.3390/ijms23031513 |
| [22] |
ZHANG D, PAN N, JIANG C, et al. LncRNA SNHG8 sponges miR-449c-5p and regulates the SIRT1/FoxO1 pathway to affect microglia activation and blood-brain barrier permeability in ischemic stroke[J]. Journal of Leukocyte Biology, 2022, 111(5): 953-966. DOI:10.1002/JLB.1A0421-217RR |
| [23] |
ZHANG T, LIU W, YANG J, et al. Components of salvia miltiorrhiza and panax notoginseng protect pericytes against OGD/R-Induced injury via regulating the PI3K/AKT/mTOR and JNK/ERK/P38 signaling pathways[J]. Journal of Molecular Neuroscience, 2022, 72(12): 2377-2388. DOI:10.1007/s12031-022-02082-y |
| [24] |
LIM C, LIM S, MOON S J, et al. Neuroprotective effects of methanolic extract from Chuanxiong Rhizoma in mice with middle cerebral artery occlusion-induced ischemic stroke: Suppression of astrocyte-and microglia-related inflammatory response[J]. BMC Complement Medicine and Therapies, 2024, 24(1): 140. DOI:10.1186/s12906-024-04454-w |